Большинство эндокринных заболеваний проявляются в основном в виде избыточной или недостаточной секреции одного или нескольких гормонов, однако их причины могут относиться не только к эндокринологии как разделу медицины. Основными причинами эндокринных заболеваний, как и заболеваний других систем органов, являются доброкачественная или злокачественная пролиферация эндокринных клеток, деструкция эндокринных клеток под воздействием аутоиммунных, инфекционных и прочих инфильтративных процессов, мутации в генах, экспрессируемых эндокринными клетками, а также нарушения функции эндокринных клеток вследствие нарушений обмена веществ или под действием ЛП.
Хотя причины эндокринологических заболеваний не уникальны, имеется несколько общих принципов, благодаря которым эндокринологию выделили в отдельный раздел медицины. Все эти принципы касаются учения о гормонах. Эндокринология зародилась, когда люди узнали о том, что определенные клетки выделяют непосредственно в кровоток специальные химические вещества — гормоны, которые действуют на определенные мишени, находящиеся на расстоянии от места секреции. Это открытие повлекло за собой ряд вопросов: как регулируется синтез и секреция гормонов? Как гормоны транспортируются и метаболизируются? Каким образом гормоны действуют на соответствующие ткани-мишени?
В данной статье на сайте представлены ответы на каждый из перечисленных вопросов с описанием того, каким образом эти ответы влияют на современные подходы к диагностике и лечению эндокринных заболеваний.
а) Что такое гормон? Изначально определение гормона основывалось скорее на его физиологических, а не химических свойствах. Считалось, что принцип работы заключается в воздействии на клетки-мишени, к которым гормон попадает с током крови. Первым примером стал секретин. Изначально не было известно, что секретин является пептидным гормоном, секретируется энтероэндокринными клетками выстилки ЖКТ и воздействует на экзокринные клетки ПЖЖ.
В отличие от энтероэндокринных клеток, рассеянных в выстилке кишечника среди других типов, вскоре были обнаружены отдельные скопления гормон-секретирующих клеток (то есть эндокринные железы, в частности надпочечники, половые железы, ЩЖ, ПЩЖ), что позволило описать химические свойства секретируемых ими гормонов. Теперь мы знаем, что определению гормона соответствуют и пептиды, и ГКС, и многие другие химические вещества.
Эндокринное действие, при котором гормон секретируется в кровь и действует на расстоянии, противопоставляется паракринному действию, при котором гормон роста или другая сигнальная молекула секретируется одной клеткой и действует на рядом расположенные клетки, а также аутокринному действию, при котором клетка секретирует сигнальную молекулу, которая действует на саму эту клетку. Невозможно четко разграничить эндокринное, паракринное и аутокринное действие.
В некоторых случаях фактор может действовать в физиологических условиях паракринно, а в патологических — эндокринно. Например, ПТГ-родственный пептид при нормальном развитии костной ткани действует паракринно, а при паранеопластическом синдроме гуморальной гиперкальциемии — эндокринно. Четкого определения эндокринной железы также нет. Вначале было установлено, что специальные нейроны могут синтезировать и секретировать гормоны напрямую в кровоток (так называемое нейроэндокринное действие).
В качестве примера можно привести секрецию вазопрессина клетками задней доли гипофиза. Это отличается от классической секреции нейротрансмиттеров из нейронов в синаптическую щель. По мере появления информации о том, что многие ткани секретируют гормоны (например, клетки почек — эритропоэтин, клетки жировой ткани — лептин и другие адипокины), роль желез внутренней секреции в качестве единственных источников гормональной секреции приуменьшилась. Подобное стирание границ между эндокринологией и другими медицинскими специальностями — общее явление, в рамках которого исследования гормонов дают информацию для, казалось бы, совершенно не связанных с эндокринологией областей.
Радиоиммуноанализ, концепция рецепторов и другие принципы трансдукции сигналов, которые впервые были освещены в ходе исследований действия гормонов, теперь широко применяются во всех областях медицины.
б) Регуляция синтеза и секреции гормонов. Синтез гормонов делится на 2 большие категории:
1) синтез пептидных гормонов;
2) синтез ГКС, а также активной формы витамина D, гормонов ЩЖ, катехоламинов и других непептидных гормонов.
В первой категории структура гормонов кодируется генетически. В результате трансляции матричной РНК синтезируется белок-предшественник (препрогормон). Затем от него, как правило, в несколько этапов отщепляются фрагменты, и образуется готовый продукт, который и секретируется. Некоторые белки-предшественники содержат несколько гормонов. Например, проопиомела-нокортин содержит АКТГ, меланоцит-стимулирующий гормон и эндорфины. При определенных патологических состояниях незрелый гормон секретируется в неадекватном количестве (например, при инсулиномах в избыточном количестве секретируется проинсулин).
Некоторые гормоны подвергаются посттрансляционной модификации, например формированию дисульфидной связи (вазопрессин и инсулин), отщеплению С-пептида (инсулин), гликозилированию (гликопротеиновые гормоны гипофиза, ТТГ, ФСГ, ЛГ). В редких случаях причиной эндокринной недостаточности являются мутации в генах, кодирующих пептидные гормоны. Эти мутации могут привести к нарушению их нормального синтеза или секреции. Пептидные гормоны, как правило, хранятся в секреторных гранулах и секретируются путем экзоцитоза. Этот процесс регулируется ионами кальция и другими факторами.
Синтез ГКС и других непептидных гормонов осуществляется в несколько этапов путем ферментных превращений предшественников гормонов (ХС — для ГКС, ароматических аминокислот — для гормонов ЩЖ, катехоламинов и других родственных соединений). Мутации в генах, кодирующих ферменты, ответственные за один или несколько этапов синтеза гормонов, могут привести к их дефициту.
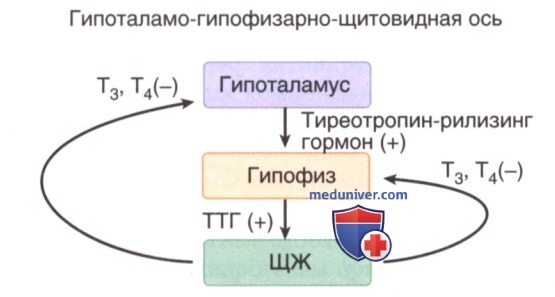
В норме синтез и секреция гормонов регулируются в основном по принципу отрицательной обратной связи. Гормоны эндокринных желез, рост и секреция гормонов которых стимулируются трофическими гормонами гипофиза (половых желез, коры надпочечников, ЩЖ), действуют непосредственно на соответствующие трофические клетки гипофиза (например, кортизол действует на кортикотрофы гипофиза, секретирующие АКТГ) и подавляют секрецию гормона (рис. 1). И, наоборот, в ответ на физиологически значимое снижение уровня секреции гормона железой-мишенью секреция трофического гормона в гипофизе повышается.
Рисунок 1. Демонстрация принципа отрицательной обратной связи на примере гипоталамо-гипофизарно-щитовидной оси. Под действием тиреотропного гормона, секретируемого гипофизом, щитовидная железа секретирует Т3 и T4, которые по принципу обратной связи действуют на гипоталамус и гипофиз, препятствуя дальнейшему увеличению секреции тиреотропин-рилизинг-гормона и тиреотропного гормона
Во многих других случаях механизм отрицательной обратной связи реализуется без участия гипофиза в качестве посредника (например, секреция ПТГ ПЩЖ регулирует внеклеточный гомеостаз кальция, а уровень кальция по принципу обратной связи непосредственно влияет на секрецию ПТГ клеток ПЩЖ). Хронический дефицит гормона и, как результат, нарушение механизма отрицательной обратной связи может привести к гиперсекреции соответствующего трофического гормона и даже к неопластической пролиферации клеток, секретирующих трофический гормон.
В качестве примера можно привести синдром Нельсона, при котором опухоли из кортикотрофных клеток формируются вторично после адреналэктомии, и третичный гиперпаратиреоз, при котором аденомы из клеток ПЩЖ развиваются на фоне хронической гипокальциемии. При некоторых нарушениях функции коры надпочечников недостаток гормона с потерей механизма отрицательной обратной связи в виде ответного выделения трофического гормона приводит к патологической гиперсекреции альтернативных ГКС. Различные формы врожденной гиперплазии коры надпочечников развиваются в результате мутаций в одном из нескольких ферментов, участвующих в биосинтезе кортизола. Наиболее распространен дефицит 21-гидроксилазы, который может приводить к вирилизации младенцев женского пола с избыточной секрецией андрогенов надпочечниками под стимулирующим воздействием АКТГ на фоне неспособности синтезировать кортизол.
Подавление ферментных этапов синтеза гормона (например, ингибиторами ароматаз с целью снижения синтеза эстрогена при эстроген-позитивных формах рака МЖ) может иметь большое значение в рамках таргетной терапии.
Синдромы гиперсекреции гормонов, характеризующиеся их избыточной секрецией на фоне «нормальных» уровней фактора, который обычно подавляет соответствующий гормон, по определению развиваются в результате внутреннего дефекта в механизме отрицательной обратной связи. Это может быть связано с неопластической пролиферацией гормон-секретирующих клеток. Таким образом, «базальная» секреция гормона слишком большим количеством клеток способствует превышению физиологических концентраций гормона. Это может быть связано и с изменением внутренней «установочной точки», при которой начинает действовать механизм обратной связи и подавляется секреция гормона. На практике эти два механизма не всегда можно различить, и они не являются взаимоисключающими.
Помимо подавления по механизму отрицательной обратной связи, существует множество форм регуляции секреции гормонов. На секрецию гормонов влияют метаболические процессы, нервные импульсы, а также другие факторы внутренней и внешней среды. Временной паттерн секреции гормонов часто привязан к суточным ритмам (классический пример — кортизол) и носит пульсирующий характер. Ярким примером комплексной регуляции временных паттернов секреции гормонов являются изменения в характере секреции гонадотропина на протяжении менструального цикла и во время пубертата.
в) Транспорт и метаболизм гормонов. Большинство пептидных гормонов циркулируют в свободной форме. В этом отношении инсулиноподобный фактор роста-1 уникален: он связывается с рядом специальных связывающих белков. ГКС и гормоны ЩЖ представляют собой липофильные молекулы, циркулирующие в основном в связанной с белком форме. Кортизол, андрогены, эстрогены и гормоны ЩЖ избирательно связываются только с определенными связывающими белками. Лишь малая часть общего количества гормона, определенного с помощью рутинных методов исследований, представлена свободно циркулирующей формой. Патология связывающих белков может развиваться при заболеваниях печени, поскольку большинство этих белков в ней синтезируются.
Таким образом, в отличие от общей концентрации гормона в плазме, определение уровня свободной формы гормона может иметь критическое значение для установления точного диагноза при определенных клинических состояниях.
Еще одним критическим показателем, определяющим действие некоторых гормонов, является метаболизм гормона. Для нормальной работы тестостерона, Т4 и витамина D крайне важное значение имеет превращение в более активные формы гормонов под действием ферментов. Дигидротестостерон образуется в тканях-мишенях (например, в коже под действием 5-α-редуктазы), Т4 превращается в Т3 под действием дейодиназы, а 1,25-дигидроксивитамин D образуется путем последовательного гидроксилирования в печени и почках. Дефекты этих этапов метаболизма приводят к нарушению действия гормонов. Даже активные формы некоторых пептидных гормонов (например, ангиотензина) образуются путем ферментных превращений секретируемых формпредшественников.
г) Механизм действия гормонов. Центральный вопрос в отношении действия гормонов состоит в том, как гормон, циркулирующий в кровотоке в минимальных концентрациях, распознает специфические клетки-мишени и регулирует физиологические процессы в них. Исследования по данному вопросу, которые проводились в течение последних 40 лет, позволили выделить рецепторы, которые ранее определялись чисто теоретически, на молекулярном уровне. Рецепторы представляют собой высокоселективные молекулы, которые связывают родственные гормоны с высокой аффинностью и специфичностью. Были установлены два широких класса рецепторов:
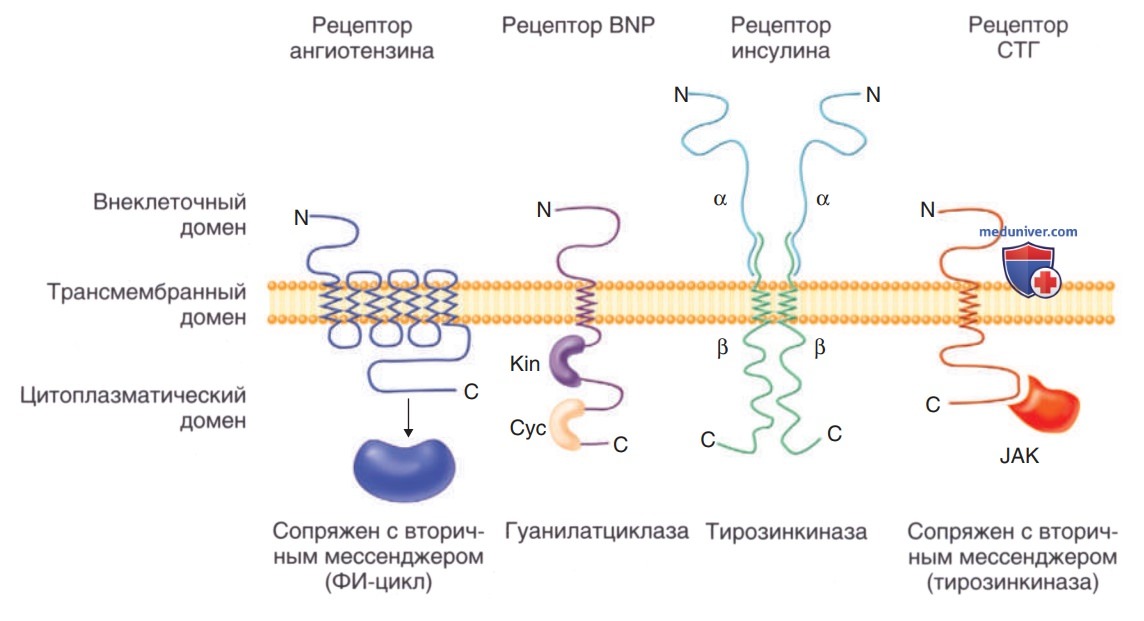
1) рецепторы клеточной поверхности, которые обычно пронизывают плазматическую мембрану один или несколько раз (рис. 2);
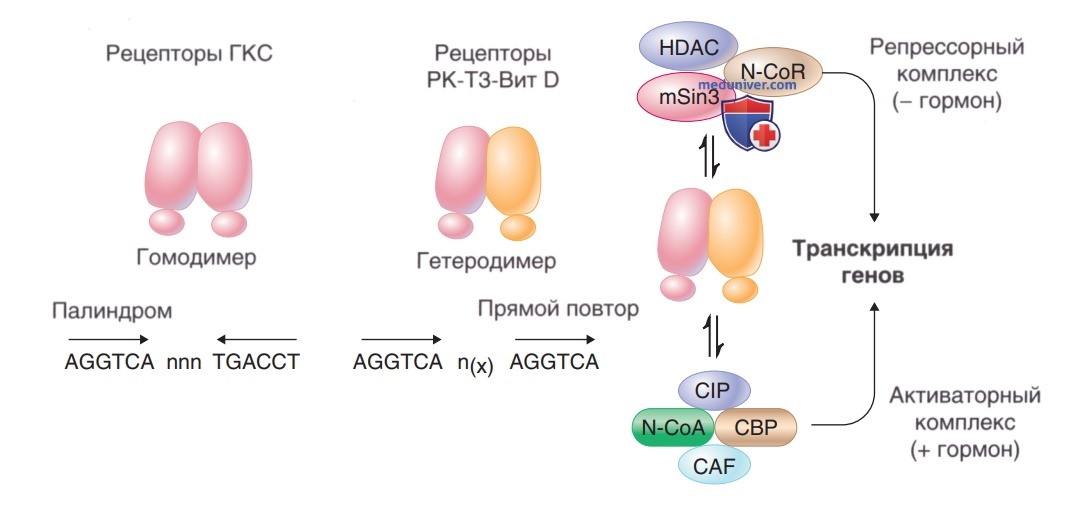
2) так называемые ядерные рецепторы, которые находятся в ядре или цитоплазме, а в последующем переносятся в ядро (рис. 3).
Рисунок 2. Структуры разных видов рецепторов пептидных гормонов. ФИ — фосфоинозитид
Рисунок 3. Схема функционирования рецепторов глюкокортикостероидов. Слева: члены семейства рецепторов глюкокортикостероидов связываются в виде гомодимеров с участками палиндромной дезоксирибонуклеиновой кислоты. Члены семейства рецепторов тиреоидных гормонов связываются в первую очередь в виде гетеродимеров с ретиноидным Х-рецептором с участками прямых повторов дезоксирибонуклеиновой кислоты, разделенными варьирующим количеством пар оснований. Справа: в результате связывания с гормоном репрессорные комплексы диссоциируются, а активаторные комплексы связываются с ядерными рецепторами. Репрессорные комплексы содержат гистондеацетилазу (HDAC), а активаторные комплексы — гистонацетилазу (CAF). СВР — CREB-связывающий белок (CREB — белок, связывающий циклический АМФ-чувствительный элемент (сАМР response element binding protein); CIP — циклин-зависимый белок, взаимодействующий с киназой (cyclin-dependent kinase interacting protein); mSin3 — ген млекопитающих, гомологичный гену дрожжей SIN3 (mammalian homologue of the yeast SIN3 gene); N-CoA — белок-коактиватор ядерных рецепторов (nuclear receptor coactivator protein); N-CoR — белок-корепрессор ядерных рецепторов (nuclear receptor corepressor protein); РК-Т3-Вит D — ретиноевая кислота-трийодтиронин-витамин D
Гормоны регулируют клеточные физиологические процессы, в частности секрецию гормонов, ферментов и прочих соединений, сокращение мышц, рост и пролиферацию. Трансдукция сигналов представляет собой общий термин для обозначения биохимических этапов между связыванием гормона с рецептором и изменениями клеточной физиологии. Большинство пептидов и белковых гормонов (например, инсулин, СТГ, АКТГ) связываются с рецепторами клеточной поверхности, которые можно классифицировать в зависимости от механизма трансдукции сигналов, с которым они сопряжены (например, рецепторы тирозин- или серинкиназ, сопряженные с белком G, сопряжение с JAK/STAT-путем; см. рис. 2).
Рецепторы клеточной поверхности могут генерировать «вторичные мессенджеры», которые, в свою очередь, регулируют киназный каскад. Активация рецепторов может привести к быстрым эффектам (например, экзоцитозу секреторных гранул), однако более долгосрочные действия, касающиеся регуляции генов, также могут быть следствием активации вторичных мессенджеров и киназного каскада. ГКС и тиреоидные гормоны, а также витамин D связываются с членами семейства ядерных рецепторов. Последние действуют в качестве «лиганд-опосредуемых» факторов транскрипции для регуляции экспрессии генов (см. рис. 3).
Селективность связывания гормонов с рецепторами не является абсолютной. «Избыточная специфичность» — это клинически важный феномен, в рамках которого супрафизиологические концентрации гормона обусловливают связывание и активацию неродственных рецепторов близкородственного гормона. К примерам можно отнести гипогликемию, наблюдаемую при опухолях, исходящих не из островковых клеток и секретирующих инсулиноподобный фактор роста-II, который связывается с рецептором инсулина; гиперпигментация кожи у пациентов с Аддисоновой болезнью, при которой избыточная секреция АКТГ активирует рецепторы меланокортина в меланоцитах, которые обычно регулируются меланоцитстиму-лирующим гормоном; а также гипертиреоз у беременных женщин, когда высокие концентрации ХГЧ активируют рецептор ТТГ.
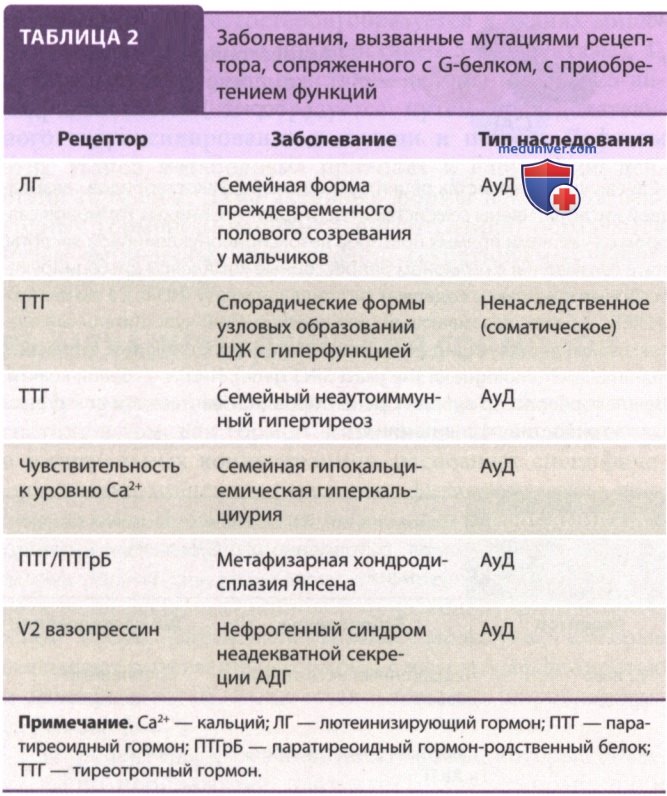
К генетическим эндокринным заболеваниям относятся таковые, обусловленные мутациями одного компонента пути трансдукции сигналов, что ведет либо к «гормоно-резистентности», либо к активации, независимой от гормона (табл. 1 и 2). В первом случае у пациентов проявляется явный дефицит гормона, однако при непосредственном измерении его уровня выявляются высокие концентрации биоактивного гормона, который не может действовать из-за резистентности органа-мишени. Во втором случае у пациентов проявляется явная эндокринная гиперфункция, однако при непосредственном измерении определяется сниженная концентрация гормона из-за интактной отрицательной обратной связи.
У пациентов с гормонорезистентностью выявлены мутации рецепторов и промежуточных соединений сигнальных путей (например, G-белков) с утратой функции. Напротив, мутации, конститутивно активирующие рецепторы нижележащих сигнальных компонентов, выявлены при заболеваниях с эндокринной гиперактивностью (семейная форма преждевременного полового созревания у мальчиков, семейный неаутоиммунный гипертиреоз). Мутации, инактивирующие рецепторы и обусловливающие гормонорезистентные заболевания (в частности, мутации рецепторов к андрогенам при нечувствительности к тестостерону разной степени), установлены как для рецепторов клеточной поверхности, так и для ядерных рецепторов. Мутации в генах, кодирующих белки (например, корепрессоры, формирующие часть комплекса ядерного рецептора), также могут способствовать гормонорезистентности (например, центральный гипотиреоз обусловлен мутациями TBL1X).
д) Контрольные вопросы:
1. Гормоны синтезируются и секретируются:
A. Специальными скоплениями клеток, образующими эндокринные железы.
B. Клетками, расположенными в тонком кишечнике и в ткани ПЖЖ.
C. Нейронами в задней доле гипофиза.
D. Почками, жировой тканью и некоторыми иными органами.
E. Все вышеперечисленное.
Ответ Е. Исследования показали, что не только классические эндокринные железы (ЩЖ, надпочечники), но и энтероэндокринные клетки, разбросанные по выстилке кишечника и находящиеся в островках ПЖЖ, нейроэндокринные клетки задней доли гипофиза, а также неклассические локализации секреции гормонов (почки, сердце, жировая ткань) являются источниками гормонов.
2. Генетическое нарушение с гормональной недостаточностью может быть обусловлено:
A. Мутацией в гене, кодирующем сигнальную последовательность гормона.
B. Воздействием эндокринного «дизраптора» на мать во время беременности.
C. Мутацией в гене, кодирующем фермент в цикле трикарбоновых кислот.
D. Пожилым возрастом отца на момент зачатия.
E. Все вышеперечисленное.
Ответ А. Мутация в гене гормона, меняющая сигнальную последовательность пептидного гормона и тем самым нарушая его способность секретироваться, может обусловливать генетические формы гормональной недостаточности (например, гипопаратиреоза).
3. Подавление посредством отрицательной обратной связи:
A. Формирует основу суточного ритма секреции кортизола сыворотки.
B. Является механизмом, посредством которого «выход», регулируемый гормоном, по обратной связи регулирует секрецию этого гормона.
C. Формирует основу менопаузы у женщин и снижения уровня тестостерона с возрастом у мужчин.
D. Всегда касается одного гормона, регулирующего секрецию другого гормона.
E. Не соответствует ничему вышеописанному.
Ответ В. В соответствует верному определению подавления посредством отрицательной обратной связи. Последнее не является основной причиной ни А, ни С. Утверждение D неверно, поскольку не только гормоны могут оказывать подавление посредством отрицательной обратной связи (например, кальций подавляет секрецию ПТГ).
4. Гормональные рецепторы:
A. Всегда располагаются на поверхности клеток.
B. При активации могут оказывать свои эффекты через каскад вторичных мессенджеров.
C. При активации могут оказывать свои эффекты путем прямой регуляции транскрипции генов.
D. Независимо от начальной локализации всегда транслоцируются в ядро для активации своих эффектов.
E. В и С.
Ответ Е. Поскольку существуют рецепторы клеточной поверхности, которые не транслоцируются для активации своего действия, и ядерные рецепторы для ГКС, варианты А и D неверны. Оба варианта В и С верны для рецепторов клеточной поверхности и ядерных рецепторов соответственно.
5. Генетические нарушения по типу гормонорезистентности:
A. Связаны с мутациями приобретения функций в рецепторах гормонов.
B. Всегда связаны с мутациями утраты функций в ядерных рецепторах.
C. Связаны с гиперактивностью ферментов, способствующих распаду гормонов.
D. Могут быть обусловлены мутациями утраты функций в генах, кодирующих рецепторы клеточной поверхности, ядерные рецепторы или иные компоненты пути трансдукции сигналов.
E. Обычно связаны с аутоиммунными заболеваниями. Ответ D. Все приведенные примеры могут являться причинами наследственных заболеваний с гормонорезистентностью, а не только В. Варианты А, С и Е не подходят.