Нейроэндокринология изучает взаимодействие между НС и эндокринной системой, за счет которого осуществляется поддержание метаболического и гормонального гомеостаза. Одна из функций НС — обеспечивать адаптацию организма к условиям окружающей среды. Наиболее важными факторами окружающей среды служат температура и освещение, предсказуемо меняющиеся каждый день.
В нашем организме есть циркадные часы, следящие за тем, чтобы физиологические параметры и поведение соответствовали времени суток. НС воспринимает температуру и свет и использует это в качестве подсказок для управления приемом пищи, активностью, сном и другими жизненно важными функциями.
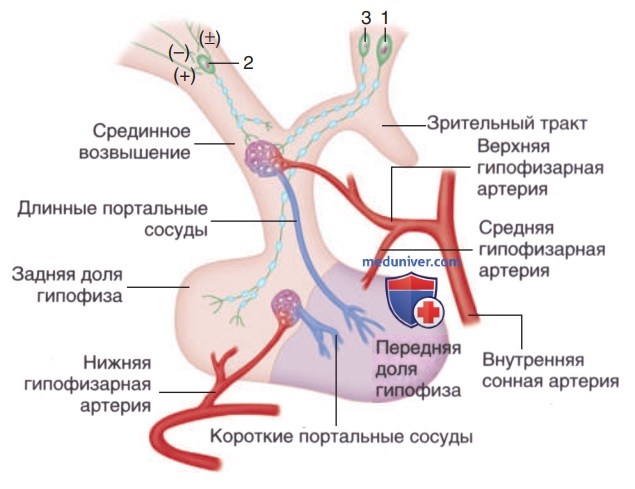
Нейрогипофизарные нейроны происходят из паравентрикулярных и супраоптических ядер и проходят через гипоталамо-гипофизарный ствол к задней части гипофиза, где нервные окончания выделяют вазопрессин и окситоцин. Гипофизиотропные нейроны, расположенные в ядрах гипоталамуса, проецируют свои аксоны к срединному возвышению нейрогипофиза, где происходит секреция гормонов, которые, в свою очередь, стимулируют или ингибируют высвобождение пептидов и биоаминов в проксимальные гипоталамо-гипофизарные сосуды (рис. 1).
Рисунок 1. Нейроэндокринная организация гипоталамуса и гипофиза. Задняя доля гипофиза питается нижней гипофизарной артерией, а гипоталамус — верхней гипофизарной артерией (обе являются ветвями внутренней сонной артерии). Основной кровоток в передней доле гипофиза носит венозный характер благодаря длинным портальным сосудам, которые соединяют портальное капиллярное русло срединного возвышения с венозными синусоидами передней доли гипофиза. Гипофизиотропный нейрон 3 в мелкоклеточной части паравентрику-лярного ядра и нейрон 2 в аркуатном ядре оканчиваются в срединном возвышении на портальных капиллярах. Эти нейроны тубероинфунди-булярной системы секретируют рилизинг- и ингибирующие гормоны гипоталамуса в портальные вены для их доставки в переднюю долю гипофиза. Нейрон 2 иннервируется моноаминергическими нейронами. Стоит отметить, что многочисленные сигналы, поступающие на подобные нейроны (в качестве примера используется нейрон 2), могут быть стимулирующими, ингибирующими или нейромодуляторными, при которых другой нейрон может повлиять на высвобождение нейротрансмиттера. Нейрон 1 соответствует пептидергическому нейрону, начинающемуся в крупноклеточной части паравентрикулярного ядра или супраоптического ядра и следующему напрямую в заднюю долю гипофиза в рамках гипоталамо-нейрогипофизарного тракта.
Кровоснабжение срединного возвышения обеспечивается верхней гипофизарной артерией и ее богато ветвистых капиллярных лож, которые достигают срединного возвышения, а затем сливаются, образуя воротные вены, проходящие через гипоталамо-гипофизарный тракт и оканчивающиеся в гипофизе. Нейроэндокринная система имеет несколько петель отрицательной обратной связи, которые регулируют выработку гормонов гипофиза, а также гормонов органов-мишеней.
Гормоны органов-мишеней регулируют функцию как гипоталамуса, так и гипофиза, замыкая петли отрицательной обратной связи. Под действием таких факторов, как циркадные ритмы, стресс, изменение питания, системные заболевания, происходит активация данных петель отрицательной обратной связи.
а) Гипофизотропные гормоны. Гипофизиотропные гормоны регулируют эндокринную функцию гипофиза путем высвобождения различных гормонов, которые впоследствии влияют на секрецию гормонов гипофиза. Некоторые петли отрицательной обратной связи избыточны, при этом ряд тропных гипофизарных гормонов оказывает влияние более чем на один гипофизарный гормон.
Более того, выработка самих тропных гормонов гипофиза регулируется сигналами, берущими начало на более высоких уровнях ГМ, таких как таламус и молекулярные часы.
1. Тиреотропин-рилизинг-гормон. Основная нейроэндокринная функция тиреотропин-рилизинг-гормона заключается в стимуляции синтеза и высвобождения ТТГ и пролактина. Тиреотропинрилизинг-гормон синтезируется из предшественника препро-тиреотропин-рилизинг-гормона, который затем превращается в биологически активный тиреотропинрилизинг-гормон.
Танициты, выстилающие третий желудочек, содержат приоглутамилпептидазу II — фермент, который расщепляется тиреотропин-рилизинг-гормоном с целью регуляции его количества, поступающего к дистальной части аденогипофиза. При гипотиреозе повышенный синтез тиреотропин-рилизинг-гормона и связывание с рецепторами данного гормона тироцитов приводит к увеличению уровней ТТГ и пролактина. Коррекция гипотиреоза заместительной терапией гормонами ЩЖ снижает повышенные уровни как ТТГ, так и пролактина.
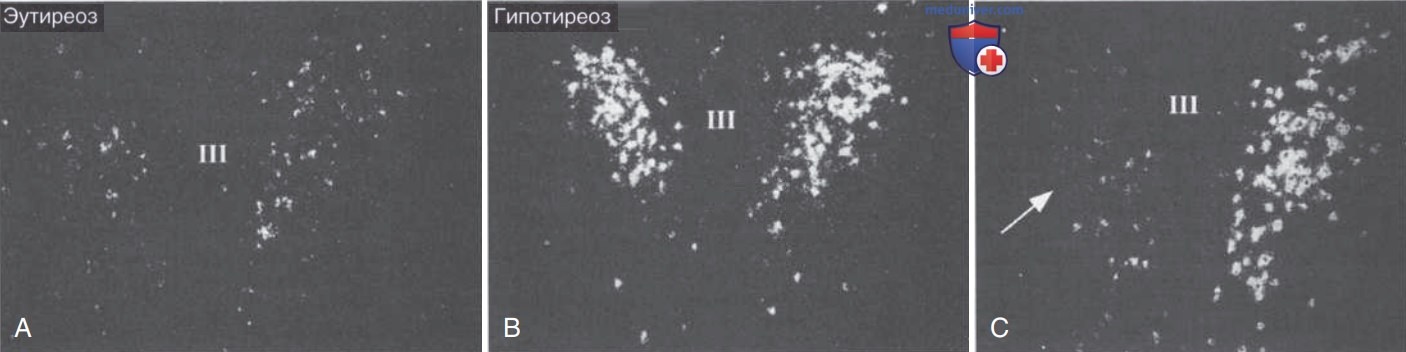
В свою очередь, при первичном гипертиреозе уровни ТТГ значимо подавлены из-за прямого действия гормонов ЩЖ на экспрессию матричной РНК тиреотропин-рилизинг-гормона в паравентрикулярном ядре (рис. 2). Известно, что тиреотропин-рилизинг-гормон служит основным регулятором синтеза и секреции ТТГ, однако его роль в регуляции пролактин-рилизинг фактора изучена менее подробно.
Рисунок 2. Радиоаутограммы гибридизации in situ матричной РНК про-тиреотропин-рилизинг-гормона в паравентрикулярном ядре крыс c (А) эутиреозом и (Б) гипотиреозом. Стоит отметить значительное увеличение сигнала гибридизации на снимке Б. На снимке В представлен эффект стереотаксического размещения имплантата с гормоном щитовидной железы рядом с одним из паравентрикулярных ядер у животного с гипотиреозом. Видна выраженная асимметрия сигнала гибридизации с его уменьшением на стороне импланта (стрелка; III — 3-й желудочек)
2. Гонадотропин-рилизинг-гормон. ГнРГ представляет собой пептид из 10 аминокислот; вырабатывающие ГнРГ нейроны берут свое начало вне ЦНС, в эпителии медиальной части обонятельной плакоды. Происхождение ГнРГ-продуцирующих нейронов из обонятельного эпителия представляет клинический интерес в связи с синдромом Каллманна, при котором дефицит ГнРГ сочетается с врожденным отсутствием обонятельных луковиц.
Одна из генетических форм данного синдрома вызвана утратой аносмина — белка, облегчающего эмбриональную миграцию нейронов, продуцирующих ГнРГ.
Основная функция ГнРГ заключается в контроле репродуктивной оси. ГнРГ секретируется в пульсирующем режиме в гипоталамо-гипофизарный портальный кровоток и затем достигает передней доли гипофиза, где стимулирует секрецию ЛГ и ФСГ. У людей выделены две разные формы ГнРГ: ГнРГ-l и ГнРГ-2. Функция второй формы изучена недостаточно — известно, что она не участвует в регуляции секреции ЛГ и ФСГ.
Как только ГнРГ-нейрон мигрирует в гипоталамус, активируется генератор импульсов ГнРГ. В раннем послеродовом периоде возрастает секреция ГнРГ, что приводит к временной активации выработки половых гормонов, называемой «мини-пубертатом». В детстве гонады реагируют на экзогенную стимуляцию ЛГ и ФСГ, но остаются в состоянии покоя, потому что эндогенное пульсирующее высвобождение ГнРГ остается подавленным до периода полового созревания. Процессы, поддерживающие детский и препубертатный периоды покоя, до конца не ясны.
ГнРГ может обусловливать дифференцированную секрецию ЛГ и ФСГ из-за вариабельной чувствительности петли обратной связи к стероидным и пептидным гормонам, а также к ГнРГ. Пульсирующая секреция ГнРГ напрямую повышает экспрессию рецептора ГнРГ, тогда как постоянное введение ГнРГ данную экспрессию подавляет. У женщин положительная и отрицательная регуляция отрицательной обратной связи в отношении стероидных гормонов в рамках гипоталамо-гипофизарно-гонадной оси происходит на уровне как гипоталамуса, так и гипофиза.
Влияние на гипоталамус зависит от амплитуды и частоты импульсного высвобождения ГнРГ, тогда как влияние на гипофиз модулируется реакцией гонадотропинов на ГнРГ. У мужчин тестостерон снижает пульсирующую секрецию ГнРГ, что приводит к уменьшению амплитуды и частоты выработки ГнРГ, а также к подавлению ответа гонадотропинов на экзогенный ГнРГ.
В дополнение к регуляции пульсации и экспрессии рецепторов ГнРГ кисспептин может косвенно стимулировать высвобождение ЛГ и ФСГ, воздействуя на ГнРГ-нейроны. Уровни кисспептина повышаются непосредственно перед началом полового созревания. Мутации в гене кисспептина приводят к гипоталамическому гипогонадизму и нарушению полового развития, что подтверждает его роль в функционировании репродуктивной оси.
Эффект отрицательной обратной связи ингибина — пептида, продуцируемого клетками Сертоли яичек и клетками гранулезы яичников — преимущественно обусловлен воздействием на ФСГ на уровне гипофиза, где ингибин вызывает снижение чувствительности гонадотропов к ГнРГ. Родственный яичниковый белок активин стимулирует базальную и ГнРГ-зависимую выработку и высвобождение ФСГ из гипофиза, но его основной эффект заключается в стимулировании реакции клеток гранулезы яичника на ФСГ.
Другой гонадный пептид фоллистатин ингибирует ГнРГ-индуцированное повышение уровня ФСГ, возникающее после овариэктомии. Механизм его действия объясняется в первую очередь связыванием с активином. Данные пептиды яичников также обнаруживаются в гипофизе и поэтому могут оказывать дополнительное местное воздействие на секрецию гонадотропинов.
Пульсирующее введение экзогенного ГнРГ помогает восстановить нормальную половую функцию и фертильность при вторичном гипогонадотропном гипогонадизме, обусловленном дефицитом ГнРГ. Агонисты ГнРГ длительного действия также способны вызывать подавление рецепторов ГнРГ и секреции гонадотропинов при различных состояниях, в том числе при преждевременном половом созревании, раке предстательной железы, раке МЖ, миоме матки и эндометриозе. При подобных заболеваниях применяют прямые антагонисты ГнРГ, конкурентно связывающиеся с рецепторами ГнРГ.
3. Соматостатин. Соматостатин (также известный как фактор, угнетающий выделение СТГ) подавляет секрецию СТГ. Взаимодействие между соматостатином и соматотропин-рилизинг-гормоном, а также их влияние на секрецию СТГ довольно сложны. Эпизоды секреции СТГ вызваны повышенной выработкой соматотропин-рилизинг-гормона, что часто сопровождается снижением уровня соматостатина.
Для сравнения стоит отметить, что базальные или минимальные концентрации СТГ сопровождаются понижением уровня соматотропин-рилизинг-гормона и повышением уровня соматостатина. Соматостатин также подавляет как базальную, так и стимулированную секрецию ТТГ. Однако СТГ в ~10 раз чувствительнее к ингибированию соматостатином, нежели ТТГ; в связи с этим предполагают, что физиологическая роль соматостатина в ингибировании секреции ТТГ ограничена. К другим тканям, содержащим соматостатин, относятся слизистая оболочка кишечника, D-клетки островков ПЖЖ, ауэрбахово сплетение.
Благодаря своему паракринному и эндокринному действию соматостатин подавляет секрецию инсулина, глюкагона, гастрина, секретина, холецистокинина, вазоактивного интестинального полипептида и других гормонов ЖКТ, которые, в свою очередь, регулируют такие функции, как секреция желудочного сока, опорожнение желудка, сокращение желчного пузыря и висцеральный кровоток. Аналоги соматостатина используются для лечения акромегалии, карциноидных опухолей, вазоинтестинальный пептид-секретирующих опухолей, ТТГ-секретирующих опухолей гипофиза и опухолей островков ПЖЖ.
4. Кортикотропин-рилизинг-гормон. Кортикотропин-рилизинг-гормон стимулирует высвобождение эквимолярных количеств АКТГ, β-эндорфина, β-липотропина, меланоцит-стимулирующего гормона и других пептидов, вырабатываемых из проопиомеланокортина. Кортикотропин-рилизинг-гормон и вазопрессин обладают синергичным действием в отношении секреции АКТГ: высвобождение АКТГ в ответ на стресс на 75% обусловлено кортикотропин-рилизинг-гормоном и на 25% — вазопрессином.
Однако, поскольку высвобождение кортикотропин-рилизинг-гормона и вазопрессина не всегда скоординировано, при стрессе может избирательно активироваться субпопуляция нейронов кортикотропин-рилизинг-гормона, содержащих вазопрессин.
В петле отрицательной обратной связи кортизол снижает секрецию АКТГ на уровне и гипоталамуса, и гипофиза. АКТГ и β-эндорфин также участвуют в отрицательной обратной связи, снижая высвобождение гипоталамусом кортикотропин-рилизинг-гормона. Также на секрецию кортикотропин-рилизинг-гормона влияют центральные биогенные амины, опиоиды и пептиды. Воспалительные монокины, в том числе IL-1, IL-6 и ФНО-α, стимулируют синтез и высвобождение кортикотропин-рилизинг-гормона и вазопрессина из гипоталамуса.
Результирующее повышение уровня кортизола снижает интенсивность воспалительного ответа и связанного с ним высвобождения монокинов, замыкая тем самым петлю отрицательной обратной связи. Рецепторы кортикотропин-рилизинг-гормона широко представлены в ГМ и активируются под действием СНС, а подавляются под действием парасимпатической. Кортикотропин-рилизинг-гормон также способен регулировать МТ, так как переедание увеличивает уровень лептина, который стимулирует кортикотропин-рилизинг-гормон, что, в свою очередь, подавляет аппетит и увеличивает расход энергии.
Биосинтетический кортикотропин-рилизинг-гормон человека используют для проведения ДД болезни Кушинга и синдрома эктопической секреции АКТГ. В рамках подобной пробы пациенты с болезнью Кушинга реагируют повышением уровня гормона на >35%, тогда как при эктопической секреции АКТГ наблюдается более слабая реакция. При неоднозначных результатах проба с кортикотропин-рилизинг-гормоном в ходе двухстороннего забора образцов крови на АКТГ из каменистого синуса зачастую предоставляет дополнительную информацию для ДД.
5. Соматотропин-рилизинг-гормон. Соматотропин-рилизинг-гормон дозозависимо стимулирует секрецию СТГ. Повторное введение соматотропин-рилизинг-гормона может способствовать высвобождению достаточных количеств СТГ у детей с дефицитом соматотропин-рилизинг-гормона для увеличения уровней инсулиноподобного фактора роста-1 и ускорения роста. Отрицательная обратная связь, которую реализуют инсулиноподобный фактор роста-1 и СТГ в отношении секреции СТГ, снижает концентрацию соматотропин-рилизинг-гормона и увеличивает концентрацию соматостатина.
Данный эффект отрицательной обратной связи обладает клинической значимостью: при заболеваниях с дефицитом инсулиноподобного фактора роста-1, например ХПН и циррозе печени, отмечаются высокие уровни циркулирующего СТГ.
У детей, у которых мутации в рецепторах СТГ обусловливают отсутствие их реакции на данный гормон (так называемая карликовость Ларона), уровни инсулиноподобного фактора роста-1 очень низкие, а уровни СТГ достаточно высоки.
6. Пролактин-ингибирующий фактор. Ингибирующий компонент гипоталамической регуляции секреции пролактина преобладает над стимулирующим компонентом. Дофамин является ведущим фактором, ингибирующим пролактин при определенных физиологических состояниях (в частности, лактации), когда повышение уровня пролактина сопровождается одновременным падением концентрации дофамина и повышением уровней пролактин-рилизинг факторов (например, вазоинтестинального пептида).
При блокаде эндогенных дофаминовых рецепторов ЛП (например, нейролептиками) уровни пролактина повышаются. Поражения, при которых нарушаются базальные гипоталамо-нейронные пути, несущие дофамин к срединному возвышению, либо нарушается портальный кровоток (например, краниофарингиомы и другие крупные объемные образования), снижают количество дофамина, достигающего гипофиза, и могут обусловливать гиперпролактинемию.
7. Пролактин-рилизинг фактор. К гипоталамическим пептидам (не считая тиреотропин-рилизинг-гормона), обладающим активностью пролактин-рилизинг фактора, относится вазоинтестинальный пептид, который стимулирует синтез и высвобождение пролактина в гипоталамо-гипофизарный портальный кровоток. В рамках предшественника вазоинтестинального пептида еще один пептид подобного размера (пептид гистидин-метионин) также обладает активностью пролактин-рилизинг фактора.
б) Эндогенные опиоидные пептиды. Эндогенные опиоидные пептиды, имеющие общую последовательность из 5 аминокислот на амино-конце [Тир-Гли-Гли-Фен-Мет (или Лей)], связываются с рецепторами эндогенных опиоидов. Опиодный μ-рецептор опосредует большинство опиоидных эндокринных эффектов и обезболивание. Его первичным пептидным лигандом является β-эндорфин, который образуется из проопиомеланокортина. Для опиоидного δ-рецептора, который опосредует поведенческие, анальгетические и эндокринные эффекты, основными пептидными лигандами являются мет- и лейэнкефалины — производные проэнкефалина А.
Налоксон в основном эффективно блокирует μ-рецепторы, но не 6-рецепторы. Каппа-рецептор, опосредующий седацию и атаксию, в первую очередь связывается с динорфином и неоэндорфинами. Четвертый рецептор, частично гомологичный с 6-рецептором, связывается с ноцицептином — эндогенным пептидом из 17 аминокислот.
Проопиомеланокортин, который представляет собой пептид-предшественник массой 31 кДа, включает АКТГ, β-липотропин и β-эндорфин. Главными продуктами его расщепления в передней доле гипофиза являются АКТГ и β-липотропин, причем большая часть последнего преобразуется в β-эндорфин. В промежуточной доле гипофиза основными продуктами его становятся α-меланоцит-стимулирующий гормон, кортикотропиноподобный промежуточный пептид, β-эндорфин и γ-липотропин. Однако в ГМ проопиомеланокортин в первую очередь превращается в β-эндорфин, γ-липотропин и АКТГ, при этом большая часть АКТГ затем преобразуется в кортикотропиноподобный промежуточный пептид и α-меланоцитстимулирующий гормон.
Пентапептидные энкефалины образуются из предшественника проэнкефалина А массой 28 кДа. Нейрональные перикарионы с энкефалинами имеют широкое представление в ГМ. Динорфин представляет собой пептид из 17 аминокислот, образующийся из предшественника массой 28 кДа под названием проэнкефалин В, или продинорфин. Данный пептид, а также более короткие пептиды под названиями α-неоэндорфин (из 10 аминокислот) и β-неоэндорфин (из 9 аминокислот) реагируют практически исключительно с κ-рецептором. Ноцицептин, который представляет собой пептид из 17 аминокислот, образующийся из κ-предшественника под названием проноцицептин, и его рецептор, который также присутствует в гипоталамусе и других отделах ГМ, являются источниками моноаминовых нейромедиаторов.
Считают, что ноцицептин обладает антиопиоидным и антиноцицептивным действием. Опиоидные пептиды, влияющие на секрецию гормонов в аденогипофизе, продуцируются посредством модуляции гипоталамических биогенных аминов и тропных гипофизарных факторов.
Специфические функции различных опиоидных пептидов и их рецепторов до конца не изучены, однако есть данные об их роли в различных функциях организма (стресс, психические заболевания, устойчивость и зависимость от наркотических веществ, беременность, пищевое и питьевое поведение, функция ЖКТ, обучение, память, подкрепление навыков, реакции ССС, дыхание, терморегуляция, активность опорно-двигательного аппарата, судорожные припадки, электрическая активность ГМ, нейроиммунная активность). Эндогенные опиоиды ингибируют секрецию гонадотропинов вследствие их воздействия на секрецию ГнРГ.
Экзогенное введение аналогов β-эндорфина или энкефалина повышает сывороточные уровни СТГ и пролактина, однако блокада эндогенных опиоидных путей налоксоном не способствует изменению базальных и стимулированных концентраций СТГ и пролактина. Опиоиды посредством отрицательной обратной связи действуют на уровни АКТГ и β-эндорфины, а налоксон повышает базальные и стимулированные концентрации АКТГ. В целом действие эндогенных опиоидов на нормальную физиологическую регуляцию различных гормонов гипофиза у человека минимально. Однако экзогенные опиоиды в фармакологических дозировках могут нарушать секрецию ГнРГ и гонадотропина, вызывая гипогонадизм (снижение либидо, сексуальной функции и фертильности) и надпочечниковую недостаточность (вследствие нарушения секреции кортикотропин-рилизинг-гормона и АКТГ).
в) Ритмы центральной нервной системы и нейроэндокринная регуляция. Гормоны гипофиза секретируются в пульсирующей манере, но с учетом основных ритмов. Амплитуда пульсирующей секреции гормона гипофиза отражает количество рилизинг-гормона, а также факторов, меняющих чувствительность гипофиза к данному рилизинг-гормону. В связи с этим амплитуда пульсирующей секреции снижается при действии ингибирующих факторов (например, сома-тотропин-рилизинг-гормона против соматостатина), поступлении обратной связи от гормонов органов-мишеней, нутритивных факторов и предварительной стимуляции, которая может истощать пул высвобождаемого гормона.
Частота пульсирующей секреции обусловливается частотой, с которой высвобождается тропный гипофизарный фактор, который, в свою очередь, регулируется гипоталамической системой генератора импульсов.
Внутренний ритм гипофиза обладает небольшой амплитудой (частота секреции — каждые 2-10 мин). Пульсирующее высвобождение тропных гипофизарных рилизинг-факторов накладывается на этот внутренний ритм, при этом оно также может сопровождаться устранением соответствующего ингибирующего фактора. Ультрадианные ритмы длятся <1 дня, периодичность циркадианных ритмов составляет около 24 ч (синхронизируется с внешними триггерами, например циклом свет-темнота), а инфрадианных ритмов — >24 ч. Супрахиазматическое ядро функционирует в качестве циркадианного водителя ритма и получает электрические импульсы, индуцированные светом, а затем передает эти импульсы эпифизу, где они превращаются в гормональные сигналы. К инфрадианным ритмам относится гравитационное влияние луны, которое влияет на менструальный цикл.
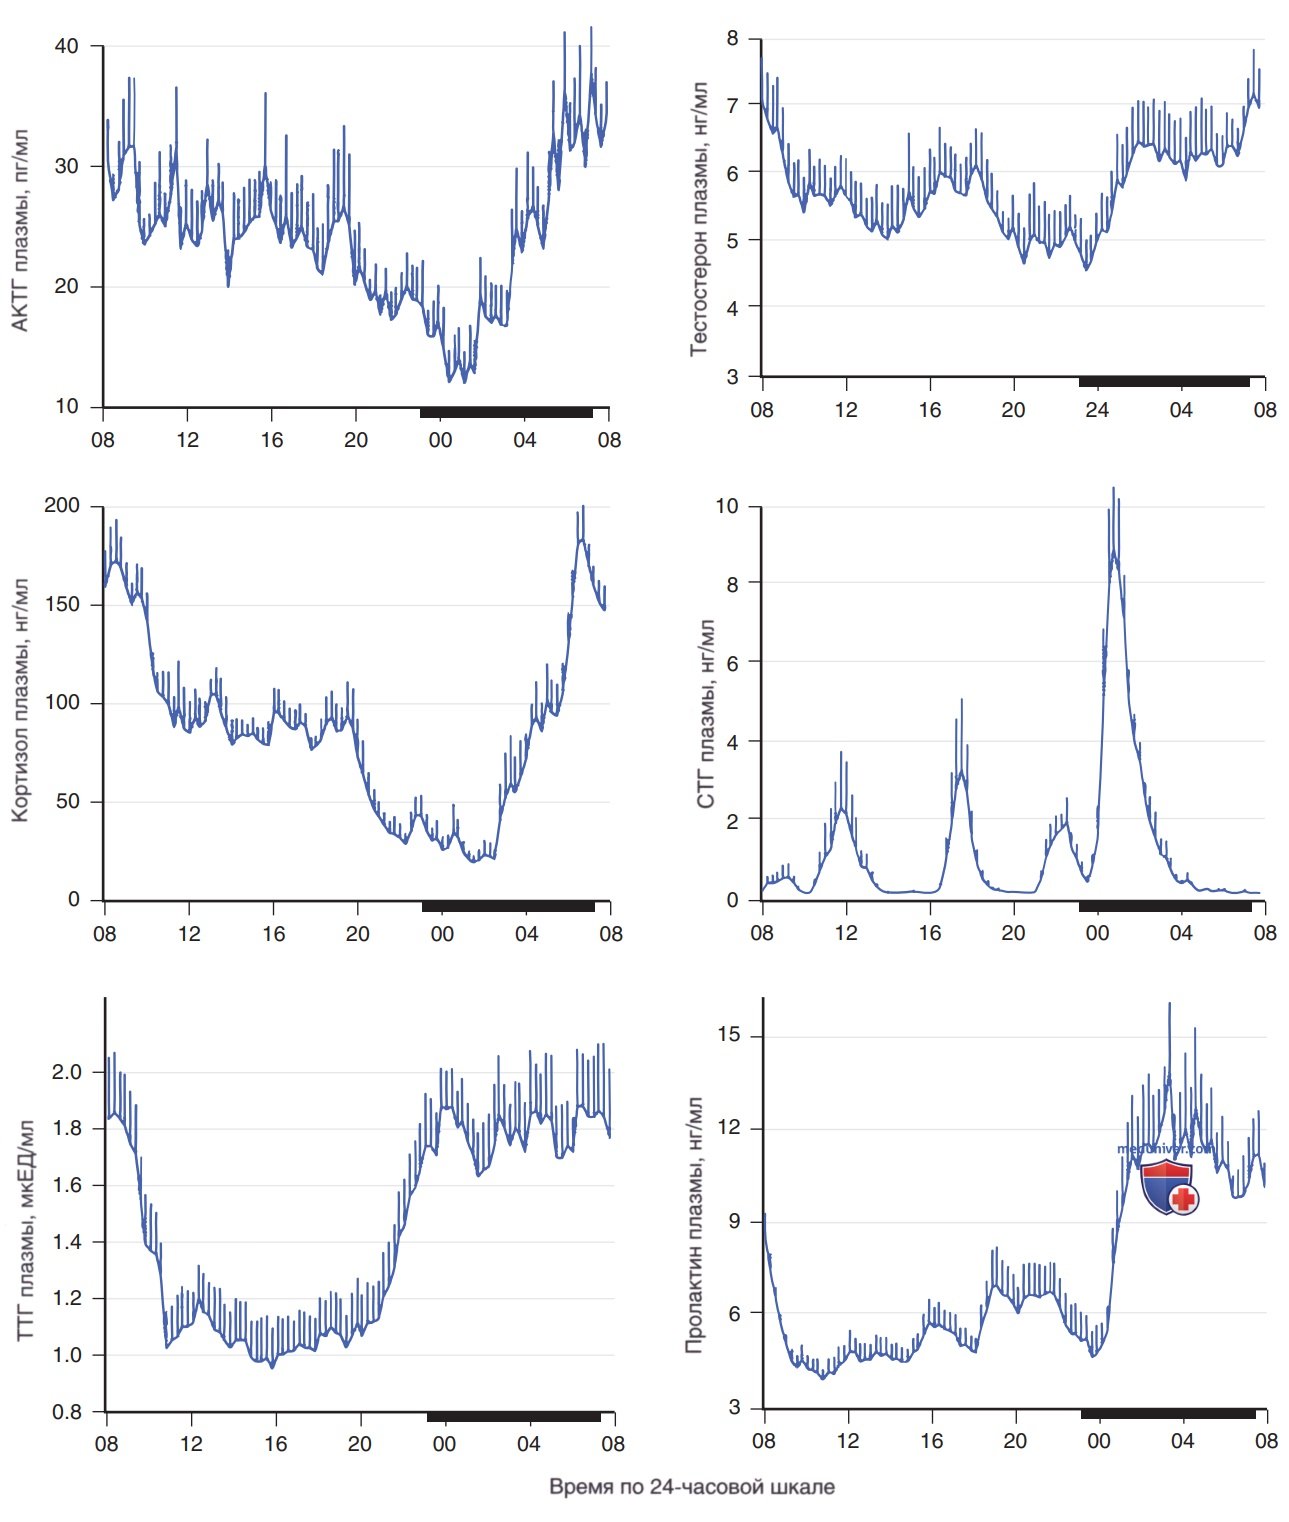
Циркадианные и инфрадианные ритмы модулируются циклом сна-бодрствования. Например, секреция СТГ, пролактина, АКТГ и ЛГ (в пубертате) больше привязана к циклу сна-бодрствования, нежели к циклу темно-светло (рис. 3). Максимальный уровень каждого из этих гормонов регистрируется после начала сна.
Рисунок 3. Циркадианные гормональные ритмы. Средние (+СОС) профили уровней адренокортикотропного гормона, кортизола, тиреотропного гормона, тестостерона, соматотропного гормона и пролактина плазмы в группе 8-12 здоровых людей мужского пола, исследованные с 15-мин интервалами в течение 24 ч. Время сна отмечено черными столбиками
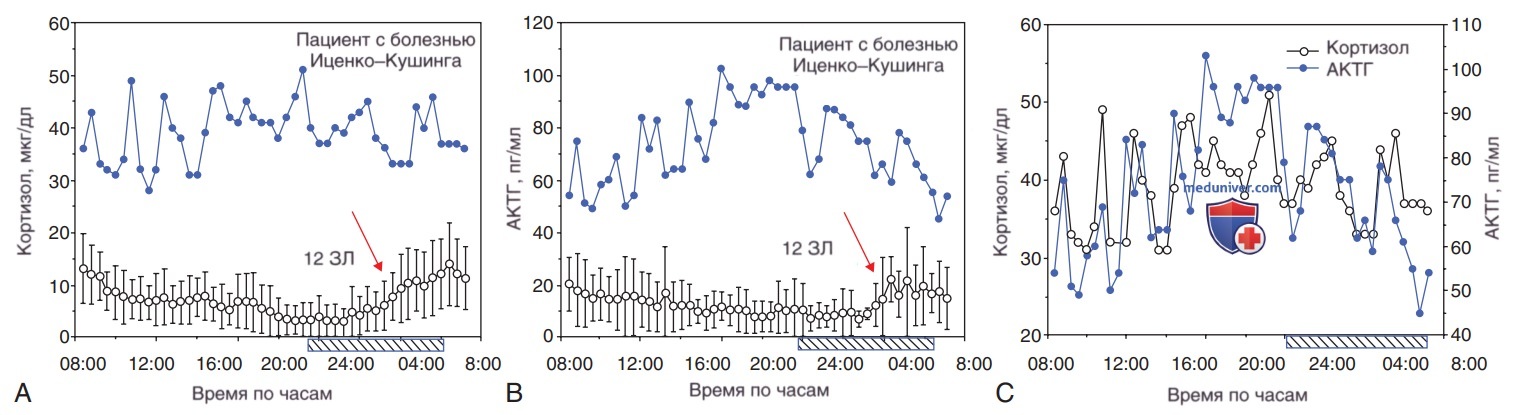
Заметные суточные колебания АКТГ и кортизола часто указывают на то, нормально ли функционирует эта система (рис. 4). Утрата данного суточного ритма происходит при нарушении регуляции кортикотропин-рилизинг-гормона, которое может возникать при депрессии, злоупотреблении алкоголем или автономной секреции АКТГ при болезни Иценко-Кушинга. На самом деле суточный ритм секреции кортизола является диагностическим тестом при синдроме Иценко-Кушинга.
Рисунок 4. Суточный профиль секреции адренокортикотропного гормона и кортизола у 12 здоровых людей (пустые кружки; вертикальные линии соответствуют стандартной ошибке) и 1 пациента с гипофиз-зависимой болезнью Иценко-Кушинга (заштрихованные кружки). Образцы крови получали каждые 20 мин непрерывно в течение 24 ч, без нарушения сна (штриховая линия). А. Кортизол. D. Адренокортикотропный гормон. Стоит обратить внимание на нормальный ожидаемый суточный паттерн увеличения концентрации адренокортикотропного гормона и кортизола перед пробуждением (красная стрелка). Помимо нарушения паттерна, у пациента с болезнью Иценко-Кушинга абсолютные уровни гормонов значительно превышают таковые у здоровых людей. C. Графики уровней кортизола и адренокортикотропного гормона, наложенные друг на друга. Стоит обратить внимание на прямую корреляцию пиков адренокортикотропного гормона и кортизола, а также обратный суточный паттерн, наблюдаемый у данного пациента
Интересные изменения происходят с секрецией гонадотропинов, когда ребенок через пубертат становится взрослым человеком. В раннем пубертате амплитуда импульсов возрастает в ходе ночного сна (особенно для ЛГ), однако это ночное увеличение концентрации исчезает во взрослом возрасте. У пациентов с нервной анорексией характер секреции гонадотропинов зачастую «откатывается» к подобному пубертатному. Данный феномен свидетельствует о том, что композиционный состав тела может влиять на пульсирующую секрецию гонадотропинов. Процентное содержание жировой ткани в теле также может влиять на время начала пубертата. В последних исследованиях показано, что уровни лептина являются сигналом, указывающим на изменения композиционного состава тела.
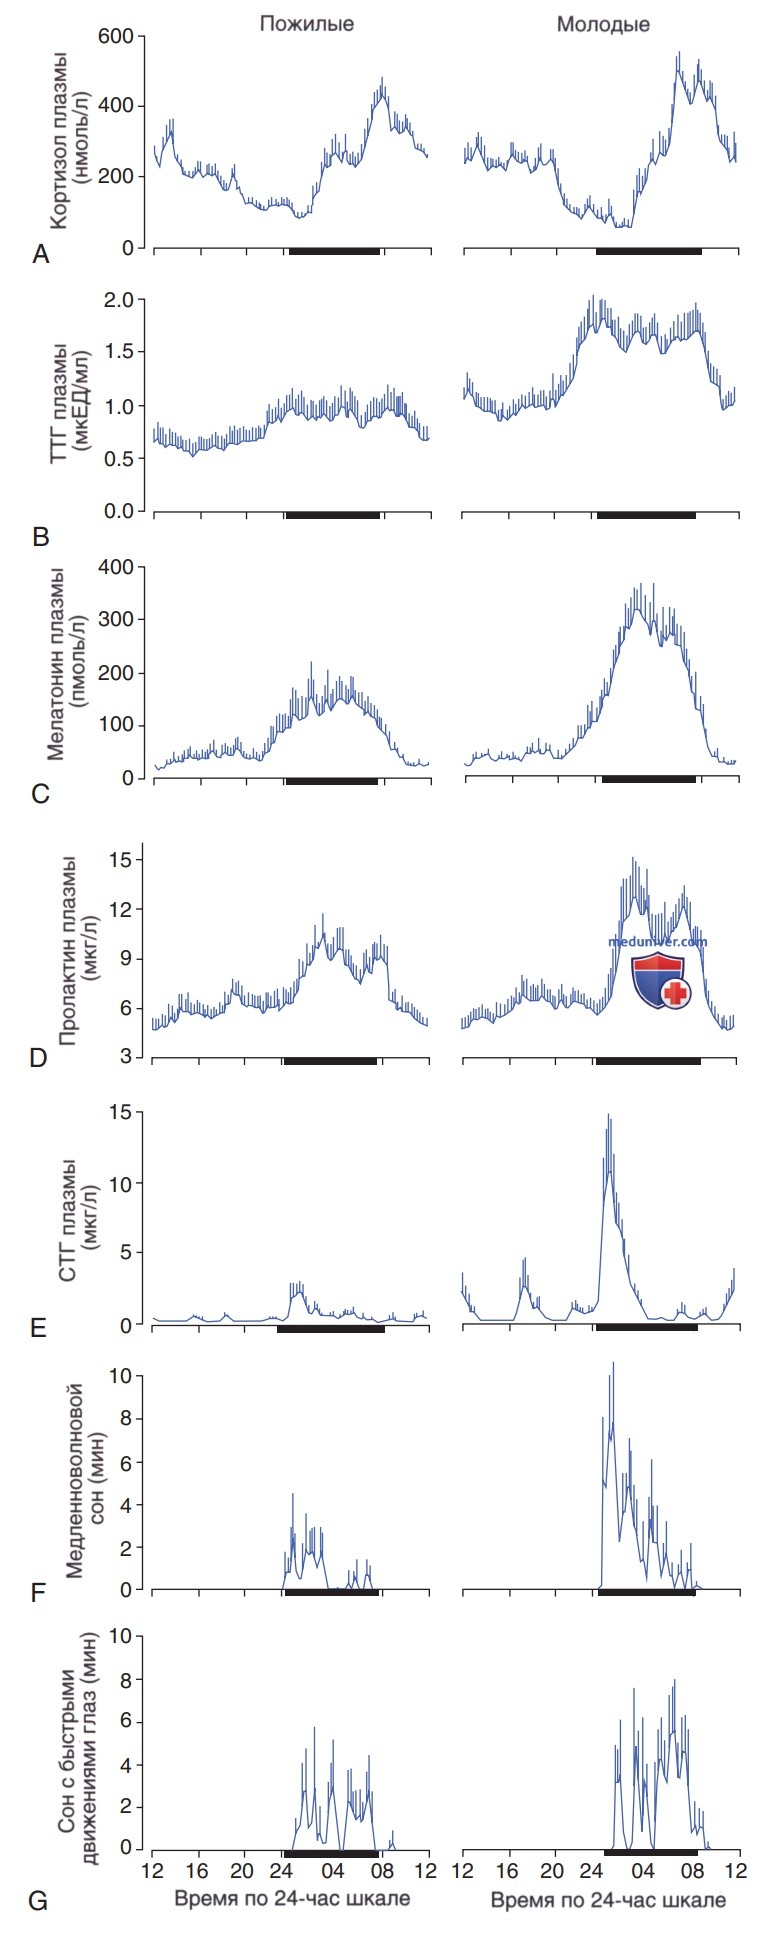
Гипоталамо-гипофизарная ось с возрастом также меняется. Неизвестно, является ли изменение циркадианного ритма причиной нарушения сна у пожилых. Однако хорошо известно, что по мере старения связи в гипоталамо-гипофизарной оси притупляются (рис. 5). Кроме того, изменения в гормональной среде, вызванные депривацией сна и нарушением осей, обусловливают значимые метаболические последствия (развитие АГ, нарушение толерантности к глюкозе).
Рисунок 5. Средние 24 ч профили уровней кортизола (А), тиреотропного гормона (B), мелатонина (C), пролактина (D) и соматотропного гормона (E) плазмы, распределение стадий медленных волн (SW) (F) и быстрых движений глаз (REM) (G) во сне пожилых и молодых испытуемых. Распределение стадий сна представлено в минутах по 150-мин интервалам между заборами образцов крови в стадиях SW и REM. Вертикальные линии соответствуют стандартной ошибке. Черные столбики соответствуют среднему периоду сна