Мозговое вещество надпочечников и катехоламины - кратко с точки зрения терапии
Мозговое вещество надпочечников занимает центральную часть надпочечника. Адреномедуллярные клетки называются хромаффиновыми клетками (они окрашиваются в коричневый цвет солями хрома). Хромаффиновые клетки дифференцируются в центре надпочечника в ответ на кортизол; некоторые хромаффиновые клетки также мигрируют, образуя параганглии.
Самое большое скопление хромаффиновых клеток за пределами мозгового вещества надпочечников находится вблизи уровня нижней брыжеечной артерии и называется органом Цукеркандля.
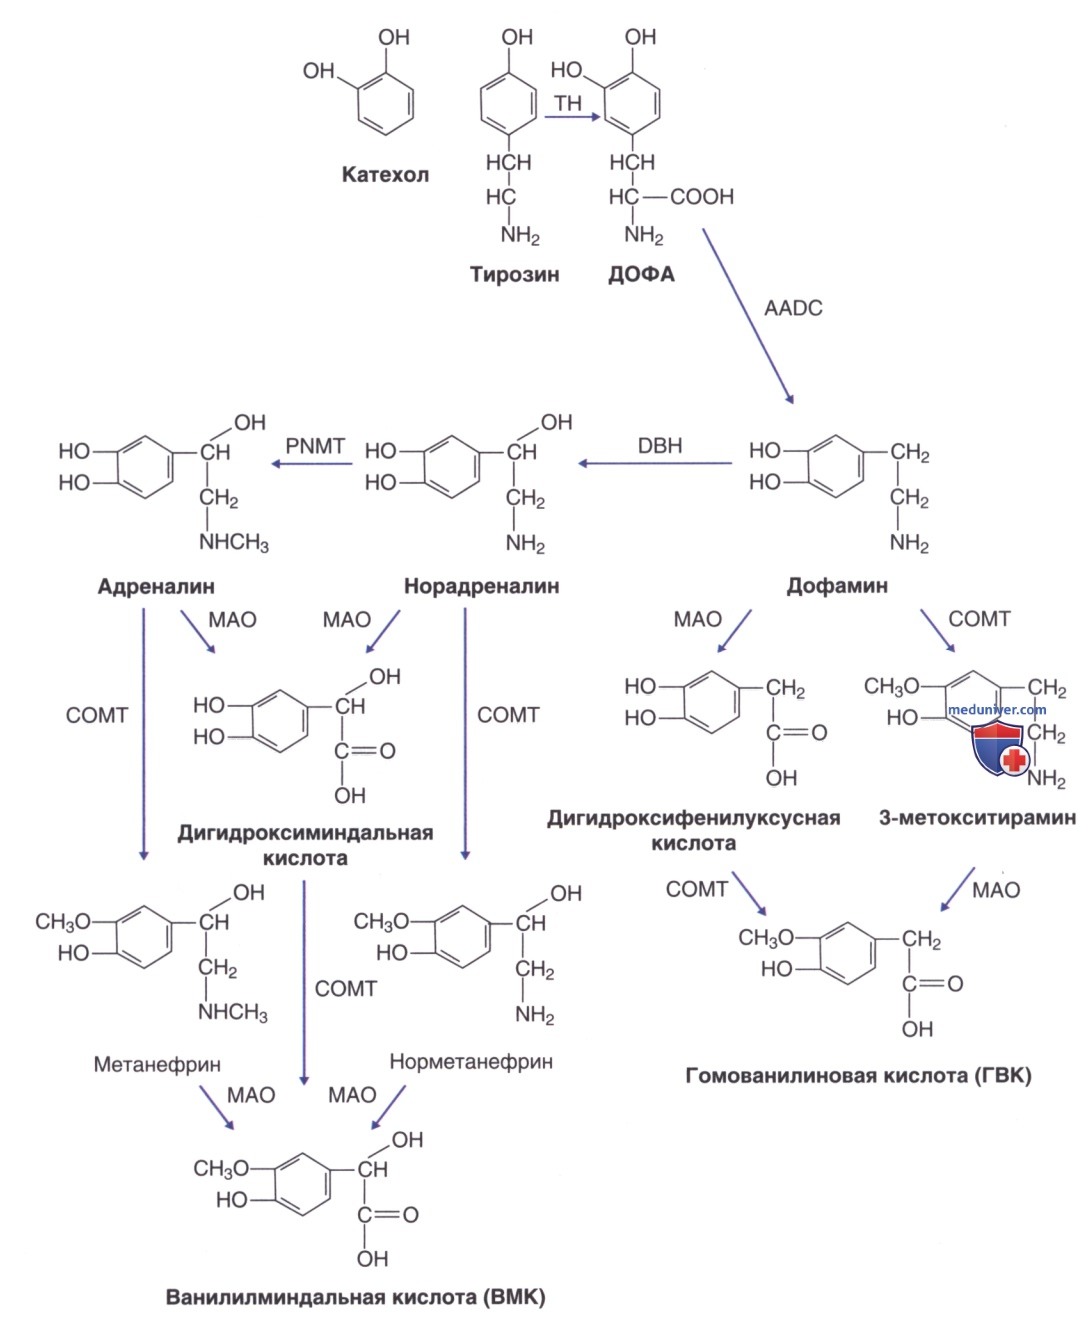
Катехоламины — это вещества, содержащие катехол (о-дигидроксибензол) и боковую цепь с аминогруппой — ядром катехола (рис. ниже). Адреналин синтезируется и накапливается в мозговом веществе надпочечников и высвобождается в системный кровоток.
Пути биосинтеза и метаболизма катехоламинов. Термин «катехоламин» связан с катехольной (о-дигидроксибензольной) структурой и боковой цепочкой, содержащей аминогруппу, — катехольным ядром (вверху слева). Тирозин превращается в 3,4-дигидроксифенилаланин (ДОФА) под действием тирозингидроксилазы (ТГ) в ходе лимитирующего скорость этапа. Под действием декарбоксилазы ароматических L-аминокислот (ДКАА) ДОФА превращается в дофамин. Дофамин гидроксилируется до норадреналина под действием β-гидроксилазы (ДБГ). Норэпинефрин превращается в адреналин под действием фенилэтаноламин-N-метилтрансферазы (Ф-N-MT), кортизол служит кофактором Ф-N-MT. По этой причине адреналинсекретирующие феохромоцитомы практически всегда локализуются в мозговом слое надпочечников. Катехоламины метаболизируются посредством двух ферментативных путей. Катехол-О-метилтрансфераза (КОМТ) превращает адреналин в метанефрин и норадреналин в норметанефрин в ходе реакции мета-О-метилирования. Метанефрин и норметанефрин окисляются до ванилилминдальной кислоты под действием моноаминоксидазы (МАО) в ходе окислительного дезаминирования. Кроме того, МАО может окислять адреналин и норадреналин до дигидроксиминдальной кислоты, которая затем под действием катехол-О-метилтрансферазы превращается в ванилилминдальную кислоту. Дофамин также метаболизируется с участием МАО и катехол-О-метилтрансферазы. Финальным метаболитом является гомованилиновая кислота
Норадреналин синтезируется и накапливается не только в мозговом веществе надпочечников, но и в периферических симпатических нервах. Дофамин, предшественник норадреналина, содержится в мозговом веществе надпочечников и периферических симпатических нервах.
Катехоламины оказывают множество кардиоваскулярных и метаболических эффектов, включая увеличение ЧСС, АД, сократительной способности миокарда и скорости АВ-проводимости. Три типа специфических адренергических рецепторов опосредуют их биологическое действие: α, β и DA. Указанные типы рецепторов делятся на подтипы: α1, α2, β1, β2, β3, DA1 и DA2.
Подтип al является постсинаптическим рецептором, который опосредует сокращение сосудов и гладких мышц; стимуляция вызывает сужение сосудов и повышение АД. Альфа-2-рецепторы расположены на пресинаптических окончаниях СНС и при активации ингибируют высвобождение норадреналина; стимуляция вызывает подавление центральной СНС, отток и снижение АД.
Стимуляция β1-рецепторов вызывает положительные инотропные и хронотропные эффекты на ССС, повышенную секрецию ренина в почках и липолиз в адипоцитах, а также бронходилатацию, расширение сосудов в скелетных мышцах, гликогенолиз и повышенное высвобождение норадреналина из симпатических нервных окончаний. Бета-3-рецептор регулирует расход энергии и липолиз. Рецепторы DA1 располагаются в сосудах ГМ, почек, брыжейки, а также в КА.
Стимуляция этих рецепторов приводит расширению указанных сосудов. Рецепторы DA2 являются пресинаптическими и локализуются в окончаниях СНС, симпатических ганглиях и ГМ; их стимуляция ингибирует высвобождение норадреналина, ингибирует передачу ганглиев и ингибирует высвобождение пролактина.
Катехоламины синтезируются из тирозина в процессе гидроксилирования и декарбоксилирования (см. рис. выше). Тирозин поступает с пищей или синтезируется из фенилаланина в печени и попадает в нейроны и хромаффинные клетки путем активного транспорта. Тирозин превращается в 3,4-дигидроксифенилаланин тирозингидроксилазой, лимитирующей скорость синтеза катехоламинов.
Альфа-метил-р-тирозин (метирозин) является ингибитором тирозингидроксилазы, который может быть использован при лечении у пациентов с опухолями, секретирующими катехоламины. Ароматическая L-аминокислотная декарбоксилаза катализирует декарбоксилирование 3,4-дигидроксифенилаланина до дофамина.
Дофамин активно транспортируется в гранулированные везикулы, которые гидроксилируются до норадреналина β-гидроксилазой дофамина. Эти реакции происходят в синаптических пузырьках адренергических нейронов и хромаффинных клеток мозгового вещества надпочечников. В мозговом веществе надпочечников норадреналин высвобождается из гранулы в цитоплазму, где фенилэтаноламин N-метилтрансфераза превращает его в адреналин.
Экспрессия фенилэтаноламина N-метилтрансферазы положительно регулируется глюкокортикоидами. Таким образом, опухоли, секретирующие катехоламины, которые выделяют в основном адреналин, локализуются в мозговом веществе надпочечников. В нормальной мозговой ткани надпочечников 80% высвобождаемых катехоламинов — это адреналин.
Биологический период полувыведения циркулирующих катехоламинов составляет 10-100 с. Таким образом, концентрация катехоламинов в плазме крови колеблется в широких пределах. Катехоламины выводятся из кровообращения либо путем обратного захвата нервными окончаниями СНС, либо путем метаболизма по двум ферментативным путям (см. рис. выше) с последующей конъюгацией сульфатов и почечной экскрецией. Около 90% катехоламинов, высвобождаемых в синапсы СНС, захватываются ближайшими нервными окончаниями (захват 1).
Захват 1 может блокироваться кокаином, ТЦА и фенотиазином. В экстранейрональных тканях также происходит захват катехоламинов (захват 2). Большинство из этих катехоламинов метаболизируются под действием катехол-О-метилтрансферазы. Метанефрин и норметанефрин окисляются до ванилилминдальной кислоты под действием МАО в ходе окислительного дезаминирования. Кроме того, МАО может окислять адреналин и норадреналин до 3,4-дигидроксиминдальной кислоты, которая затем под действием катехол-О-метилтрансферазы превращается в ванилил-миндальную кислоту.
В запасающих везикулах норадреналин защищен от метаболизирования под действием МАО. МАО и катехол-О-метилтрансфераза метаболизируют дофамин до гомованилиновой кислоты (см. рис. выше).