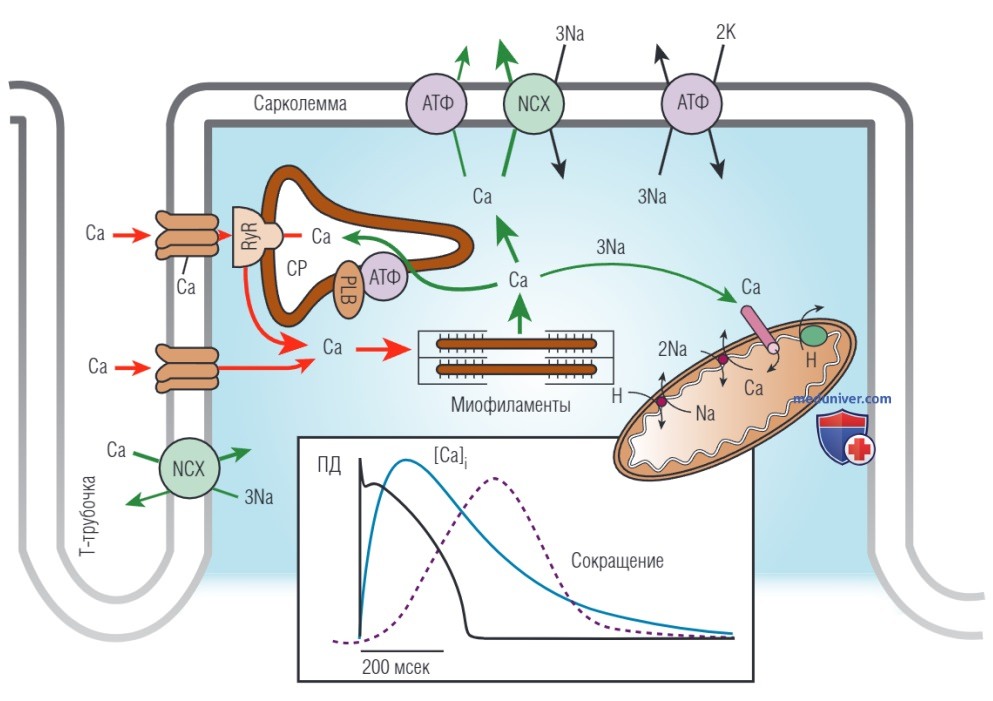
а) Механизм желудочковых аритмий. Нарушения в контроле высвобождения Са2+ из саркоплазматического ретикулума, представляют собой центральную патогенную аномалию при КПЖТ, хотя существуют значительные разногласия относительно молекулярных механизмов, вызывающих эти дефекты.
RyR2 и CASQ2 оба критически вовлечены в регуляцию сопряжения сердечного возбуждения и сокращения. Приток кальция через Са2+-каналы L-типа в клеточной мембране во время плато потенциала действия запускает более массивное высвобождение Са2+ (переходные процессы) из саркоплазматического ретикулума в цитозоль через активацию RyR2.
Этот процесс усиления, называемый кальций-индуцированным высвобождением кальция (CICR), вызывает быстрое увеличение цитозольной концентрации Са2+ до уровня, необходимого для оптимального связывания Са2+ с тропонином С и индукции сокращения. Во время диастолы большая часть избытка Са2+ в цитозоле повторно поступает в саркоплазматический ретикулум с помощью кальциевой АТФазы саркоплазматического/эндоплазматическо-го ретикулума (SERCA), активность которой контролируется фосфопротеином фосфоламбаном.
Кроме того, часть Са2+ вытесняется из клетки Na+/Са2+-обменником, чтобы уравновесить Са2+, который поступает с током. Повторяющиеся циклы высвобождения и захвата Са2+ обеспечивают основу для периодического повышения цитозольной концентрации Са2+ и сокращений миоцитов, и, следовательно, для работы сердца (см. рис. ниже).
Электромеханическое сопряжение. На вставке: диаграмма, показывающая взаимосвязь между трансмембранным потенциалом действия (ПД), током Са2+ и ответным сокращением в миокарде желудочка. NCX — Na+/Ca2+-обменник; PLB — фосфоламбан; RyR — рианодиновый рецептор; СР — саркоплазматический ретикулум; АТФ — Са2+ аденозинтрифосфатаза
Молекулярные механизмы, с помощью которых мутации RyR2 изменяют физиологические свойства и функцию RyR2, полностью не определены. Было высказано предположение, что мутации КПЖТ в RyR2 снижают аффинность связывания RyR2 с регуляторным белком FKBP12.6 (кальстабин-2), который стабилизирует закрытое конформационное состояние канала RyR2, что позволяет каналу полностью закрыться во время диастолы (при низкой внутриклеточной концентрации Са2+) и предотвращают аберрантную утечку Са2+ из саркоплазматического ретикулума, обеспечивая расслабление мышц.
Фосфорилирование РКА (индуцированное β-адренергической стимуляцией) мутантных каналов приводит к дальнейшему ухудшению аффинности связывания FKBP12.6 с мутантным RyR2, таким образом увеличивая вероятность открытого состояния канала при диастолических концентрациях Са2+. Как следствие, мутантный канал RyR2 не может полностью закрываться во время диастолы, что приводит к диастолической утечке Са2+ из саркоплазматического ретикулума во время стресса или нагрузки.
Альтернативная гипотеза заключается в том, что мутации RyR2 увеличивает чувствительность канала к Са2+ в просвете (внутри саркоплазматического ретикулума), так что в исходных условиях, когда нагрузка саркоплазматического ретикулума нормальная, утечки Са2+ нет. При β-адренергической (симпатической) стимуляции концентрация Са2+ саркоплазматического ретикулума становится выше сниженного порога, в результате чего Са2+ выходит из саркоплазматического ретикулума.
Третья гипотеза заключается в том, что мутации в RyR2 нарушают межмолекулярные взаимодействия между дискретными доменами RyR2, необходимые для правильного фолдинга и саморегуляции воротной функции канала.
Кальсеквестрин является важнейшим белком запасающим Са2+ в саркоплазматическом ретикулуме, и он является частью большого четвертичного комплекса с RyR2, триадином и юнктином; вместе эти белки играют главную роль в регуляции внутриклеточного Са2+. Кальсеквестрин представляет собой высокоемкий и низкоаффинный Са2+-связывающий белок, который способен связывать Са2+ в просвете (от 40 до 50 ионов на молекулу) во время диастолы, создавая буфер Са2+ в саркоплазматическом ретикулуме, и предотвращая диастолическое высвобождение Са2+ через RyR2 в цитозоль.
Мутации CASQ2 приводят к нарушению контроля RyR2 за ионами Са2+ в просвете, что важно для эффективного прекращения высвобождения Са2+ саркоплазматического ретикулума и предотвращения спонтанного высвобождения Са2+ во время диастолы. Это может привести к снижению рефрактерности к передаче сигналов Са2+ и генерации аритмогенного спонтанного высвобождения Са2+.
Нарушение регуляции RyR2, вероятно, лежит в основе патологических механизмов КПЖТ, связанных с мутациями кальмодулина. Кальмодулин — это небольшой цитоплазматический Са2+-связывающий белок, который прямо или косвенно регулирует активность белков, которые играют ключевую роль в электромеханическом сопряжении, в частности, тех, которые ответственны за высвобождение и последующую секвестрацию цитозольного Са2+ в саркоплазматический ретикулум.
Основным связующим партнером кальмодулина в кардиомиоцитах является RyR2, который регулирует высвобождение Са2+ из саркоплазматического ретикулума. Кальмодулин снижает вероятность открытия канала RyR2. Связанные с КПЖТ мутации кальмодулина приводят к нарушению связывания кальмодулина с RyR2 и нарушению ингибирования кальмодулином функции RyR2. Это может привести к чрезмерному высвобождению Са2+ из каналов RyR2, в первую очередь из-за неполной остановки RyR2-опосредованного высвобождения Са2+.
Механизмами формирования нарушений ритма сердца при КПЖТ считаются ППД и триггерная активность, потому что двунаправленная морфология ЖТ на ЭКГ очень похожа на аритмии, связанные с внутриклеточной перегрузкой Са2+ и ППД, наблюдаемые при дигиталисной интоксикации. Мутации, связанные с КПЖТ, приводят к цитозольной перегрузке Са2+, что приводит к активации Na+/Са2+-обменника, который, в свою очередь, генерирует суммарный входящий ток (так называемый транзиторный входящий ток [Iti]). Iti лежит в основе ППД, которые могут достигать порога активации Na+-канала и вызывать аномальные события.
Когда ППД имеют низкую амплитуду, они обычно не заметны и не имеют клинической значимости. Вероятно, самое важное, что позволяет подпороговым ППД достигать порогового значения, это уменьшение длительности цикла; учащенное сердцебиение увеличивает как амплитуду, так и частоту ППД.
Кроме того, катехоламины могут способствовать развитию ППД с помощью нескольких механизмов, включая (1) увеличение тока Са2+ L-типа, за счет стимуляции β-адренергических рецепторов и увеличения цАМФ, что приводит к увеличению транссарколеммного притока Са2+ и внутриклеточной перегрузки Са2+; (2) усиление активности Na+/Са2+-обменника, таким образом увеличивая вероятность опосредованной ППД триггерной активности; (3) усиление поглощения Са2+ саркоплазматическим ретикулумом, что приводит к увеличению его содержания в саркоплазматическом ретикулуме и последующему высвобождению повышенного количества Са2+ из саркоплазматического ретикулума во время сокращения; и (4) увеличение частоты сердечных сокращений.
Эти эффекты лежат в основе повышенной опасности желудочковых аритмий у пациентов с КПЖТ во время физических упражнений и эмоционального стресса, связанного с повышенной симпатической стимуляцией и учащением пульса.
Важно отметить, что в условиях дигиталисной интоксикации аномальное поведение RyR2, ведущее к спонтанному высвобождению Са2+ и ППД, является вторичным по отношению к повышению содержания Са2+ в саркоплазматическом ретикулуме (высвобождение Са2+, вызванное перегрузкой хранилища, SOICR). При КПЖТ, с другой стороны, спонтанное высвобождение Са2+ и ППД могут происходить без перегрузки Са2+.
Мутации в RyR2 или CASQ2 приводят к нарушению Са2+ регуляции внутриклеточных процессов, что снижает порог саркоплазматического ретикулума для спонтанного высвобождения Са2+ ниже нормального исходного уровня («воспринимаемая» перегрузка Са2+). Подобный механизм может лежать в основе запуска аритмий при других состояниях, включая сердечную недостаточность и ишемическую болезнь сердца, при которых регуляция высвобождения Са2+ из саркоплазматического ретикулума нарушена из-за приобретенных дефектов в компонентах комплекса каналов RyR2.
Как и ожидалось, для триггерной активности, опосредованной ППД, наблюдалась прямая корреляция между интервалом сцепления желудочковых аритмий и предшествующим интервалом R-R. Это позволяет предполагать, что наджелудочковые аритмии, обычно наблюдаемые до начала желудочковых аритмий во время физических упражнений у пациентов с КПЖТ, могут выступать в качестве триггера для развития ППД и триггерной активности в желудочке.
б) Механизм формирования двунаправленной морфологии желудочковой тахикардии. Электрофизиологические механизмы, приводящие к характерной двунаправленной морфологии ЖТ, не ясны. Некоторые из предполагаемых механизмов: изменения направления проводимости из единого желудочкового очага с каждым сокращением, ЖТ, возникающая из одного очага, который запускает другой, и двойной желудочковый очаг (из правой и левой апикальных областей сердца).
Морфология QRS двунаправленной ЖТ непоследовательна в одном и том же отведении, что позволяет предположить, что очаг аритмии может в некоторой степени варьироваться. Некоторые исследователи предположили, что КПЖТ начинается из одного или двух очагов, обычно происходящих из ВТПЖ, тогда как последующие сокращения обычно исходят из ЛЖ. Другие исследователи обнаружили, что источник в большинстве случаев имеет в левую задне-нижнюю локализацию. Кроме того, сеть Пуркинье была предложена как место происхождения двунаправленной ЖТ с чередованием возбуждения из правой и левой ветвей волокон Пуркинье.
Недавно, основываясь на экспериментальной модели, был предложен механизм «пинг-понга» в основе желудочковых аритмий при КПЖТ, при этом индуцированная ППД триггерная активность развивается при разных порогах частоты сердечных сокращений в разных областях системы Гиса-Пуркинье (HPS) или желудочков. Во-первых, как только частота сердечных сокращений превышает определенный порог, желудочковая бигеминия развивается из одного участка HPS или миокарда желудочков.
Укороченная длина цикла R-R из-за желудочковой биге-минии индуцирует запускаемую ППД активность из второго очага внутри HPS, причем последний реципрокно активирует ЖЭС из первого очага; процесс повторяется по образцу пинг-понга. «Неприрывно-рецидивирующая би-геминия» из двух очагов создает двунаправленную ЖТ, характерную для КПЖТ.
Полиморфная ЖТ возникает, когда бигеминия развивается из трех или более очагов одновременно, тогда как мономорфная ЖТ развивается, когда повторяющиеся ППД генерируют серию триггерной активности из одного источника.
в) Механизм действия лекарств. Как уже отмечалось, активация адренергической нервной системы оказывает сильное влияние на внутриклеточное движение Са2+ и часто инициирует Са2+-опосредованный аритмогенез. Следовательно, β-адренергическая блокада играет важную роль в лечении КПЖТ. Вероятно, терапия β-адреноблокаторами подавляет увеличение содержания Са2+ в саркоплазматическом ретикулуме с уменьшением склонности к аберрантной утечке Са2+ из саркоплазматического ретикулума во время диастолы.
β-Адреноблокаторы также ослабляют эффект адренергической стимуляции, вызванной физической нагрузкой или эмоциями. Кроме того, поскольку амплитуда ППД напрямую связана с частотой сердечных сокращений, брадикардия, вызванная β-блокаторами, снижает вероятность того, что амплитуда ППД достигнет пороговой величины для запуска ЖЭС. Соответственно, чем ниже частота сердечных сокращений на фоне терапии β-адреноблокаторами, тем выше вероятность предотвращения злокачественных аритмий.
Недавно было показано, что флекаинид (блокатор Na'-каналов) предотвращает летальные желудочковые аритмии при КПЖТ. Механизмы, через которые реализуется этот эффект, все еще обсуждаются. Было высказано предположение, что флекаинид подавляет спонтанное высвобождение Са2+ из саркоплазматического ретикулума посредством прямой блокады каналов RyR2, уменьшая амплитуду тока Са2+. Альтернативная гипотеза состоит в том, что флекаинид предотвращает развитие аномальных пороговых потенциалов за счет ингибирования Na+/Ca2+-насоса, который способствует образованию преждевременных и аритмогенных потоков Са2+.
Отрицательный хронотропный эффект флекаинида также может подавлять желудочковые аритмии во время нагрузки, поддерживая частоту сердечных сокращений ниже порога начала ЖЭС.