а) Анатомия и синтез гормонов. Гормоны задней доли гипофиза, вазопрессин и окситоцин, синтезируются в специализированных нейронах гипоталамуса — нейронах нейрогипофиза. Эти нейроны, отличающиеся крупным размером, называют крупноклеточными нейронами. В гипоталамусе крупноклеточные нейроны располагаются группами в парных паравентрикулярных и супраоптических ядрах (рис. 1).
Рисунок 1. Сагиттальная проекция головы с демонстрацией расположения нейрогипофиза. Крупноклеточные нейроны сгруппированы в двух паравентрикулярных ядрах (ПВЯ) и двух супраоптических ядрах (СОЯ). На иллюстрации представлено только по одному ядру из каждой пары. Супраоптические ядра находятся латерально от зрительного перекреста, в то время как паравентрикулярные ядра располагаются центрально, вдоль стенки третьего желудочка. Аксоны четырех ядер объединяются, образуя супраоптико-гипофизарный тракт по пути через ножку гипофиза к терминалям хранения в задней доле гипофиза. Центр осмотической регуляции (Осм) находится в гипоталамусе кпереди от третьего желудочка; центр жажды (Жажда) распределен по разным зонам головного мозга. Пер. Гип. — передняя доля гипофиза.
Вазопрессин и окситоцин также синтезируются в мелкоклеточных нейронах паравентрикулярных ядер, а вазопрессин (но не окситоцин) синтезируется еще и в супрахиазматическом ядре. Транскрипция информационной РНК вазопрессина и окситоцина, а также трансляция прогормонов вазопрессина и окситоцина происходят полностью в клеточных тельцах нейронов нейрогипофиза. Прогормоны провазопрессин и проокситоцин упаковываются вместе с гормонами, необходимыми для их переработки, в нейросекреторные гранулы, транспортируемые из перикариона нейронов нейрогипофиза по микротрубочкам и вдоль длинных аксонов, формирующих супраоптико-гипофизарный путь, который оканчивается в задней доле гипофиза.
В ходе транспорта ферменты для переработки гормонов расщепляют провазопрессин на вазопрессин (9 аминокислот), вазопрессин-нейрофизин (95 аминокислот) и гликопептид вазопрессина или копептин (39 аминокислот). Проокситоцин подобным образом расщепляется на окситоцин (который отличается от вазопрессина всего двумя из 9 аминокислот) и окситоцин-нейрофизин. Нейрофизины образуют нейрофизин-гормональные комплексы, стабилизирующие гормоны. Стимулирующие (например, глутаматергические, холинергические, ангиотензин) и ингибирующие (например, ГАМК и норадренергические) нейротрансмиттерные окончания контролируют высвобождение вазопрессина посредством активности синаптических контактов на клеточных тельцах нейрогипофиза.
Физиологическое высвобождение вазопрессина или окситоцина в общий кровоток происходит на уровне задней доли гипофиза, где в ответ на потенциал действия повышается внутриклеточная концентрация кальция, что способствует слиянию нейросекреторных гранул с аксональной мембраной и высвобождению гормона в общий кровоток. Хотя все остальные фрагменты прогормонов также высвобождаются в кровоток, вазопрессин и окситоцин являются единственными известными биологически активными компонентами прогормонов. Факторы, которые стимулируют высвобождение гормонов нейрогипофиза, также стимулируют их синтез.
Поскольку синтез гормонов требует времени, необходимо поддержание больших запасов гормона в задней доле гипофиза для обеспечения мгновенного высвобождения каждого из гормонов при остром кровотечении (вазопрессин) или в ходе родов (окситоцин). У большинства видов в задней доле гипофиза хранится достаточное количество вазопрессина для обеспечения максимального подавления мочеотделения в течение нескольких дней и поддержания исходного уровня подавления мочеотделения на протяжении нескольких недель.
б) Вазопрессин:
1. Вазопрессин и регуляция осмоляльности. Первичным физиологическим действием вазопрессина является его функция в качестве гормона, задерживающего воду. Центральная чувствительная система (осмостат), контролирующая высвобождение вазопрессина, анатомически изолирована и находится в небольшой зоне гипоталамуса впереди от третьего желудочка (см. рис. 1). Осмостат контролирует высвобождение вазопрессина, обеспечивая задержку воды в организме и стимулируя жажду для восполнения запасов воды.
Осмотическая регуляция высвобождения вазопрессина и осмотическая регуляция жажды обычно тесно связаны, однако в патологических условиях может наступать их диссоциация. Первичным внеклеточным осмолитом, на который реагируют осморецепторы, является натрий. В нормальных физиологических условиях глюкоза и мочевина пересекают клеточные мембраны нейронов, не стимулируя высвобождение вазопрессина. Хотя базальная осмоляльность в норме колеблется в пределах 280-295 мОсм/кг воды, осмоляльность внеклеточной жидкости для каждого человека поддерживается в узком диапазоне. Повышения осмоляльности плазмы всего на 1-2% достаточно для стимуляции высвобождения вазопрессина.
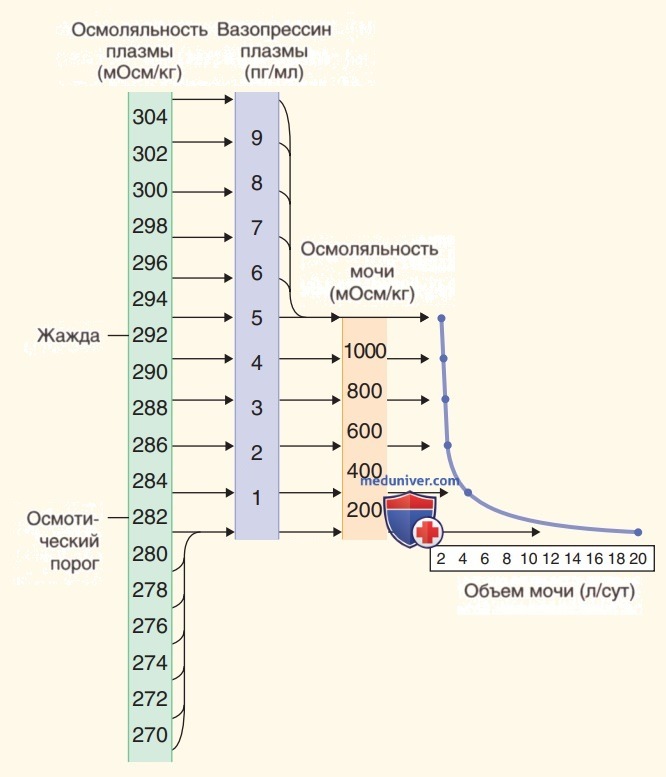
Базальный уровень вазопрессина в плазме составляет, как правило, 0,5-2 пг/мл. Этого достаточно для поддержания осмоляльности мочи на уровне выше осмоляльности плазмы и объема мочи в диапазоне 1-3 л/сут. При снижении уровня вазопрессина <0,5 пг/мл максимальная осмоляльность мочи снижается до уровня <100 мОсм/кг воды, а диурез свободной воды («акваурез»), возможен при уровнях, достигающих 800-1000 мл/ч (18-24 л/сут). Повышение осмоляльности плазмы приводит к линейному увеличению концентрации вазопрессина плазмы и соответствующему линейному увеличению осмоляльности мочи. При уровне осмоляльности плазмы 295 мОсм/кг воды осмоляльность мочи достигает максимальных значений — 1000-1200 мОсм/кг воды.
Таким образом, полный диапазон физиологических изменений осмоляльности мочи соответствует относительно небольшим изменениям уровней вазопрессина плазмы — 0-5 пг/мл (рис. 2).
Рисунок 2. Идеализированная схема нормальных физиологических взаимоотношений между осмоляльностью плазмы, уровнем вазопрессина плазмы, осмоляльностью мочи и объемом мочи. Полный физиологический диапазон осмоляльности мочи соответствует уровням вазопрессина плазмы 0-5 пг/мл. Повышение осмоляльности плазмы >290-295 мОсм/кг воды обусловливает увеличение уровня вазопрессина плазмы, но не концентрации мочи в дальнейшем, поскольку она ограничена максимальной осмоляльностью во внутренней части мозгового слоя почки. Отношение объема (в пересчете на постоянную осмолярную нагрузку) находится в обратной экспоненциальной зависимости от остальных показателей. Из-за этого отношения объем мочи значимо не изменяется до тех пор, пока секреция вазопрессина не станет фактически нулевой, после чего объем мочи резко возрастает.
Для поддержания жидкостного баланса вода должна не просто сохраняться, но и употребляться с целью замещения неощутимых потерь воды и обеспечения мочеотделения. Жажда не стимулируется до тех пор, пока осмоляльность плазмы не превысит (на 5-10 мОсм/кг воды) порог высвобождения вазопрессина. Большинство людей получают достаточный объем воды, употребляя жидкость внутрь, а также в результате катаболизма пищи, что позволяет поддерживать осмоляльность плазмы ниже порога активации жажды. Таким образом, в нормальных физиологических условиях водный баланс (и осмоляльность плазмы) в большей степени регулируются секрецией вазопрессина, нежели жаждой. Однако при обезвоживании тяжелой степени жажда чрезвычайно важна для восполнения дефицита жидкости в организме.
Вазопрессин действует на рецепторы вазопрессина подтипа V2 в главных клетках собирательных трубочек почек, обусловливая задержку жидкости в организме (или «антидиурез»). Рецепторы вазопрессина V2 являются рецепторами, связанными с белком G и активирующими аденилатциклазу с последующим повышением внутриклеточных уровней циклического АМФ при активации рецептора лигандом. Увеличение концентрации циклического АМФ инициирует перемещение водных каналов аквапорина-2 к верхушечной (люминальной) мембране клеток собирательных трубочек. Эти каналы обеспечивают облегченный быстрый транспорт воды из просвета собирательных трубочек в главные клетки по осмотическому градиенту.
Затем вода покидает клетки через базолатеральную мембрану, попадая в кровоток мозгового слоя почки через водные каналы аквапорина-3 и аквапорина-4. Весь этот процесс называется антидиурез. В отсутствие вазопрессина каналы аквапорина-2 подвергаются реинтернализации из апикальной мембраны в субапикальные пузырьки. Это предотвращает активную реабсорбцию воды из просвета собирательных трубочек, усиливая диурез. В дополнение к данному быстрому «челночному перемещению» каналов аквапорина-2 для поминутной регуляции реабсорбции воды вазопрессин также действует через рецепторы V2 для регуляции долгосрочных запасов аква-порина-2 — повышение уровня вазопрессина стимулирует синтез аквапорина-2, а отсутствие вазопрессина обусловливает снижение синтеза аквапорина-2.
Гипертонический интерстиций мозгового слоя почки определяет максимальную концентрацию мочи, которая уравновешивается осмоляльностью внутренней части мозгового слоя почки в условиях максимального «антидиуреза».
2. Вазопрессин, регуляция давления и объема. Барорецепторы, определяющие высокое АД, находятся в аорте и каротидном синусе, а определяющие низкое АД — в правом и левом предсердиях. Уменьшение АД либо ОЦК стимулирует высвобождение вазопрессина, в то время как ситуации, при которых возрастает ОЦК или АД в левом предсердии (например, искусственное дыхание под отрицательным давлением), снижают секрецию вазопрессина. Высвобождение вазопрессина в ответ на изменения ОЦК или АД гораздо менее чувствительно, нежели его высвобождение при реакции осморецепторов; обычно для стимуляции высвобождения вазопрессина необходимо уменьшение ОЦК или АД на 10-15%.
Однако, как только АД снижается менее порогового значения, стимуляция секреции вазопрессина увеличивается, что обусловливает повышение плазменной концентрации вазопрессина значимо выше, чем в условиях осмотической стимуляции.
Прессорные эффекты вазопрессина опосредуются отдельным подтипом рецепторов вазопрессина — рецепторами V1a, расположенными в гладких мышцах сосудов. В условиях изменения ОЦК и уровня АД роль вазопрессина представляется достаточно скромной, в то время как регуляция гомеостаза натрия РААС более важна в рамках контроля объема внеклеточной жидкости и крови, нежели регуляция гомеостаза воды. Однако прессорные эффекты вазопрессина, позволяющие увеличить АД, могут выйти на первый план при нарушениях работы систем регуляции АД (например, при автономной нейропатии или блокаде РААС) либо при состояниях с патологической вазодилатацией (например, цирроз печени, ИТШ).
3. Вазопрессин и адренокортикотропный гормон. Вазопрессин стимулирует секрецию АКТГ посредством стимуляции рецепторов вазопрессина подтипа V1b, которые расположены на клетках-кортикотрофах передней доли гипофиза. Хотя главным регулятором секреции АКТГ является кортикотропин-рилизинг-гормон, вазопрессин активирует иную систему трансдукции сигналов в кортикотрофах, поэтому эти гормоны обладают синергичным влиянием на секрецию АКТГ.
4. Взаимодействие осмотической регуляции и регуляции объемом. Система вазопрессина эволюционировала с целью оптимизации гомеостаза воды у млекопитающих. Человек потребляет воду в зависимости от ее доступности в отсутствие стимуляции жажды, а секреция вазопрессина затем регулирует экскрецию воды для поддержания осмоляльности плазмы. Жажда служит резервным механизмом, если обезвоживание становится избыточным. Поскольку регуляция АД и ОЦК вазопрессином менее чувствительна, умеренные изменения АД и ОЦК, которые усиливаются в положении стоя, не мешают регуляции осмоляльности. Однако прессорный эффект высоких уровней вазопрессина необходим для поддержания АД в условиях снижения ОЦК и гипотензии.
Обычно физиологическая регуляция осмоляльности и АД объемом синергичны. Обезвоживание обусловливает повышение осмоляльности плазмы и уменьшение ОЦК, при этом оба этих фактора стимулируют высвобождение вазопрессина. Напротив, избыточное употребление жидкости способствует уменьшению осмоляльности плазмы и увеличению ОЦК, при этом оба этих фактора ингибируют секрецию вазопрессина.
Прочие факторы также могут модулировать осмотическое высвобождение и эффекты вазопрессина. При увеличении ОЦК натрийуретические факторы (например, предсердный и BNP) высвобождаются из миоцитов предсердий и действуют в почках, активируя выведение натрия. BNP также синтезируется в гипоталамусе, где он может действовать, снижая секрецию вазопрессина. Во время беременности отмечается уменьшение осмоляльности плазмы на ~10 мОсм/кг воды. Происходит смещение порога секреции вазопрессина в сторону снижения, в том числе и для жажды. Считается, что эти эффекты опосредуются плацентарным гормоном релаксином.
Нарушения ВСО часто отмечаются у пожилых. Это частично связано с возрастными изменениями состава тела (у лиц >75 лет отмечается снижение общего содержания воды в организме на >50%) и функции почек. У пожилых также притупляется чувство жажды. Хотя с возрастом способность к секреции вазопрессина сохраняется или даже усиливается, уменьшается способность к достижению максимальной концентрации мочи для удерживания воды и максимального разведения мочи для выделения воды. Вследствие этого у пожилых нередко развивается как гипернатриемия, так и гипонатриемия при болезнях, влияющих на ВСО, а также при приеме ЛП для лечения разнообразных заболеваний.
в) Окситоцин. Пролактин является основным гормоном, отвечающим за продукцию молока, однако окситоцин также важен для его секреции. Сосание стимулирует тактильные рецепторы сосков, передавая афферентный сигнал в гипоталамус, что обусловливает синхронное высвобождение окситоцина из задней доли гипофиза. Окситоцин связывается с рецепторами окситоцина в МЖ, индуцируя сокращение миоэпителиальных клеток вокруг альвеол и протоков с высвобождением молока. Кроме того, положительная регуляция маточных рецепторов окситоцина чрезвычайно усиливает сокращения гладких мышц матки в ответ на секрецию окситоцина в конце беременности. Максимальный выброс окситоцина происходит в ходе (не до) родов, вероятно, вследствие растяжения стенки влагалища.
Поскольку у трансгенных мышей с отсутствием окситоцина либо рецепторов окситоцина роды протекают нормально, высвобождение окситоцина может быть более важным для индукции сокращений матки с целью уменьшения кровопотери после родов, нежели для начала родовой деятельности. До сих пор не установлено каких-либо патологических синдромов, связанных с увеличением или уменьшением секреции окситоцина, однако, по данным экспериментальных исследований, окситоцин принимает участие в формировании материнского и аффилиативного поведения, а также в остеогенезе. Однако из-за структурного подобия вазопрессина и окситоцина высокие плазменные концентрации окситоцина могут активировать рецепторы вазопрессина, а вазопрессин может активировать рецепторы окситоцина, при этом обе ситуации могут иметь патологические последствия.
г) Синдром неадекватной секреции антидиуретического гормона. Избыточная секреция вазопрессина может быть обусловлена патологической регуляцией его секреции из задней доли гипофиза либо эктопическим синтезом и секрецией вазопрессина опухолями. Осмотически неадекватная секреция вазопрессина способствует задержке воды почками и увеличению объема биологических жидкостей с формированием гипонатриемии разведения. Данное заболевание называют синдромом неадекватной секреции АДГ, его описание находится в отдельной статье на сайте - просим Вас пользоваться формой поиска по сайту выше.