Функция щитовидной железы (ЩЖ) заключается в секреции гормонов — 3,5,3',5'-тетрайодтиронина (тироксин, Т4) и, в меньшем количестве, 3,5,3'-трийодтиронина (Т3). Основной источник циркулирующего Т3 — последовательное дейодирование Т4 в периферических тканях за пределами ЩЖ. В периферических тканях Т3 взаимодействует с ядерными рецепторами Т3. Эти рецепторы связываются с промоторными участками генов, которые активируются или подавляются гормонами ЩЖ.
Гормоны ЩЖ имеют критически важное значение для роста во внутриутробном периоде и в детском возрасте; они регулируют ЧСС и влияют на сократительную функцию сердца; воздействуют на моторику ЖКТ, дыхательную функцию и почечный клиренс воды; кроме того, они модулируют потребление энергии организмом, теплопродукцию, МТ и липидный обмен. Кроме того, в ЩЖ находятся парафолликулярные клетки, или С-клетки. Они продуцируют кальцитонин — полипептид, состоящий из 32 аминокислот. Он ингибирует резорбцию костной ткани, но в организме человека не играет явной физиологической роли.
Тем не менее кальцитонин имеет клиническое значение как опухолевый маркер. Его продукция ↑ при медуллярном раке ЩЖ, который происходит из парафолликулярных клеток.
В период внутриутробного развития ЩЖ формируется из основания языка и через слепое отверстие спускается в свое обычное положение вдоль передней поверхности трахеи посередине между щитовидным хрящом и яремной вырезкой. У взрослых ЩЖ имеет форму бабочки и состоит из двух долей, соединенных перешейком. Объем каждой доли примерно равен объему чайной ложки (5 см3), длина составляет ~4 см, ширина — 2 см, глубина — 1 см. Эктопическая ткань ЩЖ может присутствовать в любом месте на протяжении пути ее нисхождения в процессе эмбриогенеза начиная от основания языка (лингвальная, или язычная ЩЖ) и по ходу движения книзу в сторону средостения.
Остатки щитовидно-язычного тракта могут формировать кисту щитовидно-язычного протока (срединную кисту шеи) или могут существовать в виде пирамидной доли ЩЖ. Увеличенную пирамидную долю можно пропальпировать при заболеваниях ЩЖ, проявляющихся зобом (например, при аутоиммунном тиреоидите и болезни Грейвса).
При ↑ ЩЖ может распространяться латерально, кзади и книзу, заходя в верхнее средостение, что приводит к отклонению и сдавлению трахеи, вен в области верхней апертуры ГК и пищевода. Кроме того, во время хирургического вмешательства могут быть повреждены важные структуры, окружающие ЩЖ: ПЩЖ, располагающиеся позади ЩЖ по верхнему и нижнему полюсу; возвратный гортанный нерв, проходящий кверху через пищеводно-трахеальную борозду, а затем отдающий ветви к задней поверхности обеих долей ЩЖ.
Ткань ЩЖ состоит из собранных в группы фолликулов сферической формы. Каждый фолликул выстлан одним слоем эпителиальных клеток — тироцитов. Просвет кнутри от этих клеток заполнен коллоидом. Основной элемент коллоида, тиреоглобулин, является формой хранения гормонов ЩЖ. Между фолликулами распределены парафолликулярные С-клетки, продуцирующие кальцитонин. В процессе эмбриогенеза эти клетки формируются из нервного гребня.
а) Синтез и секреция гормонов щитовидной железы. Йод, поступающий с пищей (йодид I- или йодат IO3-) после всасывания распределяется во внеклеточной жидкости. В США показатели суточного потребления йода, как правило, превышают значение рекомендованной суточной потребности (150 мкг) в связи с широким использованием йодированной соли и йодных консервантов в производстве хлебобулочных изделий. Активный транспорт циркулирующего йода внутрь тироцита осуществляется с помощью натрий-йодного симпортера, который локализуется на базолатеральной мембране тироцита.
После транслокации йода к апикальной мембране он выходит из клетки через три апикальных йодных канала. Имеется три кандидата на роль переносчиков йода, участвующих в выводе йода из клетки: пендрин, аноктамин-1 и хлоридный канал 5. На апикальной поверхности тироцита располагается система генерации Н2О2, продуцирующая Н2О2 с помощью фермента двойной оксидазы 2. Молекулы фермента тиреопероксидазы, которые также располагаются на апикальной поверхности тироцита, активируются Н2О2. Окисленная тиреопероксидаза может, в свою очередь, окислять йод.
Получившийся в результате ион йода ковалентно связывается с остатками тирозина в молекуле тиреоглобулина, формируя в процессе органификации остатки монойодтирозина и дийодтирозина. Процесс формирование тироксина (Т4) и трийодтиронина (Т3) путем попарного слияния монойодтирозина и дийодтирозина также катализируется тиреопероксидазой.
Затем тиреоглобулин упаковывается в пиноцитозные пузырьки у апикальной мембраны. После протеолиза тиреоглобулина секретируются Т4 и Т3. В процессе протеолиза тиреоглобулина также высвобождается монойодтирозин и дийодтирозин. Эти соединения дейодируются, поэтому йод может использоваться повторно. Высвобождение Т4 и Т3 на базолатеральной мембране тироцита опосредуется переносчиками гормонов ЩЖ, в том числе монокарбоксилатным транспортером 8 (рис. 1). В норме в кровоток высвобождается 100 мкг Т4 и 5 мкг Т3 в сутки, а также тиреоглобулин.
Йод в фармакологических количествах ингибирует захват и органификацию йода, а также высвобождение гормонов ЩЖ. Литий также блокирует высвобождение гормонов ЩЖ.
б) Транспорт и метаболизм гормонов щитовидной железы. Более 99% циркулирующих Т4 и Т3 связано с тремя классами белков плазмы. Тироксинсвязывающий глобулин — основной транспортный белок, а тироксинсвязывающий преальбумин (известный также как транстиретин) и альбумин участвуют в транспорте Т4 и Т3 в крови в меньшей степени. При применении эстрогена в фармакологических дозах, в условиях беременности, при гепатите и при использовании некоторых ЛП (например, 5-фторурацил, тамоксифен и метадон) ↑ уровень тироксинсвязывающего глобулина в плазме крови. Кроме того, встречаются семейные случаи избытка тироксинсвязывающего глобулина.
При печеночной недостаточности, тяжелых системных заболеваниях, нефротическом синдроме и на фоне применения некоторых ЛП (например, андрогенов, ГКС и ЛП никотиновой кислоты медленного высвобождения) уровень тироксинсвязывающего глобулина, наоборот, ↓. При изменении уровня тироксинсвязывающего глобулина уровни общих Т4 и Т3 меняются, но уровень свободных гормонов в сыворотке крови при этом остается постоянным. Семейная дисальбуминемическая гипертироксинемия — АуД-расстройство, характеризующееся продукцией молекулы альбумина, которая связывает Т4 с более высокой аффинностью, чем в норме. У людей, страдающих этим заболеванием, могут наблюдаться высокие уровни общего Т4.
При этом по результатам исследования методом равновесного диализа наблюдается кажущееся несоответствие: нормальные уровни ТТГ и свободного Т4.
Предпочтительный лиганд для связывания с рецепторами гормонов ЩЖ — Т3. Более 80% Т3, присутствующего в тканях-мишенях, получается из Т4. Ферменты дейодиназы удаляют йод с внешнего кольца, превращая Т4 в Т3, создавая пул Т3 в тканях-мишенях и способствуя выходу Т3 в системный кровоток. Дейодиназа 2-го типа присутствует в тканях гипофиза и ГМ, а дейодиназа 1-го типа преобладает в периферических тканях, например в печени и почках. Активность дейодиназ может подавляться применением йодсодержащих соединений (например, амиодарон, рентгеноконтрастные вещества), терапией ГКС, при системных заболеваниях и дефиците селена.
Т4 может также конвертироваться в биологически неактивный изомер — реверсивный Т3 (rТ3). Реверсивный изомер образуется при дейодировании внутреннего кольца тироксина дейодиназой 1-го типа и дейодиназой 3-го типа, присутствующими в глиальных клетках ЦНС. Дейодиназа 3-го типа, которая синтезируется также в плаценте, — один из нескольких факторов, повышающих потребность в тироксине у беременных женщин, и Т3, и rТ3 могут превращаться в биологически неактивный дийодтиронин (Т2) под действием дейодиназ.
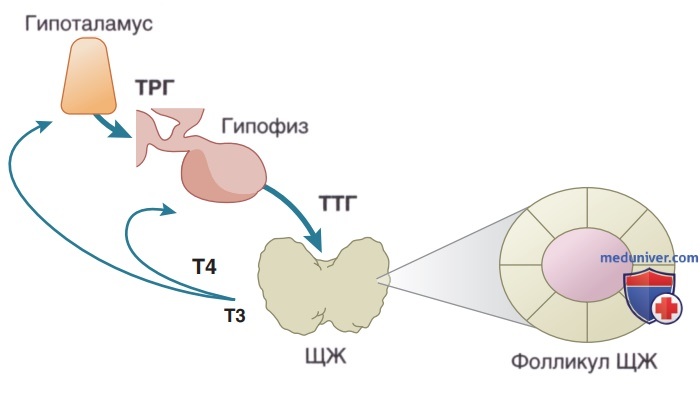
в) Регуляция функции щитовидной железы. Гипоталамус и гипофиз контролируют рост ткани ЩЖ и синтез тиреоидных гормонов. Тиреотропин-рилизинг-гормон, который представляет собой трипептид и синтезируется в гипоталамусе, транспортируется в гипофиз через гипоталамо-гипофизарную портальную систему. Там он связывается с рецепторами тиротроф-ных клеток, стимулируя синтез и секрецию ТТГ, тиротропина. ТТГ — гетеродимерный гликопротеин, состоит из α-субъединицы (идентичной α-субъединице ФСГ, ЛГ и ХГЧ), связанной с уникальной β-субъединицей.
После попадания в ЩЖ с током крови он связывается с рецепторами ТТГ на поверхности тироцитов, стимулируя рост, а также синтез и секрецию гормонов ЩЖ. Циркулирующие Т3 и Т4 по принципу отрицательной обратной связи подавляют синтез и секрецию тиреотропин-рилизинг-гормона в гипоталамусе и ТТГ в гипофизе (рис. 2).
г) Действие гормонов щитовидной железы. Хотя уровни циркулирующих гормонов ЩЖ задаются гипоталамо-гипофизарной осью, уровни Т3 внутри клетки и его эффекты регулируются несколькими различными факторами. К этим факторам относятся переносчики гормонов ЩЖ, дейодиназы, ткань-специфические рецепторы гормонов ЩЖ и корегуляторы. Рецепторы гормонов ЩЖ, которые связываются с Т3, относятся к суперсемейству ядерных рецепторов. Они имеют по меньшей мере три изоформы: α1, β1 и β2. В присутствии Т3 разные изоформы рецепторов тиреоидных гормонов связываются со специфическими последовательностями ДНК, которые известны как гормончувствительные элементы гормонов ЩЖ.
Экспрессия генов-мишеней регулируется посредством рекрутирования и высвобождения корепрессоров и коактиваторов, взаимодействующих с механизмом транскрипции. Согласно классическим представлениям, механизм действия гормонов ЩЖ заключается в положительной регуляции экспрессии генов. Например, в печени Т3 Т экспрессию рецепторов ЛПНП, ускоряя клиренс ЛПНП. В миокарде Т3 ↑ сократимость миоцитов, стимулируя экспрессию α-тяжелых цепей миозина, и релаксацию миоцитов, активируя (АТФазу) саркоплазматической сети. Т3 приводит к ↑ ЧСС, ускоряя деполяризацию и реполяризацию в синоатриальном узле.
Кроме того, гормоны ЩЖ ↑ скорость основного обмена, ↑ термогенез, ↑ активность дыхательного центра, перистальтику ЖКТ, психическую активность и метаболизм костной ткани. В период внутриутробного развития гормоны ЩЖ играют критическую роль в развитии скелета и ГМ. Интересно, что, хотя Т3 стимулирует экспрессию множества генов, он в то же время подавляет экспрессию других генов, например кодирующих β-субъединицу ТТГ. Механизм отрицательной обратной связи реализуется в гипоталамусе, гипофизе и селезенке.
Хотя традиционно Т4 считается прогормоном, поскольку он приобретает биологическую активность только после конверсии в Т3, при определенных обстоятельствах Т4 также может связываться с рецепторами гормонов ЩЖ. Способность Т4 связываться с рецептором гормонов ЩЖ, по-видимому, определяется изменениями в клеточном наборе корепрессоров и коактиваторов. Кроме того, способность рецептора гормонов ЩЖ реагировать на Т4, по-видимому, зависит от изоформы рецептора. Так, способность Т4 при определенных физиологических условиях действовать в качестве самостоятельного гормона еще предстоит изучить.
Видео физиология гормонов щитовидной железы - профессор, д.м.н. П.Е. Умрюхин