Хламидии — облигатные внутриклеточные бактерии с высоким уровнем патогенности, вызывающие широкий спектр заболеваний у человека и животных. Изначально хламидии таксономически классифицированы в один род — Chlamydia.
На основании данных анализа последовательности генов 16S рРНК предложено произвести пересмотр хламидийной таксономии с разделением на два рода: Chlamydia и Chlamydophila. Но на основании дополнительных данных в отношении хламидийных геномных последовательностей и обсуждений в научных сообществах по изучению хламидий достигнуто соглашение о том, что семейство Chlamydiaceae будет включать один род — Chlamydia.
В указанном семействе идентифицировано девять видов: С. trachomatis, С. pneumoniae, С. psittaci, С. pecorum, С. muridarum, С. felts, С. abortus, С. suis и С. caviae. С. trachomatis классифицируется с разделением на два биовара — биовар трахомы и биовар, вызывающий венерическую лимфогранулему. Материал, изложенный в данной и последующих статьях на сайте, ограничен заболеваниями хламидийной этиологии у человека.
а) Этиология. Для хламидии характерна грамотрицательная структура клеточной стенки, которая состоит из наружной мембраны, содержащей липополисахарид, и внутренней цитоплазматической мембраны. Наружная мембрана содержит один 40-кДа-основной белок наружной мембраны — OmpA (также известный как МОМР) и два минорных белка, связанных с наружной мембраной, с высоким содержанием цистеина — OmpA и OmpB.
Посредством межмолекулярных и внутримолекулярных дисульфидных связей эти белки образуют комплекс, обеспечивающий структурную жесткость.
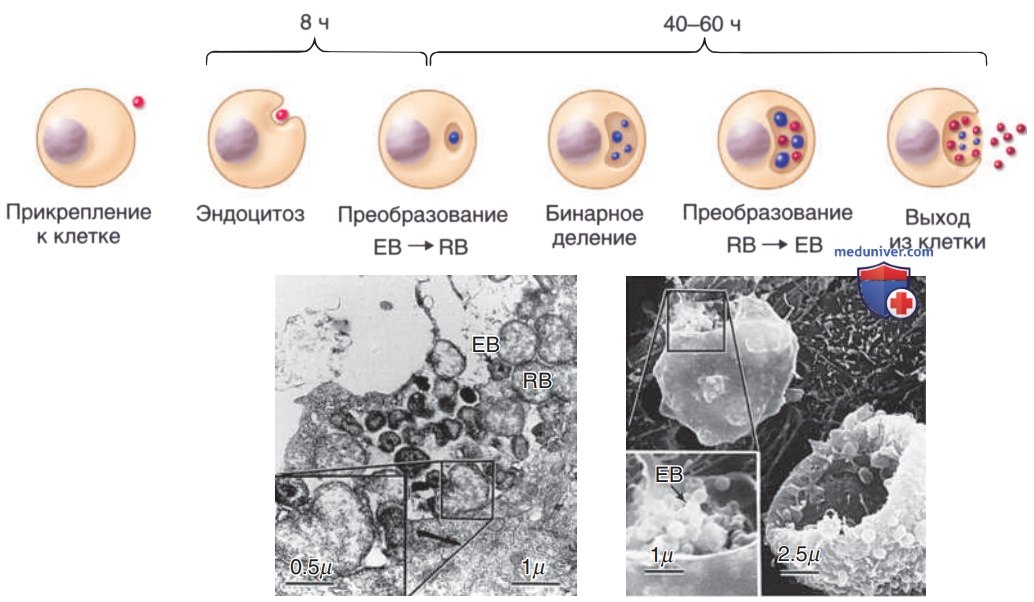
Хламидии растут только внутри клеток, связанных с мембраной вакуолей, называемых включениями, которые изолируют микроорганизм от внеклеточной и цитоплазматической сред. Отличительная черта хламидий — двухфазный цикл развития (рис. ниже), который включает внеклеточную, метаболическую неактивную, инфекционную форму (элементарное тельце) и внутриклеточную репликативную форму (ретикулярное тельце).
Цикл развития хламидий. В верхней части рисунка показан цикл развития — общий для всех видов хламидий. Точки красного цвета обозначают элементарные тельца, точки синего цвета — ретикулярные тельца. Хламидии инфицируют эукариотические клетки с помощью многочисленных механизмов прикрепления к клетке. После прикрепления к клетке элементарные тельца проникают в клетку внутри образованной, связанной с мембраной вакуоли (фагосомы), которая остается нерасплавленной лизосомальными ферментами. Элементарные тельца преобразуются в ретикулярные тельца, после чего 8-12 раз асинхронно реплицируются с периодом удвоения 2-3 ч. После завершения цикла роста ретикулярные тельца преобразуются снова в элементарные тельца, при этом в каждом включении образуется 100-1000 новых инфекционных форм элементарных телец. В нижней части рисунка на микрофотографии, полученной в режиме просвечивающей электронной микроскопии и выполненной через 40 ч после инфицирования, видны более крупные ретикулярные тельца и более мелкие элементарные тельца, имеющие плотную ядерную структуру в своей цитоплазме. В правой нижней части рисунка на микрофотографии, полученной в режиме сканирующей электронной микроскопии и выполненной через 60 ч после инфицирования, видна связанная с цитоплазмой вакуоль, содержащая множество элементарных телец, вышедших из инфицированной клетки HeLa
Результаты исследований в условиях in vitro показали, что хламидии могут в определенных условиях (лечение пенициллином, воздействие определенных цитокинов, ограниченное поступление отдельных питательных в-в) переходить в персистирующее состояние, в котором их метаболическая активность снижается и повышается устойчивость к АБТ. Происходит ли подобное в условиях in vivo, неизвестно.
Хламидии неспособны синтезировать АТФ и зависимы от клетки-хозяина в отношении питательных в-в для удовлетворения своих энергетических потребностей.
б) Патофизиология. Макрофаги — основные клетки-хозяева для С. psittaci и С. trachomatis биовара венерической лимфогранулемы. Основные клетки-хозяева для биовара трахомы С. trachomatis и штаммов С. pneumoniae — клетки цилиндрического эпителия на участках слизистых оболочек. Тропизм клеток-хозяев коррелирует с типом воспалительного процесса, вызванного хламидиями. Биовар венерической лимфогранулемы и С. psittaci вызывают развитие гранулематозного воспаления, характерного для реакций ГЗТ.
Биовар трахомы вызывает образование нейтрофильного экссудата в острый период инфекции и мононуклеарную инфильтрацию подслизистого слоя с образованием лимфоидных фолликулов на более поздних стадиях. Хламидии вызывают иммунный ответ на гуморальном и клеточном уровне. Инфекция может персистировать или повторно развиваться даже после формирования иммунного ответа. Это подтверждает, что патогенный микроорганизм выработал механизмы уклонения от иммунной защиты.
Персистирующие или рекуррентные инфекции могут индуцировать воспалительные клеточные иммунные реакции, вызывающие повреждение тканей.
Дополнительные сведения о хламидийной клеточной биологии получены после секвенирования нескольких хламидийных геномов. Были идентифицированы полиморфные белки наружной мембраны, но их роль в патогенезе заболевания остается неясной.
Было также установлено, что хламидии экспрессируют белки, которые локализуются на цитоплазматической поверхности мембраны включений (в частности, IncА). Показано наличие у С. trachomatis генов секреции III типа, которые могут кодировать секреторный аппарат, обеспечивая механизмы транспорта белков. Геномы хламидий небольшого размера (С. trachomatis содержит 894 белок-кодирующего гена, С. pneumoniae содержит 1052 гена).
Большинство штаммов С. trachomatis и некоторые штаммы С. psittaci содержат криптическую плазмиду размером 7000 пар нуклеотидов.
в) Хламидиозы. В табл. 1 представлены сводные данные о заболеваниях хламидийной этиологии у человека с соответствующими клиническими и лабораторными характеристиками.