Почка регулирует ионный состав и объем биологических жидкостей, выведение азотистых шлаков и экзогенных молекул (например, многих ЛП), синтез различных гормонов (например, эритропоэтина) и метаболизм низкомолекулярных белков (например, инсулина). Обладая таким множеством функций, почка получает 25% сердечного выброса. Вес почки -150 г, форма органа бобовидная размерами 11x6x2,5 см.
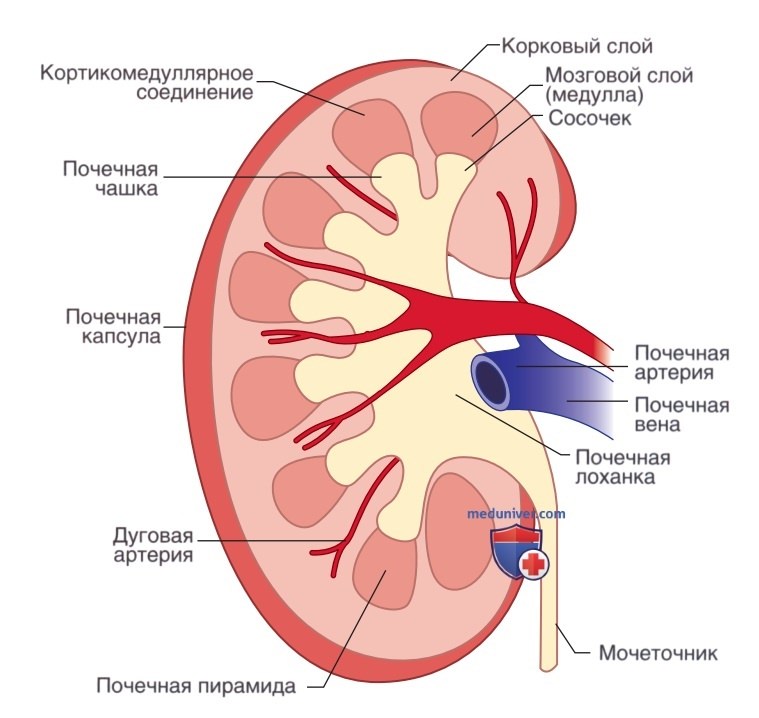
При продольном разрезе орган представлен внешней корой и более центральным продолговатым мозговым веществом, которое сужается до нескольких сосочков на вершинах так называемых пирамид (рис. 1).
Рисунок 1. Сагиттальный разрез человеческой почки с изображением топографической анатомии и организации органа
Понимание механизмов работы почки требует знания сложной микроструктуры, которая лежит в основе функций этого органа. Хотя почка является органом, нефрон на самом деле является самостоятельной фильтрующей единицей. В среднем каждая почка человека состоит из 1 млн практически одинаковых нефронов. Все функции выполняются каждым отдельным нефроном, и в первом приближении все они независимы друг от друга, потому что имеют свою собственную иннервацию и кровоснабжение.
Нефрон состоит из двух функциональных субъединиц: клубочка и канальцев, включая собирательные трубочки (рис. 2). Клубочек начинается с разветвления афферентной артериолы, конечной веточки соответствующей почечной артерии, до пучка капилляров. Клубочковые капилляры окружены висцеральными эпителиальными клетками, смежными с капиллярами, и париетальными эпителиальными клетками вне этого пучка. Пространство между эпителиальными слоями является мочевым пространством.
Рисунок 2. Строение нефрона. А. Строение коркового и юкстагломерулярного нефронов. B. Анатомия клубочка. C. Световая микроскопия клубочка человека. Е — эндотелиальная клетка; М — мезангиальная клетка; Р — париетальная эпителиальная клетка; V — висцеральная эпителиальная клетка
Фенестрированный клубочковый капиллярный эндотелий и отростки висцерального эпителия в виде ножек (подоциты) с базальной мембраной между ними составляют клубочковый фильтрационный барьер. Баланс гидростатического и онкотического давления приводит к вытеснению не содержащего белка фильтрата через этот барьер в мочевое пространство. Мочевое пространство затем ведет к канальцам и протокам: проксимальному канальцу, тонкой части петли Генле, толстой части петли Генле, дистальному извитому канальцу, кортикальной и медуллярной собирательным трубочкам.
Папиллярная собирательная трубочка выводит мочу через почечный сосочек в почечную лоханку, а затем в мочеточник.
Гломерулярное капиллярное русло объединяется, образуя эфферентную артериолу — сосуд, который чрезвычайно чувствителен к ангиотензину II, переходя затем в перитубулярные (проксимальные) капилляры. Эта система позволяет при сужении эфферентных артериол регулировать реабсорбцию в проксимальных канальцах, как описано далее.
Нефрон регулирует гомеостаз тремя механизмами. Во-первых, в своих клубочках нефроны вместе производят до 120 мл/мин ультрафильтрата крови. Во-вторых, различные сегменты нефрона изменяют состав фильтрата путем переноса почти 99% его компонентов (например, глюкозы, NaCl, воды) из мочевого пространства в кровь. В-третьих, из крови в мочевое пространство выделяются дополнительные электролиты (например, NH4+, К+, НСО3).
Для выполнения этих функций каждый сегмент нефрона, за исключением собирательных трубочек, состоит из одного типа эпителиальных клеток, чья люминальная/апикальная (обращенная к моче) и базолатеральная (обращенная к крови) поверхности по-разному экспрессируют различные белки и липиды. Так, апикальная мембрана часто имеет микроворсинки/реснички, тогда как базолатеральная мембрана их не имеет. Поляризованный эндоцитоз и экзоцитоз часто играют важную роль в регуляции количества транспортных белков на апикальной поверхности.
Кроме того, эпителиоциты связаны друг с другом плотными соединениями, которые придают характерную ионную проницаемость эпителиальному слою. Трансэпителиальный транспорт происходит в основном через клетку, но может идти и через плотное соединение (параклеточный путь). Например, транспорт натрия начинается с входа на люминальной поверхности по электрохимическому градиенту, тогда как его выход на базолатеральной поверхности требует гидролиза АТФ.
Na+/К+-АТФаза расположена на базолатеральной поверхности всего эпителия, и весь «активный» энергозатратный транспорт прямо/косвенно связан с ней, за исключением переноса Н+. Каждый сегмент имеет различный состав каналов, белков-переносчиков и АТФаз, и каждый сегмент регулируется различными химическими и физическими рецепторами, поэтому в результате «конечная моча» содержит компоненты, которые необходимо удалить для поддержания гомеостаза организма.
а) Почка регулирует внеклеточный объем жидкости путем контроля содержания натрия. За фильтрацией 180 л/сут, содержащих 24 000 мЭкв натрия, следует реабсорбция >99% отфильтрованного натрия. На реабсорбцию натрия приходится >90% кислорода, потребляемого почками. Она регулируется волюморецепторами, которые расположены в сонной артерии и увеличивают β-симпатический выброс, который, в свою очередь, высвобождает ренин, аспартатпротеазу из гранулярных клеток юкстагломерулярного аппарата, расположенного рядом с афферентной артериолой, снабжающей клубочек.
Ренин расщепляет ангиотензиноген до ангиотензина I, который затем локально превращается в ангиотензин II. Ангиотензин II связывается с рецепторами ангиотензина и сужает эфферентную артериолу, влияя тем самым на клубочковую гемодинамику. Повышенное гидростатическое давление внутри клубочковых капилляров приводит к образованию ультрафильтрата плазмы.
По мере фильтрации богатый белками онкотически активный раствор в капилляре противодействует гидростатическому давлению капиллярного клубочка до тех пор, пока до начала эфферентной артериолы не будет достигнуто равновесие давлений. Следовательно, ангиотензин II не может заметно изменять СКФ, но может увеличить проксимальную реабсорбцию за счет снижения гидростатического давления и повышения онкотического давления в перитубулярных капиллярах, которые окружают проксимальные канальцы, способствуя тем самым реабсорбции воды и растворенных веществ, таких как мочевина.
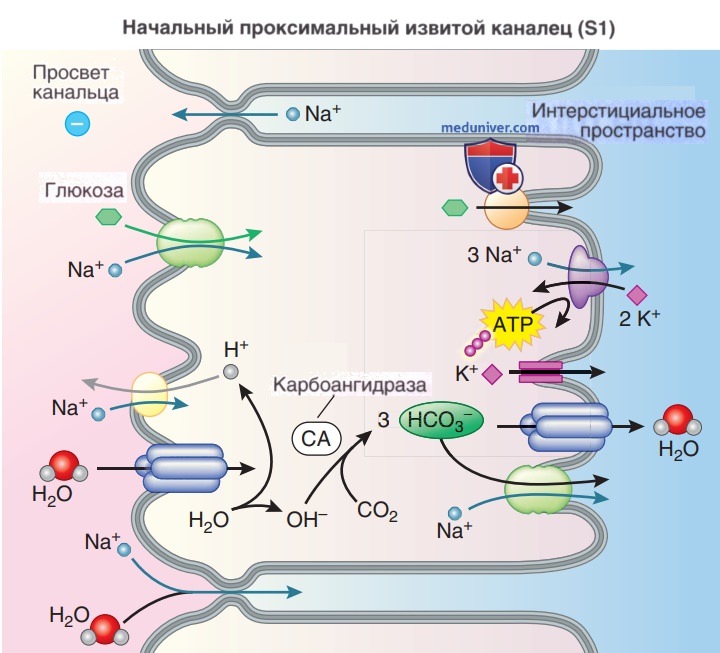
Клубочковый фильтрат затем поступает в канальцы. Na+ проходит через клетку, проникая через апикальную мембрану либо через сегмент-специфичный ко-транспортер, контртранспортер, либо натриевый канал. Апикальная мембрана проксимального канальца содержит Na+/Н+(NH3)-обменник, Na+-связанный носитель глюкозы и Na+-связанный аминокислотный и фосфатный котранспортер.
Затем Na+ активно транспортируется базолатеральной Na+/К+-АТФазой в параклеточное пространство, что приводит к локальной гипертоничности, которая, в свою очередь, приводит к формированию осмоса через плотные соединения с низким сопротивлением в начальных сегментах проксимального канальца (рис. ниже).
Реабсорбция натрия в проксимальных канальцах
В толстом восходящем колене петли Генле Na+ захватывается Na-К-2Cl-котранспортером. Движущая сила этого нейтрального носителя позволяет Na+ и Cl- проникать в клетку, но затем происходит рециркуляция К+ через апикальную мембрану, что приводит к деполяризации потенциала трансэпителиальной мембраны. В дистальном извитом канальце Na+ поглощается тиазид-чувствительным котранспортером, который проводит Na+ и СГ в строгое соотношение 1:1.
Na+ обычно выходит посредством Na+/К+-АТФазы, но есть также базолатеральный Na/Ca-котранспортер. В этом коротком сегменте плотное пятно помогает контролировать СКФ, регулируя высвобождение ренина путем секреции аденозина и Pg.
В основных клетках собирательной трубочки альдостерон из клубочковой зоны коры надпочечников является конечным критическим регулятором баланса Na+. Альдостерон увеличивает реабсорбцию конечного натрия в количестве 50-100 мг-Экв/сут, остающегося в просвете, за счет увеличения числа открытых натриевых каналов и увеличения активности базолатеральной Na+/К+-АТФазы.
Ряд этапов, которые регулируют реабсорбцию натрия, может быть нейтрализован с помощью натрийуретического пептида (ANP), который высвобождается из предсердий в ответ на перегрузку объемом. ANP увеличивает фильтрацию в клубочках, расширяя афферентную артериолу, тем самым увеличивая капиллярное давление клубочков и понижая онкотическое давление. Кроме того, это вещество увеличивает экскрецию натрия, ингибируя выделение ренина, выработку альдостерона и канальцевую реабсорбцию натрия в терминальной собирательной трубочке.
б) Почка управляет осмолярностью путем контроля содержания воды. Вода свободно перемещается между всеми клетками и отделами тела через водопроводящие каналы, называемые аквапоринами. Осмолярность (концентрация воды) строго регулируется для предотвращения развития отека или уменьшения объема клетки с помощью механизмов, которые контролируют потребление (жажду) и выведение жидкости, посредством чего почка может изменять осмолярность мочи. Каналы в толстой восходящей петле, дистальном канальце и собирательной трубочке поглощают натрий без воды, чтобы разбавить мочу.
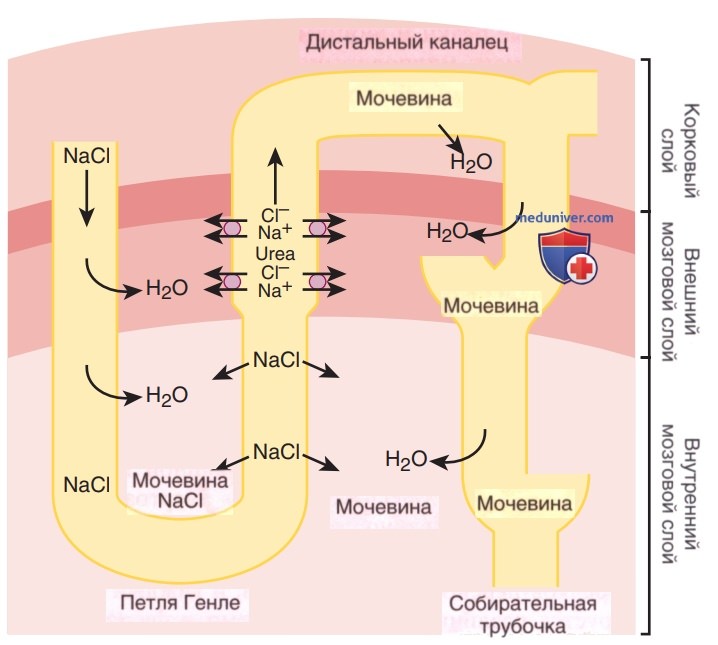
Поглощенный NaCl и мочевина обеспечивают образование гиперосмотической области в мозговом веществе, где ограниченный кровоток поддерживает осмотический градиент. Чтобы сконцентрировать мочу, вода удаляется из фильтрата посредством этого осмотического градиента, когда она проходит через кортикальные и медуллярные собирательные трубочки.
АДГ, также называемый вазопрессином, является критическим компонентом утилизации воды. Изменения осмолярности <1% заставляют клетки нейрогипофиза сокращаться и посредством активации TRPV1-каналов высвобождать АДГ. В почках АДГ связывается с рецептором вазопрессина 2-го типа в собирательных трубочках и увеличивает проницаемость для воды путем обратимой вставки водного канала, называемого аквапорином 2, в апикальную мембрану.
Во время водной депривации разбавленная моча, образующаяся в толстой восходящей части петли, попадает в чувствительные к вазопрессину сегменты в кортикальном собирающем канальце, где основная масса воды абсорбируется в кору для увеличения осмолярности фильтрата мочи до 300 мОсм, что эквивалентно осмолярности плазмы. Затем, проходя через собирательную трубочку в мозговом веществе, моча становится концентрированной, поскольку она уравновешивается с осмолярностью мозгового вещества (рис. 3).
Рисунок 3. Регулирование состава воды
в) Почка регулирует уровень pH плазмы путем контроля содержания HCO3-. Концентрация свободного Н+ во внутриклеточной и внеклеточной жидкостях поддерживается на уровне 40 нМ (pH 7,4) путем ежедневного выведения кислоты/основания в количествах, равных количеству, которое генерируется при потреблении с пищей и при клеточной активности. Полное окисление углеводов и жиров приводит к образованию ~15-20 моль/сут летучей кислоты СО2, а нелетучие кислоты, образующиеся в результате метаболизма белков, составляют 60-80 мгЭкв/сут.
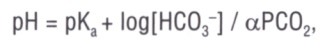
НСО3- — наиболее важный буфер, потому что он является метаболической кислотой и приводит к образованию СО2, выделяющегося с дыханием, и может регенерироваться почкой. Общая взаимосвязь этой буферной системы описывается уравнением Гендерсона-Хассельбаха:
где рКa = 6,1, а а представляет собой коэффициент растворимости РСО2 (0,03). Поскольку все буферы организма (например, кости, внутриклеточные белки) находятся в равновесии, изменения концентрации НСО3- регулируют уровень pH жидкостей организма.
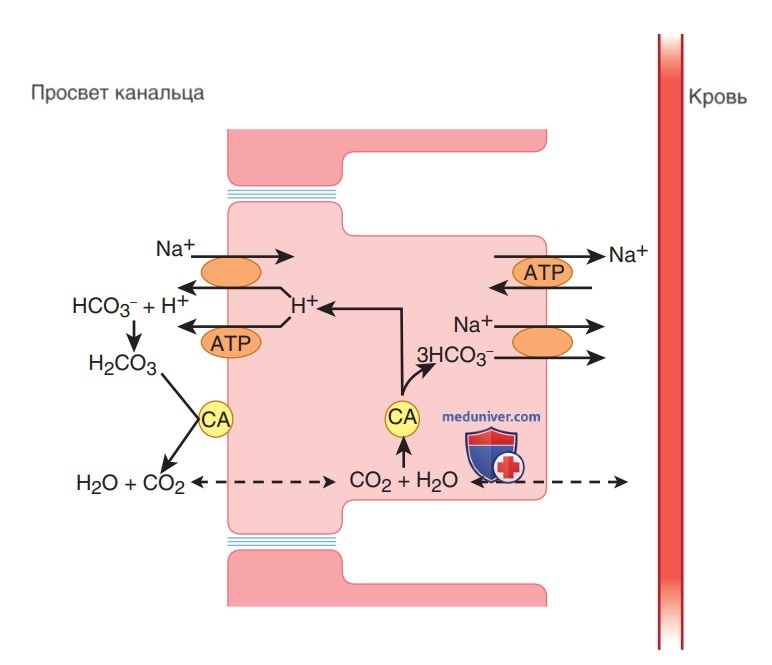
Почка реабсорбирует 5000 мгЭкв НСО3-, который фильтруется ежедневно. Помимо этой задачи, она должна возместить НСО3-, теряемый в результате производства кислоты при окислительном метаболизме. Проксимальные канальцы реабсорбируют люминальный НСО3- путем секреции Н+ через апикальный Na+/H+-котранспортер, который непосредственно стимулируется ангиотензином II для секреции Н+ при строгом обмене с Na+ 1:1, тем самым опосредуя как абсорбцию натрия, так и секрецию Н+.
Н+-АТФаза присутствует на апикальной мембране. Секреция Н+ титрует отфильтрованный НСО3- и, катализируемая угольной ангидразой, превращает его в СО2 и воду, тем самым обеспечивая реабсорбцию СО2. Секреция Н+ приводит к избытку ОН в клетке, где он соединяется с СО2 с образованием клеточного НСО3-, который затем выходит через базолатеральную мембрану посредством котранспортера Na-HCO3- (рис. ниже).
Транспорт ионов в проксимальных канальцах. АТР — АТФ; СА — карбоангидраза
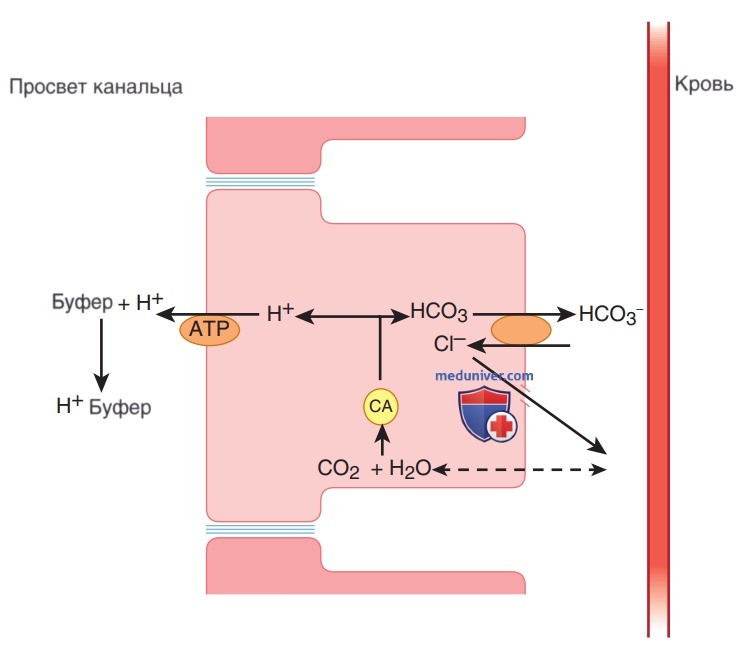
Учитывая, что проксимальные канальцы регулируют реабсорбцию бикарбоната, собирательная трубочка должна производить «новый» НСО3, чтобы заменить тот, что теряется во время титрования нелетучими кислотами. Кортикальные собирательные трубочки содержат интеркалированные клетки, которые опосредуют секрецию Н+ (α-интеркалированные клетки), и типы β-клеток, которые опосредуют секрецию НСО3-, тогда как в мозговом веществе присутствуют только α-клетки. В α-интеркалированной клетке секреция Н+ опосредуется Н+-АТФазой, которая доставляется к апикальной мембране путем слияния апикальных везикул, стимулируемых окружающим РСО2 (рис. 4).
Рисунок 4. Механизм секреции кислот в собирательной трубочке. АТР — АТФ; СА — карбоангидраза
В реакции, катализируемой карбоангидразой II, избыток ОН карбоксилируется СО2 с образованием НСО3-. НСО3- затем транспортируется через базолатеральную поверхность в обмен на Cl- посредством анионного транспортера эритроцитов. Напротив, 0-клетки секретируют НСО3- с помощью апикального Cl/НСО3-котранспортера (пендрина) и базолатеральной Н+-АТФазы. Н+/К+-АТФаза в собирательных трубочках может играть роль в реабсорбции калия и, возможно, в секреции Н+.
Собирательная трубочка представляет собой «плотный эпителий», который может поддерживать электрические и концентрационные градиенты. Секреция Н+ снижает pH фильтрата. Максимальный градиент составляет 3 единицы pH/180 мВ, но как размер градиента pH, так и его потенциал на трансэпителиальной мембране могут быть изменены для точной настройки секреции Н+. Например, поглощение Na+ основной клеткой гиперполяризует эпителий и, таким образом, может стимулировать секрецию Н+. Альдостерон, помимо регуляции абсорбции Na+, независимо может стимулировать секрецию Н+, следовательно, это основной гормон, который стимулирует секрецию кислоты в собирательных трубочках.
Наконец, хронический метаболический ацидоз превращает β-интеркалированные клетки в а-интеркалированные клетки, преимущественно увеличивая количество клеток, секретирующих кислоту, и уменьшая количество клеток, секретирующих НСО3-, в этом сегменте.
Секретируемый Н+ титрует в моче NH3 и НРО42-. NH3, который синтезируется путем превращения глютамина в α-кетоглутарат, секретируется в проксимальный просвет. В петле Генле и дистальных сегментах протонированный ион аммония переносится в интерстиций, откуда он вновь входит в нефрон в виде газообразного аммиака. Попав в просвет, газообразный аммиак репротонируется до аммония, задерживая тем самым протон. Количество NH3, образующегося из глютамина, увеличивается в 4-5 раз при метаболическом ацидозе.
Следовательно, чистая секреция кислоты представляет собой мочевой NH4+ плюс титруемые слабые кислоты (такие как НРО42-) минус мочевой НСО3-. Каждый из этих компонентов регулируется почкой.
г) Почка регулирует калий плазмы путем секреции и контроля внеклеточного уровня pH. Поскольку мембранный потенциал большинства клеток определяется соотношением внутриклеточного и внеклеточного калия, концентрация калия в плазме должна строго регулироваться. Большая часть пищевого калия попадает в клетку с помощью Na+/K+-АТФазы, но 90% потребляемого калия в конечном итоге должно выводиться с мочой. К+ фильтруется, а затем реабсорбируется проксимальными канальцами и петлей Генле.
Далее секретируется дистальными извитыми канальцами и главными клетками через апикальные наружные мозговые калиевые каналы (ROMK-каналы) и калиевые каналы с большой проводимостью, активируемые кальцием (ВК-каналы). Градиент, в котором клеточный К+ больше люминального К+, вытесняет К+ из клетки. Секреция усиливается повышенным проникновением К+ в главную клетку в результате высокой внеклеточной концентрации, при метаболическом алкалозе и посредством альдостерона.
Альдостерон увеличивает синтез Na+/К+-АТФазы и вероятность того, что ROMK-каналы будут открыты. Альдостерон также усиливает реабсорбцию Na+ с помощью натриевых каналов, тем самым гиперполяризуя потенциал трансэпителиальной мембраны, что увеличивает движущую силу секреции калия. Высокие скорости потока мочи доставляют большой объем жидкости, который, по существу, не содержит К+, тем самым обеспечивая градиент концентрации.
Скорость потока активирует механосенсорные реснички, которые приводят к увеличению клеточного кальция, активирующего ВК-каналы. Реабсорбция калия не регулируется в той же степени, что и задержка натрия, и может потребоваться глубокое истощение калия для полного прекращения его выведения почками.
д) Почка регулирует уровень PO4 и Ca2+ плазмы путем экскреции и синтеза витамина D3. Уровень РО4 регулирует уровень Са2+ в сыворотке. Поскольку их концентрации в плазме близки к их пределу насыщения, когда происходит кристаллизация, любое значительное увеличение РО4 приводит к осаждению СаРО4.
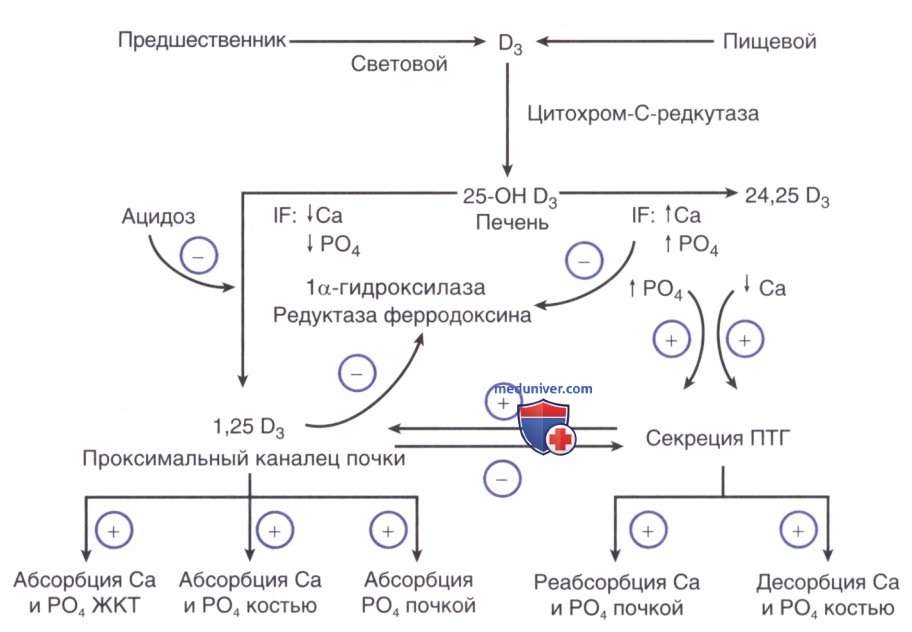
Концентрация РО4 регулируется клубочковой фильтрацией. Первоначально 85% реабсорбируется натрийфосфатными котранспортерами NaPi-2a и NaPi-2c в проксимальных канальцах. ПТГ и гетеромерный рецептор FGFR (fibroblast growth factor receptor — рецептор фактора роста фибробластов)/Klotho, который связывает фактор роста фибробластов 23 (FGF23), ингибируют экспрессию NaPi и, следовательно, увеличивают экскрецию РО4. И наоборот, проксимальные канальцы вырабатывают витамин D3 (1,25-дигидроксихолекальциферол), захватывая 25-гидроксихолекальциферол и связывая его фильтруемый транспортный белок с мегалином щеточной каймы (рис. ниже), после чего 1α-гидроксилирование стимулируется низким Са2+ и РО4.
Кальциевый и фосфатный обмен
1,25-витамин-D3 ингибирует ПТГ и стимулирует реабсорбцию РО4 в кишечнике и почках, тем самым противодействуя ПТГ и FGF23-Klotho. Тем не менее передача сигналов Klotho блокирует синтез 1,25-витамина-D3, что позволяет предположить, что он доминирует в контроле над РО4.
Почками также регулируется уровень сывороточного кальция. Примерно 60% кальция сыворотки крови фильтруется, после чего следует реабсорбция натрия в проксимальных канальцах и петле Генле, где поглощение кальция определяется положительным мембранным потенциалом, генерируемым Na-K-2Cl/К-рециркуляционным транспортером. Кальций и натрий регулируются независимо в дистальном извитом канальце с помощью ПТГ и Klotho, которые усиливают реабсорбцию. Метаболизм фосфатов и кальция регулируется регенерацией натрия, ПТГ, 1,25-дигидроксихолекальциферолом и Klotho в различных сегментах нефрона.
Видео физиология фильтрации в почках и поддержки осмотического давления крови - профессор, д.м.н. П.Е. Умрюхин