Нарушения обмена липидов встречаются все чаще в рамках современного индустриального образа жизни. С повышением благосостояния, распространением западных диет и малоподвижного образа жизни отмечается чрезвычайное увеличение частоты ожирения в странах по всему миру.
Неправильный образ жизни в сочетании с генетической предрасположенностью обычно приводит к развитию дислипидемии, характеризующейся более высокими концентрациями атерогенных Аро В-100, богатых ХС и триглицеридами; Аро В-48, богатых триглицеридами; и более низким содержанием Аро А. В рамках первичной диагностики показатели Аро могут быть количественно отражены в содержании ХС ЛПНП, триглицеридов, ХС ЛПВП и ХС не-ЛПВП в плазме крови.
Наиболее частыми клиническими проявлениями дислипидемий являются атеросклеротические ССЗ, возникающие вследствие повышения уровней Аро В-100. Роль Аро А в развитии (или защите от) ССЗ менее ясна. Тяжелая гипертриглицеридемия в первую очередь приводит к повышению риска развития панкреатита.
а) Холестерин и триглицериды. ХС является незаменимым компонентом всех клеточных мембран животных организмов; он также является предшественником жирорастворимых витаминов и стероидных гормонов (кортизол, эстрадиол, прогестины, тестостерон). В растениях стеролы, а не ХС, являются структурными компонентами клеточных мембран. Триглицериды состоят из трех цепочек жирных кислот, соединенных с молекулой глицерина.
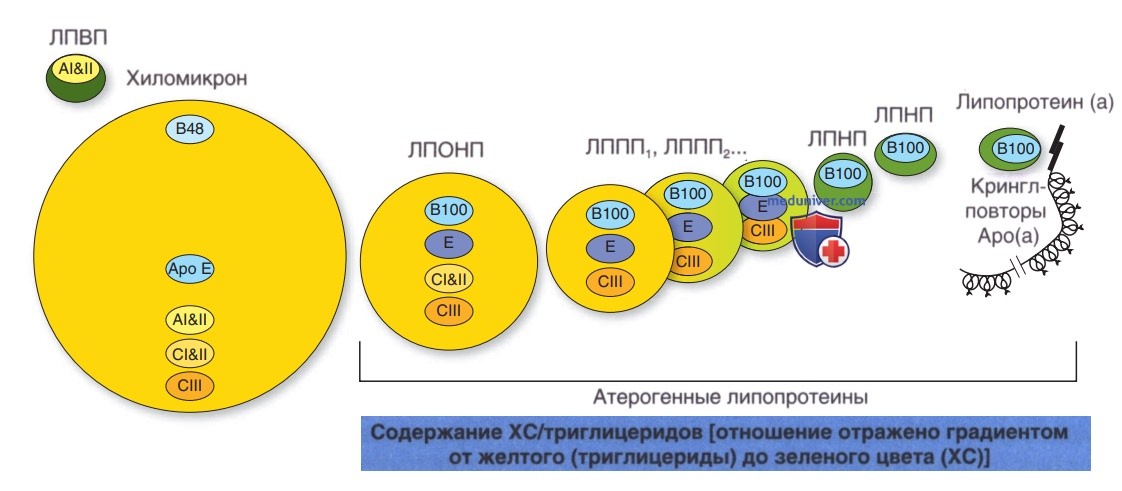
Триглицериды являются источником энергии, особенно при голодании. ХС и триглицериды нерастворимы в воде, что обусловливает необходимость их транспорта в плазме крови в составе липопротеиновых частиц (рис. 1). Аро представляют собой амфипатические молекулы, расположенные на поверхности липопротеиновых частиц и служащие биохимическими «ключами» к специфическим рецепторам или активным центрам, обеспечивающим доставку, доступ или модификацию.
Рисунок 1. Относительный размер (без соблюдения масштаба), содержание триглицеридов и холестерина, основные аполипопротеины и атерогенность циркулирующих липопротеинов. Al—II — аполипопротеины Al—II; B48 — аполипопротеин B48; Apo E — аполипопротеин E; Cl—II — аполипопротеины Cl-ll; CIII — аполипопротеин CIII; B100 — аполипопротеин В-100; ЛППП — липопротеины промежуточной плотности; Apo(a) — аполипопротеин (a)
На рис. 2 представлен обзор обмена ХС, триглицеридов и липопротеинов, а также точки приложения ЛП, влияющих на обмен липидов.
Рисунок 2. Обзор обмена холестерина, триглицеридов и Аро В с указанием точек приложения лекарственных средств. Статины ингибируют стадию, лимитирующую скорость синтеза холестерина, — фермент ГМГ-КоА-редуктазу, которая связывает ацетил-КоА со свободным холестерином с образованием эфиров холестерина. Снижение содержания внутрипеченочного свободного холестерина приводит к повышению количества рецепторов липопротеинов низкой плотности (ЛПНП) на клеточной мембране, облегчая экстракцию холестерина липопротеинов низкой плотности из плазмы крови. Секвестранты желчных кислот и эзетимиб снижают количество холестерина ЛПНП плазмы крови путем уменьшения внутриклеточной концентрации свободного холестерина. Секвестранты желчных кислот связывают желчные кислоты при помощи IBAT, прерывая энтерогепатическую циркуляцию свободного холестерина желчных кислот. Эзетимиб оказывает действие на NPC1L1 в кишечной стенке, предотвращает всасывание холестерина из пищи и желчи. Данный лекарственный препарат также блокирует захват растительных стеролов. Стеролы/станолы пищи конкурентно ингибируют захват холестерина в кишечнике. Эффективность всех трех лекарственных средств, активных в кишечнике, ограниченна вследствие компенсаторного увеличения синтеза холестерина в печени. Механизмы действия никотиновой кислоты известны лишь частично — к ним относятся частичное ингибирование высвобождения свободных жирных кислот из жировой ткани; увеличение активности липопротеинлипазы, что, в свою очередь, усиливает выведение хиломикронов из плазмы крови; снижение синтеза Аро В, который уменьшает концентрации холестерина липопротеинов очень низкой плотности (ЛПОНП) и холестерина липопротеинов промежуточной плотности (ЛППП), в том числе и триглицеридов плазмы крови; увеличение содержания холестерина липопротеинов высокой плотности (ЛПВП) вследствие снижения их захвата печенью, вероятно посредством HUR и катаболизма. Повышение концентрации холестерина ЛПВП может усиливать обратный транспорт холестерина из периферических клеток в печень. Фибраты снижают содержание триглицеридов благодаря уменьшению секреции ЛПОНП и увеличению катаболизма частиц, богатых триглицеридами, посредством нескольких механизмов, в том числе снижения продукции Аро СШ, активирующего липолиз, опосредованный липопротеинлипазой и повышающего захват клетками свободных жирных кислот, а также усиления катаболизма свободных жирных кислот. Фибраты усиливают синтез AI и АII, индуцированный холестерин ЛПВП, посредством гетеродимера «Х-рецептор печени (LXR)/Х-рецептор сетчатки». Омега-3 полиненасыщенные жирные кислоты снижают скорость синтеза ЛПОНП посредством нескольких предполагаемых механизмов: ингибирования высвобождения свободных жирных кислот из жировой ткани, ингибирования синтеза свободных жирных кислот, усиления распада Аро В. AI — аполипопротеин AI; АII — аполипопротеин АII; АВС — АТФ-связывающая кассета (ATP-binding cassette); АВСА1, ABCG1, ABCG4 — транспортеры АТФ-связывающей кассеты подсемейства А или G; Аро А — аполипопротеин А; Аро В — аполипопротеин В; Аро CIII — аполипопротеин CIII; АХАТ — ацил-КоА-ХС-ацилтрансфераза; В48 и В100 — аполипопротеины В48 и В100; CD36 — кластер дифференцировки 36; ХЭ — ХС-эфир; СЕТР — транспортный белок ХС-эфиров (cholesterol ester transfer protein); CMR — остаток хиломикрона (CM remnant); E — аполипопротеин E; ЭЛ — эндотелиальная липаза; СЖК — свободные жирные кислоты; ЛПЛ — липопротеинлипаза; ЛППП — липопротеины промежуточной плотности; LRP — белок, ассоциированный с рецептором ЛПОНП 1 (LDL receptor-related protein 1); МТР — микросомальный транспортный белок (microsomal transfer protein); PLTP — фосфолипидный транспортный белок (phospholipid transport protein); PTPL — фосфолипазный транспортный белок (phospholipase transfer protein); sPLA2 — секреторная фосфолипаза A2 (secretory phopholipase A2); LCAT — лецитин-ХС-ацилтрансфераза; HUR — рецептор голо-захвата (holo-uptake receptor); SRB-1 — белок, связывающий стероидные рецепторы (steroid receptor binding protein); SREBP — белок, связывающий регуляторный элемент стерола; ГМГ-КоА-редуктаза — 3-гидрокси-3-метилглутарил-КоА-редуктаза); LXR — Х-рецептор печени; LRP — белок, ассоциированный с рецептором ЛПОНП; IBAT — кишечный транспортер желчных кислот; NPC1L1 — С1-подобный транспортер Ниманна-Пика 1
ХС и триглицериды либо синтезируются, либо всасываются из кишечника. В организме взрослого человека синтезируется 100 мг/сут ХС. В печени синтезируется 25% всего ХС; также более высокая скорость его синтеза отмечается в ГМ, МПС, надпочечниках и кишечнике. ХС синтезируется в несколько этапов из ацетил-КоА и ацетоацетил-КоА. Стадией, лимитирующей скорость синтеза ХС, является восстановление в мевалонат посредством 3-гидрокси-3-метилглутарил-КоА-редуктазы (данный фермент является мишенью статинов).
К последующим метаболитам мевалоната относятся несколько биоактивных молекул, которые связывают с некоторыми побочными эффектами статинов.
С пищей организм получает 300-500 мг/сут ХС. Желчные кислоты обеспечивают 2/3 суточной нормы ХС (800-1200 мг), а слущенные клетки кишечника - 300 мг.
Неэтерифицированный ХС секретируется из печени в виде желчных кислот, которые накапливаются в желчном пузыре и далее поступают в тонкий кишечник, где они повышают растворимость пищевых жиров и улучшают всасывание жирных кислот, липидов и жирорастворимых витаминов. Желчные кислоты в основном реабсорбируются в дистальном отделе подвздошной кишки и транспортируются обратно в печень посредством энтерогепатической циркуляции.
Пищевые жиры и продукты животного происхождения распадаются в кишечнике, а их составляющие транспортируются в энтероциты, где они подвергаются повторной этерификации в ХС-эфиры и триглицериды. ХС всасывается из кишечника посредством С1-подобного рецептора Ниманна-Пика 1 (Niemann-Pick Cl-Like 1 receptor, NPC1L1), который может ингибироваться эзетимибом.
б) Хиломикроны. В энтероцитах триглицериды и ХС связываются с Apo В48, Аро СП и CIII и другие Аро для секреции в кровь в виде хиломикронов, богатых триглицеридами (см. рис. 1). Хиломикроны подвергаются постепенному гидролизу триглицеридов в жирные кислоты при участии липопротеинлипазы в эндотелии капилляров, с которым связываются Аро СП и другие Аро. Жирные кислоты могут накапливаться в жировой ткани или использоваться мышечной тканью в качестве «топлива».
Хиломикроны превращаются в остатки хиломикронов, относительно богатые ХС-эфирами. Хиломикроны являются крупнейшими липопротеинами; полагают, что они не вносят вклад в развитие атеросклероза. Они нерастворимы в плазме крови и обусловливают цвет «томатного супа» у свежей плазмы после взятия образцов; если сыворотку крови поместить для хранения на ночь в холодильную камеру, они аккумулируются вверху в виде «сливочного» слоя.
Меньшие остатки хиломикронов могут попадать в субэндотелиальное пространство и захватываться макрофагами, что может являться механизмом, посредством которого постпрандиальная гипертриглицеридемия способствует атерогенезу.
Хиломикроны и остатки хиломикронов также захватываются в печени белком, связанным с рецептором ЛПНП, который взаимодействует с Аро Е, а также в меньшей степени рецепторами ЛПНП и гликозаминогликанами поверхности клеток. В печени происходит распад хиломикроновых частиц, которые могут накапливаться в виде ХС-эфиров и триглицеридов, собираться в частицы ЛПОНП для секреции в кровь, либо ХС-эфиры могут включаться в состав желчных кислот для секреции в кишечник.
в) Липопротеины очень низкой плотности, липопротеины промежуточной плотности, липопротеины низкой плотности. Печень осуществляет сборку частицы ЛПОНП из одной молекулы Apo В100, ХС-эфиров, триглицеридов, а также нескольких иных Аро и липидов. Триглицериды ограничивают скорость синтеза ЛПОНП. Микросомальный транспортный белок (microsomal transfer protein, МТР) переносит триглицериды к растущему пептиду Аро В. Таким образом, ЛП, ингибирующие МТР, могут приводить к накоплению триглицеридов в печени.
Образующиеся ЛПОНП секретируются в кровь, где к ним присоединяются Аро Е, Аро СП, Аро СШ. Подобно хиломикронам, Аро СП активируют липопротеинлипазу для гидролиза триглицеридов на жирные кислоты с целью их последующего транспорта в ткани. Несмотря на то что ЛПОНП продолжают доставлять ХС и триглицериды в ткани, ЛПОНП превращаются в липопротеины промежуточной плотности (ЛППП) с повышением содержания ХС-эфиров и, наконец, в ЛПНП (см. рис. 1). ЛПНП представляют собой крупнейшую фракцию циркулирующих липопротеинов — они содержат 60-70% общего ХС из всего ОЦК.
ЛПНП удаляются из крови преимущественно рецепторами ЛПНП. Экспрессия рецепторов ЛПНП регулируется PCSK-9. В ответ на снижение внутриклеточного содержания ХС белки, связывающие стериновый регуляторный элемент (SREBP) 1 и 2, усиливают синтез рецепторов ЛПНП и PCSK-9 в печени. Рецепторы ЛПНП попадают на клеточную поверхность, где они связывают частицы ЛПНП из крови. Комплекс частица ЛПНП-рецептор ЛПНП затем переносится в везикулы, где частица ЛПНП подвергается распаду, а рецептор ЛПНП остается интактным.
Рецептор ЛПНП затем в интактном виде попадает обратно на поверхность клеток и продолжает удалять частицы ЛПНП из крови.
Одновременно с попаданием рецептора ЛПНП на клеточную поверхность молекула PCSK-9 секретируется в кровь, где она может связываться с комплексом ЛПНП-рецептор ЛПНП, помечая и рецептор ЛПНП, и частицу ЛПНП для распада. Таким образом, ингибирование или снижение концентрации PCSK-9 обеспечивает более активную циркуляцию рецепторов ЛПНП и более активное удаление частиц ЛПНП из кровотока.
Атерогенность крупных частиц ЛПОНП неясна. Очевидной атерогенностью обладают частицы ЛПОНП меньшего размера, ЛППП и ЛПНП.
г) Липопротеин (а). В печени осуществляется сборка липопротеина (а) [Lp(a)] из фрагментов Аро(а), соединенных с Аро В ЛПНП-подобной частицы (см. рис. 1). Изоформы Аро(а) достаточно вариабельны из-за того, что количество крингл-повторов определяется геном Аро(а). Размер Аро(а) обратно пропорционален концентрации Lp(a), что, как полагают, является следствием более длительного времени сборки изоформы Аро(а) с большим количеством крингл-повторов. Печень выводит Lp(a) из кровотока. Этот процесс и функции Lp(a) до конца не ясны. Lp(a) считается атерогенным.
Неизвестно, способствует ли фармакологическое снижение концентрации Lp(a) уменьшению частоты ССЗ.
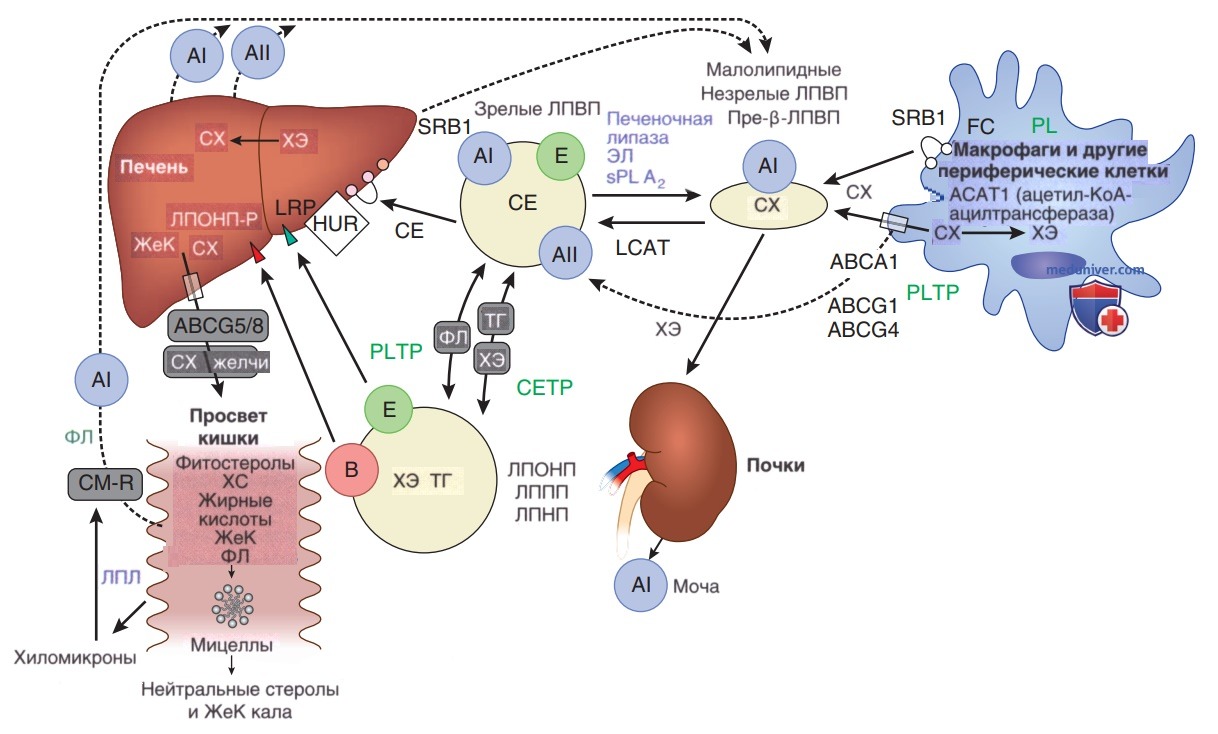
д) Липопротеины высокой плотности. ЛПВП представляют собой наиболее малые и плотные частицы из всех циркулирующих липопротеинов (см. рис. 1). ЛПВП несут в себе Аро AI и АII, а не Аро В-100 или Аро В-48. В печени из Аро AI, АII и фосфолипидов синтезируются новые ЛПВП или пре-β ЛПВП (рис. 3). По мере того как данная частица циркулирует в организме и взаимодействует с периферическими клетками, она накапливает ХС и дополнительные фосфолипиды путем связывания с белком «АТФ-связывающей кассетой» (adenosine triphosphate-binding cassette protein, ABC1) в рамках процесса «обратного транспорта ХС».
Рисунок 3. Обзор обмена липопротеинов высокой плотности и точки приложения лекарственных средств. ABCG5/8 — транспортер АТФ-связывающей кассеты подсемейства G, элемент 5/8; АВСА1 — транспортер АТФ-связывающей кассеты подсемейства А, элемент 1; ABCG1 — транспортер АТФ-связывающей кассеты подсемейства G, элемент 1; ABCG4 — транспортер АТФ-связывающей кассеты подсемейства G, элемент 4; AI и АII — аполипопротеины AI и АII; В — аполипопротеин В; ЖеК — желчные кислоты; ХЭ — ХС-эфир; СЕТР — транспортный белок ХС-эфиров (cholesterol ester transfer protein); CMR — остаток хиломикрона (CM remnant); E — аполипопротеин E; ЭЛ — эндотелиальная липаза; CX — свободный XC; HUR — рецептор голо-захвата (holo-uptake receptor); ЛППП — липопротеины промежуточной плотности; ЛХАТ — лецитин-ХС-ацилтрансфераза; ЛПОНП-Р — рецептор ЛПОНП; ЛПЛ — липопротеинлипаза; LRP — белок, ассоциированный с рецептором ЛПОНП 1 (LDL receptor-related protein 1); ФЛ — фосфолипиды; PLTP — фосфолипидный транспортный белок (phospholipid transport protein); SRB-1 — фагоцитарный рецептор В 1 типа (scavenger receptor В type 1); ТГ — триглицериды; SPLA2 — секреторная фосфолипаза А2
ЛПВП содержат в себе 30% ХС крови. Внутри частицы ЛПВП неэтерифицированный ХС этерифицируется ферментом лецитин-ХС-ацилтрансферазой. Этерифицированный ХС может удаляться из ЛПВП в печени при помощи фагоцитарного рецептора B1 (scavenger receptor B1, SR-B1). В крови этерифицированный ХС может обмениваться на триглицериды из Аро В посредством транспортного белка ХС-эфиров (cholesteryl ester transfer protein, СЕТР) в плазме крови. Фосфолипидный транспортный белок переносит фосфолипиды из Аро В в ЛПВП. Липопротеинлипаза гидролизует триглицериды из ЛПОНП и хиломикронов для ЛПВП. Посредством липазы печени триглицериды удаляются из ЛПВП.
В эпидемиологических исследованиях низкие концентрации ЛПВП, ХС ЛПВП и Аро AI приводят к повышению риска развития ССЗ. Неясно, обусловливает ли низкий уровень ХС ЛПВП, зачастую сопровождающийся повышением содержания триглицеридов, развитие ССЗ или же он попросту является маркером нарушения обмена глюкозы и инсулинорезистентности. В менделевских РКИ не удалось обнаружить взаимосвязь между генами, способствующими повышению уровня ХС ЛПВП, и риском развития ССЗ.
В РКИ ЛП, повышающие концентрацию ХС ЛПВП (никотиновая кислота, ингибиторы СЕТР), не продемонстрировали снижения риска развития ССЗ, за исключением своего влияния на содержание ХС ЛПНП и ХС не-ЛПВП. В самом деле, существует несколько генетических полиморфизмов, которые способствуют значимому повышению концентрации ХС ЛПВП, но также приводят и к повышению риска развития ССЗ. Предложено несколько механизмов подобного увеличения риска, включая превращение ЛПВП в более провоспалительную молекулу или нарушение обратного транспорта ХС.
Функциональность ЛПВП, измеряемая в рамках обратных in vitro анализов на ХС, приводит к снижению риска ССЗ, независимо от содержания ХС ЛПВП. Редкая мутация Аро AI (AI-Milano) ведет к снижению содержания ХС ЛПВП, а также риска ССЗ, что, как полагают, опосредуется более эффективным обратным транспортом ХС. Аро АП приводят к повышению риска ССЗ посредством неизвестных механизмов.