Нарушения нервно-мышечной передачи - кратко с точки зрения терапии
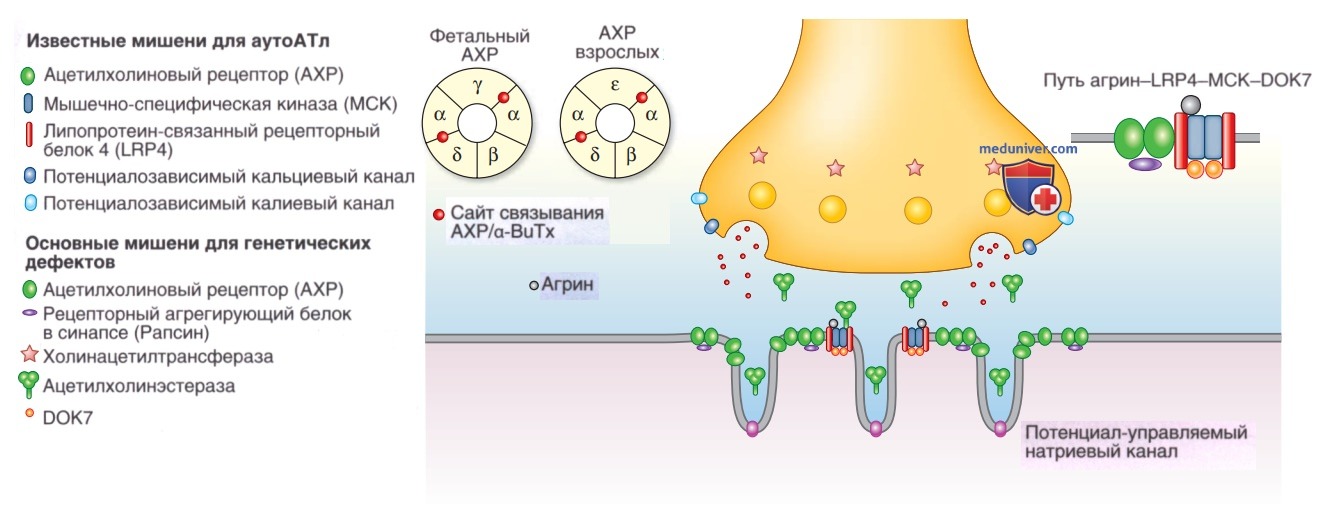
Нервно-мышечная передача зависит от высвобождения ацетилхолина из синаптических пузырьков, которые расположены в синаптических окончаниях аксона двигательного нерва (рис. ниже). Активация двигательного нервного волокна и возникновение потенциала действия открывает потенциалозависимые кальциевые каналы, что приводит к Са2+-зависимому высвобождению ацетилхолина в синаптическое пространство.
Схематическое изображение нервно-мышечного соединения с указанием ионных каналов, рецепторов, ферментов и связанных с ними белков, которые являются наиболее частыми мишенями для аутоиммунных заболеваний (слева)/мутаций при генетических заболеваниях (справа). Ацетилхолиновый рецептор существует в фетальной и взрослой изоформах, как показано сверху слева. Замена фетальной формы взрослой происходит ближе к концу беременности. Рецепторный белок, связанный с агрином-липопротеином 4 — мышечно-специфическая киназа 4 — нисходящий путь киназы 7 с участием ацетилхолиновых рецепторов на постсинаптической мембране, показан вверху справа. α-BuТх — α-бунгаротоксин, змеиный токсин, который с высокой специфичностью связывается с двумя сайтами связывания ацетилхолина на ацетилхолиновом рецепторе
Ацетилхолин связывается с ацетилхолинергическими ионными каналами [ацетилхолиновыми рецепторами (АХР)] на постсинаптической мембране, что приводит к открытию этих каналов и развитию деполяризации и к возникновению потенциала действия концевой пластинки.
Если потенциал концевой пластинки превышает критический порог деполяризации, потенциал-управляемые натриевые каналы (расположенные в нижней части складок постсинаптических мембран) открываются и генерируют потенциал действия мышц, который распространяется вдоль мышечного волокна и активирует мышечное сокращение.
Действие ацетилхолина прекращается его диссоциацией от АХР, которые спонтанно закрываются через 1-4 мс, гидролизом ацетилхолина ацетилхолинэстеразой и диффузией ацетилхолина из синаптической щели. Между тем в терминальной части двигательного нерва потенциалозависимые кальциевые каналы спонтанно закрываются, и остаточный потенциал мембраны восстанавливается через временный проход потенциал-управляемых калиевых каналов.
Степень, в которой амплитуда потенциала концевой пластинки превышает порог активации потенциал-управляемых натриевых каналов, называется фактором защищенности. У ЗЛ амплитуда уменьшается при повторной активности, но не опускается ниже этого порога; таким образом, нервно-мышечная передача не нарушается.
Однако если имеется аномально низкая амплитуда потенциала концевой пластинки, может произойти сбой нервно-мышечной передачи. Причины таких сбоев включают нарушение высвобождения ацетилхолина, изменения постсинаптической реакции на ацетилхолин, количества/чувствительности потенциал-управляемых натриевых каналов.
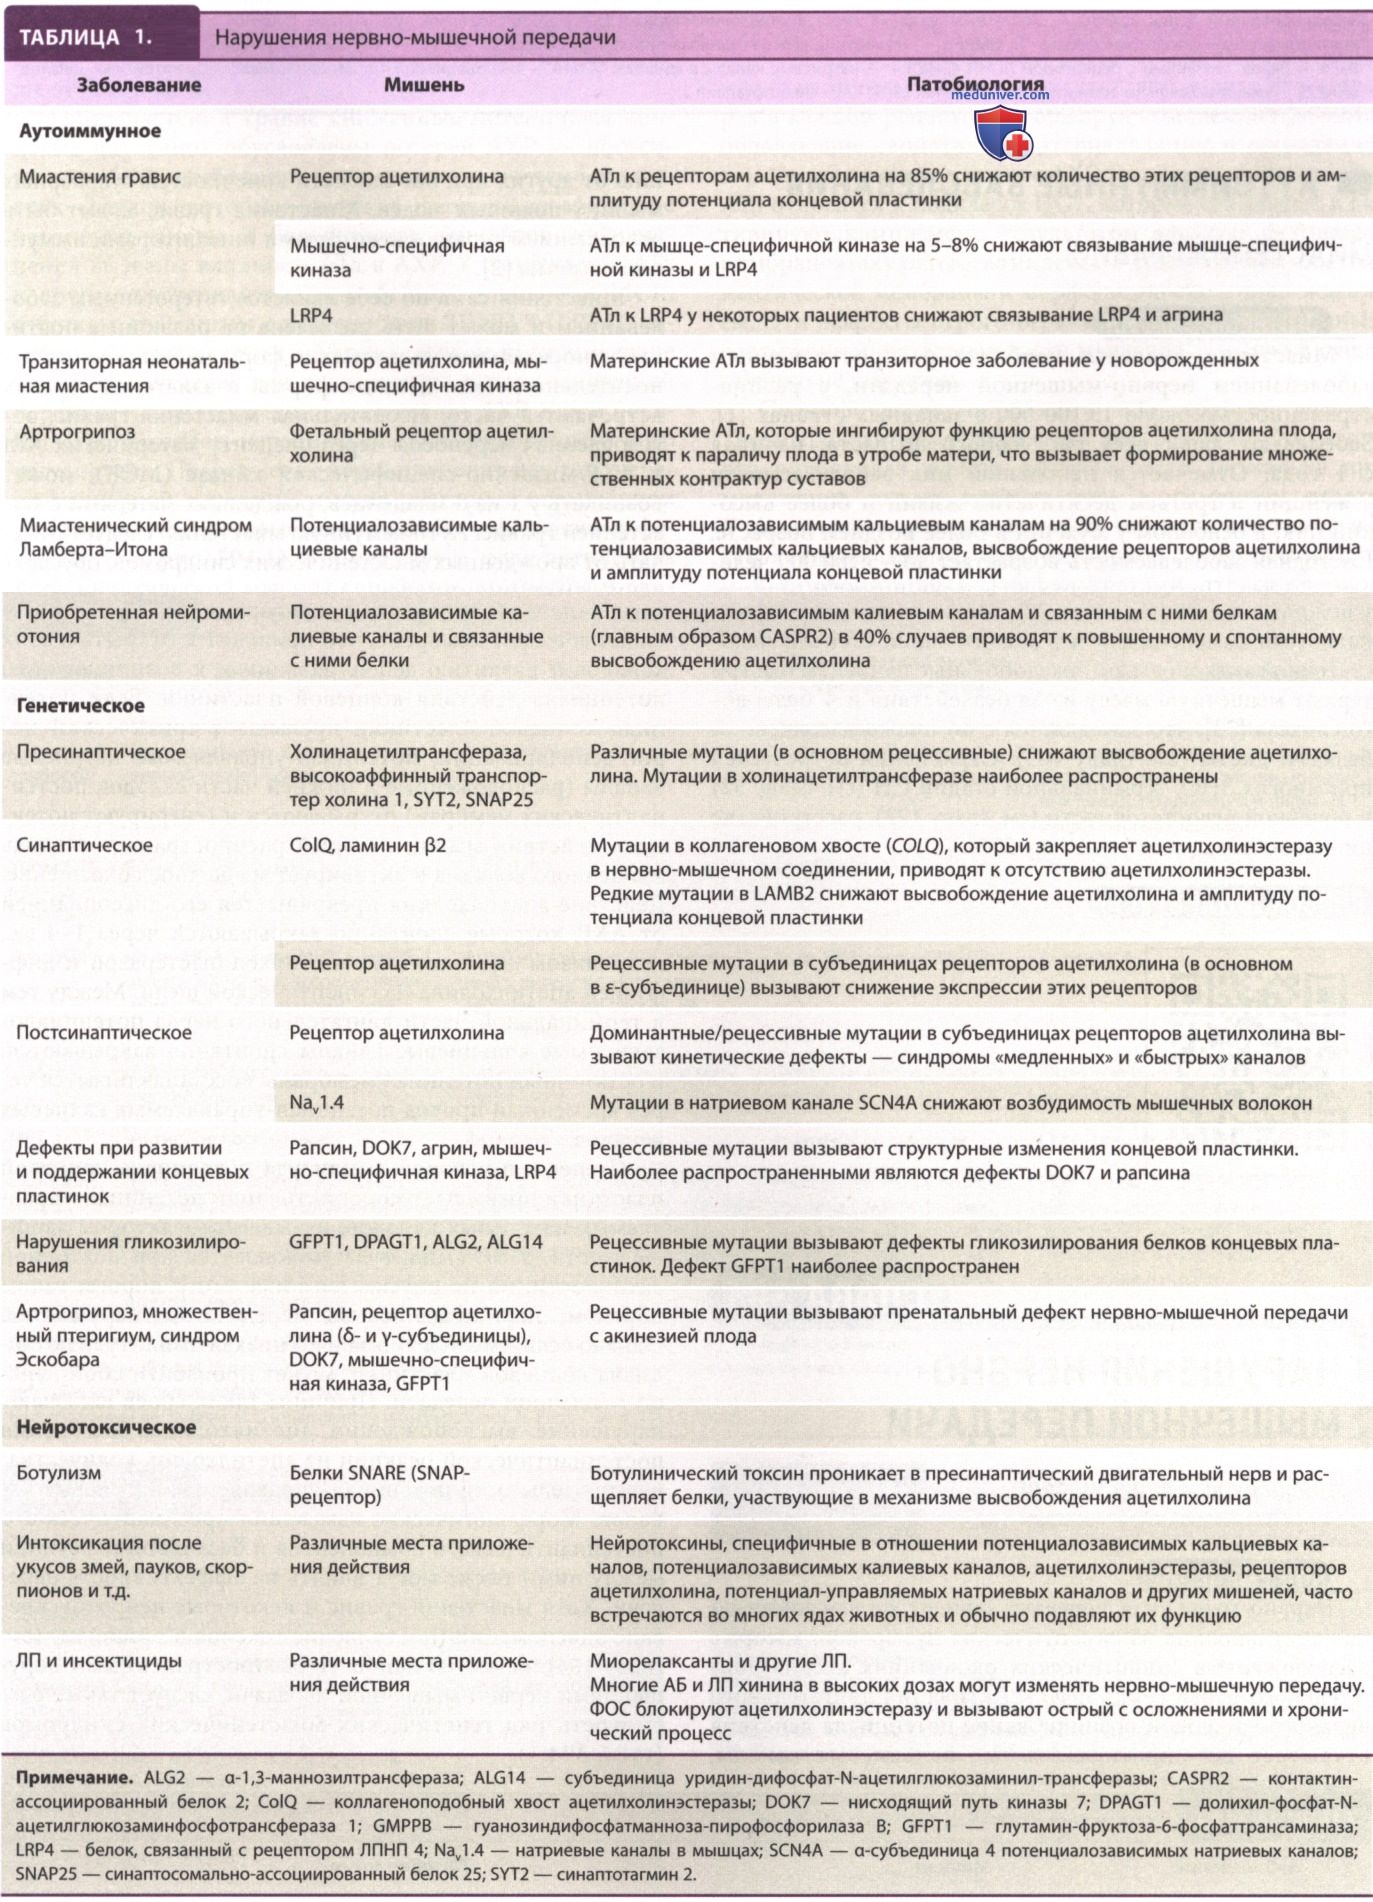
Морфологические изменения пресинаптического/постсинаптического компонентов и базальной пластинки между ними также могут влиять на эффективность передачи. Хотя миастения гравис и некоторые нейротоксические энвеномации (поступление токсина в организм) являются наиболее распространенными нарушениями нервно-мышечной передачи, следует также рассмотреть ряд генетических миастенических синдромов (табл. 1).