Зрелый эритроцит отличается от других клеток организма. Он не имеет ядра, ДНК, РНК и рибосом, а также не может синтезировать РНК, ДНК или белки. Он не делится, в нем отсутствуют митохондрии и цикл Кребса, система переноса электронов для окислительного фосфорилирования.
После энуклеации ретикулоцит, предшественник зрелого эритроцита, покидает костный мозг и попадает в кровоток. Он снабжен полным набором ферментов, переносчиков, сигнальных молекул и других белков, необходимых для выполнения основных функций эритроцита в течение его жизни.
На мембрану эритроцитов приходится ~1% общей массы клетки. Мембрана играет решающую роль в поддержании нормального гомеостаза эритроцитов посредством ряда механизмов. К ним относятся сохранение жизненно важных соединений и удаление продуктов обмена веществ, регуляция метаболизма и pH эритроцитов, а также импорт железа, необходимого для синтеза Hb во время эритропоэза.
Мембрана обладает скользкой поверхностью, благодаря чему не происходит агрегации эритроцитов, и они не прилипают к эндотелиальным клеткам. Мембранный скелет — сеть белков на внутренней поверхности эритроцитов. Он обеспечивает прочность и гибкость, необходимые для поддержания нормальной формы и деформируемости эритроцитов.
Основные функции метаболизма зрелых эритроцитов включают поддержание надлежащего уровня запасов АТФ, выработку восстанавливающих веществ, действующих как антиоксиданты, а также контроль сродства кислорода к Hb путем выработки необходимого количества 2,3-дифосфоглицерата (2,3-ДФГ).
Поскольку зрелый эритроцит не может выполнять окислительное фосфорилирование, он получает энергию за счет анаэробного гликолиза по пути Эмбдена-Мейергофа, окислительного гликолиза через пентозофосфатный путь и через путь реутилизации нуклеотидов.
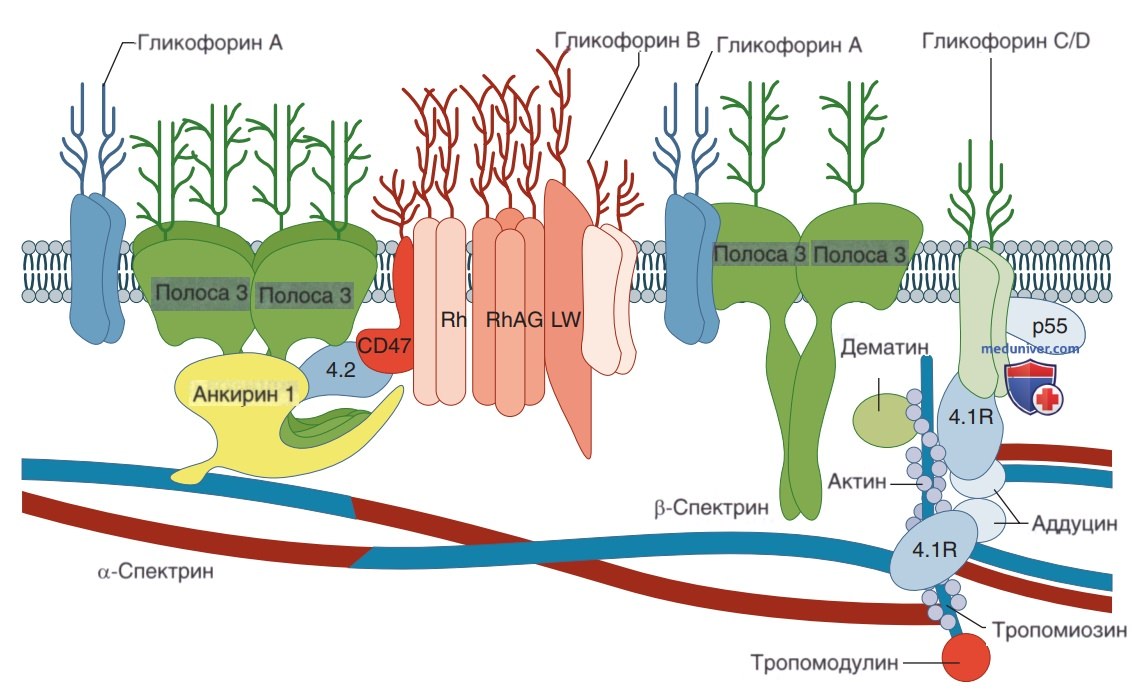
Мембрана состоит из липидного бислоя, под которым располагается кортикальный цитоскелет (рис. ниже), за счет чего обеспечивается деформируемость и стабильность эритроцита. Эти свойства необходимы для защиты клетки во время перемещения по кровотоку. За один цикл кровообращения эритроцит подвергается сильному сдвиговому напряжению в артериальной системе, резким изменениям размера и формы во время циркуляции по капиллярам с всего 7,5 мкм, а также заметным изменениям напряжения, pH и рО2.
Мембрана эритроцитов. Представлена модель основных белков мембраны эритроцитов: α- и β-спектрин, анкирин, белок полосы 3 (анионообменник), 4.1 (белок 4.1) и 4.2 (белок 4.2), актин и гликофорин
а) Липиды мембран. Липиды мембран эритроцитов асимметрично распределены по двухслойной мембране. Это отражает устойчивое состояние, включающее постоянный обмен фосфолипидов между двумя слоями. Гликолипиды и холестерин встроены между фосфолипидами в бислое (длинными осями перпендикулярно плоскости бислоя).
Гликолипиды расположены во внешней половине бислоя с углеводными фрагментами, переходящими в водную фазу. Они несут несколько важных АГн эритроцитов и выполняют другие функции. Фосфолипиды распределены в мембране асимметрично. Во внешней половине бислоя располагаются холиновые фосфолипиды, фосфатидилхолин и сфингомиелин, а во внутренней — аминофосфолипиды, фосфатидилэтаноламин и фосфатидилсерин (ФС). При талассемии, СКА и СД теряется асимметрия фосфолипидов, а ФС переходит во внешний бислой.
Это приводит к активации свертывания крови путем преобразования протромбина в тромбин и облегчает прикрепление макрофагов к эритроцитам, маркируя их для разрушения. Зрелые эритроциты не способны синтезировать жирные кислоты, фосфолипиды или холестерин. Они зависят от липидного обмена и ацилирования жирных кислот — это механизмы восстановления и обновления фосфолипидов.
б) Мембранные белки. Мембранные белки делят на интегральные и периферические. Интегральные белки проникают или пересекают липидный бислой, взаимодействуют с гидрофобным липидным ядром. Периферические белки взаимодействуют с интегральными белками или липидами на поверхности мембраны, но не проникают в ядро.
Интегральные мембранные белки включают гликофорины, Rh-белки, АГн систем Келл или Даффи, а также транспортные белки, такие как белок полосы 3 (АЕ1, анионообменник 1, SLC4A1), Na+, К+-АТФаза, Са2+-АТФаза и Mg2+-АТФаза. На интегральных мембранных белках присутствуют многочисленные мембранные рецепторы и АГн. Периферические мембранные белки расположены на поверхности цитоплазматической мембраны и включают глицеральдегид-3-фосфатдегидрогеназу и структурные белки скелета мембраны на основе спектрина-актина.
1. Интегральные мембранные белки. Белок полосы 3 — основной интегральный белок эритроцитов. Он выполняет две основные функции: транспорт ионов и поддержание межбелковых взаимодействий. Белок полосы 3 обеспечивает обмен анионов хлорида и бикарбоната и сайт связывания для гликолитических ферментов, Hb и скелетных белков (анкирин, белок 4.1 и белок 4.2).
Одна цепочка N-гликана, присоединенная к аспарагину в охватывающем мембрану домене белка полосы 3, состоит из N-ацетил-D-лактозаминовых звеньев. Они расположены неразветвленным линейным образом в эритроцитах плода (АГн i) и разветвленным способом в эритроцитах взрослых (АГн I).
Следующее наиболее распространенное семейство интегральных мембранных белков — гликофорины. Они обеспечивают большую часть отрицательного поверхностного заряда, необходимого эритроцитам, чтобы избежать прилипания друг к другу и к сосудистой стенке. Они участвуют в трансмембранной передаче сигналов и несут рецепторы для Plasmodium falciparum, ряда вирусов и бактерий и нескольких АГн группы крови.
2. Периферические мембранные белки. Основной компонент скелета мембраны — спектрин. Он состоит из двух субъединиц альфа (α) и бета (β), которые имеют аналогичную структуру, но выполняют различные функции. Спектрин обладает высокой гибкостью и принимает множество конформаций. Это необычное свойство играет важную роль в обеспечении естественной гибкости мембраны.
Основанный на спектрине скелет мембраны связан с плазматической мембраной через соединительный комплекс актина с белком 4.1, посредством взаимодействия спектрина и анкирина, а также посредством связывания мультибелкового комплекса, содержащего Rh-белки, Rh-ассоциированные гликопротеины, CD47, LW, гликофорин В и белок 4.2 с анкирином. Белок 4.1 необходим для нормальной стабильности мембраны. Он взаимодействует со спектрином, актином и другими белками мембраны эритроцитов. Анкирин — основной связующий белок.
Он обеспечивает высокоаффинное связывание спектрина с внутренней мембраной посредством взаимодействия с цитоплазматическим доменом белка полосы 3. Белок 4.2 — периферический мембранный белок. Он помогает связать скелет с липидным бислоем посредством взаимодействия с анкирином и белком полосы 3.
Нарушения мембраны эритроцитов возникают в результате изменения количества или качества (или того и другого) отдельных белков и их динамического взаимодействия друг с другом. Нарушение вертикальных межбелковых взаимодействий мембраны, то есть взаимодействие спектрина с анкирином и белком полосы 3 или взаимодействие белка полосы 3 с белком 4.2, приводит к отрыву скелета мембраны от липидного бислоя.
В результате возникает нестабильность мембраны с потерей липидов и некоторых интегральных мембранных белков. Это приводит к потере площади поверхности мембраны и фенотипу сфероцитоза. Нарушение горизонтальных взаимодействий мембранных белков скелета, включая нарушение самоассоциации спектрина или межбелковых взаимодействий комплексного соединения, приводит к нестабильности мембраны, изменению ее деформируемости и механических свойств, а также фенотипу эллиптоцитоза.
Нарушения мембраны эритроцитов возникают в результате аномальной проницаемости катионов или нарушения гидратации эритроцитов.
в) Нарушения мембраны эритроцитов. Гемолитические анемии, вызванные дефектами мембраны эритроцитов, составляют широкую группу наследственных анемий. Наиболее распространенные расстройства в этой группе включают наследственный сфероцитоз, наследственный эллиптоцитоз и наследственный пиропойкилоцитоз. Подробные клинические исследования, проведенные несколько лет назад, дополнены биохимическими и генетическими исследованиями, которые обеспечивают лучшее понимание патогенеза этих расстройств и естественные особенности мембраны эритроцитов.