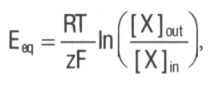Ритмичное сокращение сердца отражает строго регулируемую и тонко организованную активность многочисленных белковых комплексов. Они контролируют поток ионов через клеточные мембраны, включая каналы, транспортеры, обменники и каналы щелевых контактов.
Человеческое сердце сокращается почти 3 млрд раз в течение средней продолжительности жизни, и даже кратковременные нарушения его функции могут привести к опасным для жизни последствиям. Частота серьезных патологий ритмичности сердца исключительно низка. Но наследственные синдромы и приобретенные пороки сердца могут влиять на ритмичность работы сердца.
Эти нарушения приводят к значительной заболеваемости и смертности, включая внезапную сердечную смерть. В этой статье на сайте рассмотрены молекулярные, клеточные и органные детерминанты ритмичности работы сердца, и эти принципы связываются с фундаментальными механизмами, отвечающими за клинически важные аритмии.
а) Основные понятия. Функция сердца как высокодинамичного насоса неразрывно связана со строго регулируемой электрической активацией составляющих его кардиомиоцитов. Во время каждого сердечного цикла электрический импульс, называемый потенциалом действия, самопроизвольно генерируется относительно небольшим количеством пейсмейкерных клеток в синоатриальном узле.
Затем импульс распространяется в соседние кардиомиоциты через ряды межклеточных каналов, известных как щелевые контакты. Субпопуляции миоцитов в сердце имеют уникальные электрические свойства, которые отражают региональную специализацию. Миоциты внутри синоатриального и АВ-узлов генерируют спонтанные потенциалы действия, которые отражают их пейсмейкерную (кардиостимулирующую) функцию.
Клетки в сети Гиса-Пуркинье оптимизированы для быстрой доставки возбуждающего тока к большой массе миокарда желудочков. Потенциалы действия миоцитов желудочков приспособлены для облегчения электромеханического сопряжения, то есть для запуска высвобождения ионов кальция из саркоплазматического ретикулума и формирования перекрестных связей актина и миозина, лежащих в основе сокращения сердца.
Нарушения электрофизиологии сердца, будь то следствие менделевских мутаций, олигогенных синдромов или стрессовых факторов окружающей среды, которые вызывают приобретенное заболевание сердца, могут привести к нарушениям генерации, распространению или проведению электрических импульсов и, как следствие, к широкому разнообразию аритмических синдромов.
б) Ионная основа электрофизиологии сердца:
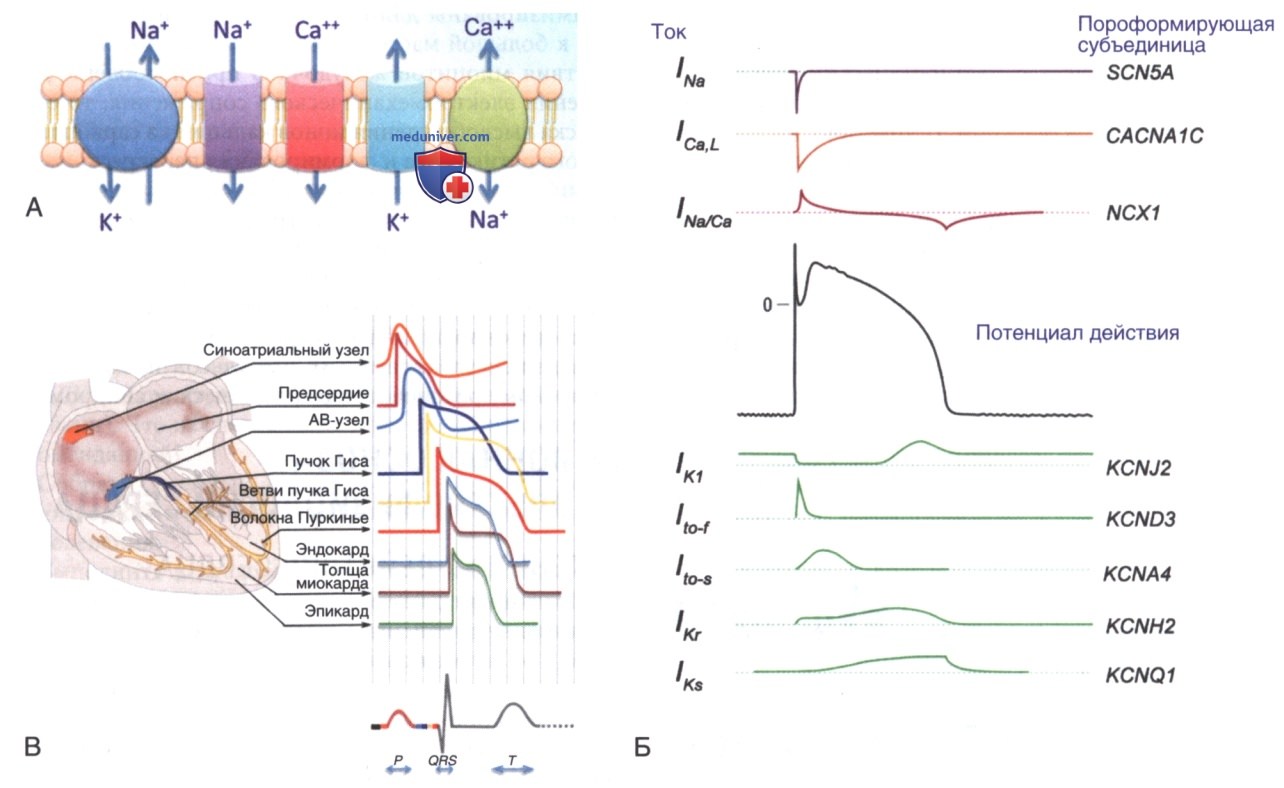
1. Потенциал действия сердца. Потенциал действия сердца (рис. 1) представляет собой кривую зависимости мембранного потенциала клетки, Vm, от времени. Во время каждого сердечного цикла ионы движутся вперед и назад через клеточную мембрану кардиомиоцитов, тем самым изменяя Vm.
Рисунок 1. Ионные каналы и потенциал действия сердца. А. Основные каналы, участвующие в возбудимости сердца и генерации потенциала действия. Входящие токи обеспечиваются Na+-каналами (фиолетовый) и Са2+-каналами (красный). Реполяризующие токи в основном обеспечивают К+-каналы (синие). Na+/K+-аденозинтрифосфатаза — энергозависимый обменник, который выкачивает Na+ из клетки в обмен на К+. Na+/K+-аденозинтрифосфатаза имеет важное значение для установления ионных градиентов покоя и потенциала покоя мембраны. B. Динамика и относительная величина ионных токов, активных во время потенциала действия сердца. Входящие токи представлены отклонениями вниз, а исходящие токи — отклонениями вверх. C. Показаны потенциалы действия из разных областей сердца и их взаимосвязь с поверхностной электрокардиографией. Ito — транзиторный исходящий калиевый ток, — входящий кальциевый ток L-типа, Ikr — быстрый компонент калиевого тока замедленного выпрямления, 1Iks — медленный компонент калиевого тока замедленного выпрямления, Ik1 — калиевый ток входящего выпрямления
Сердечный потенциал действия, который отражает совокупное изменение многочисленных отдельных ионных токов, в значительной степени определяется перемещением ионов Na+, Са2+ и К+. Эти ионы проходят через клеточную мембрану и ионоселективные поры, образованные комплексами интегральных трансмембранных белков и вспомогательных белков.
Поведение этих ионных путей строго регулируется, и на их проницаемость для специфических ионов влияют многочисленные факторы. Самые значительные из этих факторов — изменения Vm (то есть потенциал-зависимость), связывание лигандов, вторичные мессенджеры, такие как циклический АМФ, и посттрансляционная модификация. Функция канала и изменение потенциала действия динамически подстраиваются в ответ на нормальные физиологические факторы, особенно ЧСС.
Но ряд патологических стрессорных факторов влияет на активность канала, включая приобретенные синдромы, которые обусловлены гипертрофией сердца и СН, а также постоянно растущим числом врожденных заболеваний. Независимо от лежащей в основе патологии, воздействие на потенциал действия может вызвать аритмическую активность.
Потенциал действия сердца делится на фазы, каждая из которых отражает основные перемещения ионов в определенный момент. В рабочих кардиомиоцитах, таких как желудочковые или предсердные миоциты, потенциал покоя мембраны во время диастолы или фазы 4 потенциала действия определяется исходными градиентами ионов и заряда по обе стороны сарколеммы.
Эти градиенты генерируются насосами и транспортерами, самым важным из которых считается Na+, К+-АТФаза. Этот энергозависимый электро-генный насос — основная мишень уабаин-подобных соединений, таких как дигоксин. Na+, К+-АТФаза выталкивает три иона Na+ из внутриклеточного компартмента в обмен на два иона К+, тем самым создавая противоположно направленные градиенты ионов Na+ (снаружи > внутри) и ионов К+ (внутри > снаружи).
В состоянии покоя часть мембранных каналов с высокой проницаемостью для К+ открыты, но те, которые позволяют проходить другим ионам, таким как Na+ или Са2+, минимально проницаемы. Градиент концентрации способствует движению ионов калия из клетки наружу, пока образующийся в результате избыточный отрицательный заряд внутри клетки не уравновесит диффузионные силы и не установится электрохимическое равновесие. Потенциал равновесия для определенного иона рассчитывается по уравнению Нернста (формула 1).
где Еeq — потенциал равновесия, R — универсальная газовая постоянная, Т — абсолютная температура, z — валентность ионных частиц, a F — постоянная Фарадея.
Если бы клеточная мембрана была проницаемой только для ионов К+, то при измеренных концентрациях внутриклеточного и внеклеточного К+ потенциал покоя мембраны составлял бы —100 мВ. Но из-за слабой, но поддающейся измерению проницаемости для других ионных частиц, которые имеют менее отрицательные потенциалы Нернста, чем для К+, фактический мембранный потенциал покоя в типичном кардиомиоците желудочка ближе к -85 мВ.
Когда сердечная клетка деполяризуется до своего порога возбуждения, через серию строго регулируемых и зависящих от времени изменений ионной проводимости запускается потенциал действия (рис. 1). Быстрый натриевый ток активируется и очень быстро деполяризует мембрану во время фазы 0 потенциала действия. Натриевый ток инактивируется на пике деполяризации, который составляет приблизительно +40 мВ.
Увеличение Vm во время фазы 0 активирует несколько дополнительных потенциал-зависимых каналов. Транзиторный исходящий калиевый ток, или Ito, частично реполяризует клетку, создавая небольшое углубление на кривой потенциала действия, обозначаемое как фаза 1. Увеличение Vm во время фазы 0 также активирует, хотя и медленнее, входящий кальциевый ток L-типа, ICa-L.
Именно этот триггер для Са2+ отвечает за высвобождение Са2+ из саркоплазматического ретикулума и считается неотъемлемой частью процесса электромеханического сопряжения. Входящий ток Са2+ уравновешивается несколькими внешними реполяризующими токами, включая быстрый компонент калиевого тока замедленного выпрямления IKr, медленный компонент калиевого тока замедленного выпрямления IKs и электрогенный обменник Na+-Ca2+.
Это приводит к плато потенциала действия, известному как фаза 2. Когда в конце фазы 2 выходящие потоки калия увеличиваются и ток кальция уменьшается, потенциал действия переходит в фазу 3, которая считается фазой быстрой реполяризации. Калиевый ток входящего выпрямления IK1 вносит значительный вклад в эту заключительную фазу реполяризации и возвращает потенциал действия обратно к мембранному потенциалу покоя, или фазе 4, — в этот момент клетка заряжается для следующего потенциала действия.
Графики потенциала действия предсердных кардиомиоцитов и клеток системы Гиса-Пуркинье качественно аналогичны описанным ранее, но с некоторыми заметными отличиями. Эти отличия отражают различную экспрессию реполяризующих калиевых токов, укорачивающих (в случае клеток предсердия) или удлиняющих (в клетках Пуркинье) длительность потенциала действия (рис. 1).
Относительно небольшие популяции клеток в синоатриальном узле и АВ-узле экспрессируют уникальные комплементы ионных токов, которые отвечают за спонтанную деполяризацию во время фазы 4 и запуск потенциалов действия. Пейсмейкерные клетки экспрессируют значительно меньше IK1 по сравнению с желудочковыми миоцитами. Их минимальное значение Vm составляет -65 мВ, и пейсмейкерные клетки не реполяризуются в той же степени, что и рабочие желудочковые кардиомиоциты.
В пейсмейкерных клетках экспрессируется двойной ток It, который активируется гиперполяризацией и зависит от натрия. Активация If во время фазы 4 медленно деполяризует клеточную мембрану. Субсарколеммальные кальциевые каналы способствуют диастолической деполяризации посредством спонтанного, ритмичного высвобождения Са2+ из саркоплазматического ретикулума. Этот процесс связан с изменениями потенциала благодаря активности натрий-кальциевого обменного тока INCX.
Поскольку существует минимальный быстрый входящий ток INa, экспрессируемый в узловых клетках, потенциал действия, вызванный этой спонтанной деполяризацией в фазе 4, обусловлен активацией кальциевых токов, обеспечиваемых ICa,L и ICa,T Величина If и ICa и, следовательно, наклон кривой фазы 4 деполяризации, а также скорость нарастания потенциала действия в пейсмейкерных клетках увеличивается при адренергической стимуляции, которая вызывает хронотропный ответ.
Из-за значительной региональной неоднородности плотности отдельных ионных токов даже в пределах отдельных компартментов сердца, таких как миокард желудочков, не все потенциалы действия желудочков идентичны (рис. 1). Основная часть этой неоднородности обусловлена различиями в величине разных реполяризующих К+ токов. Например, хотя электротоническое сопряжение через каналы щелевого контакта смягчает эту внутреннюю неоднородность, потенциалы действия, регистрируемые в эпикардиальных, эндокардиальных клетках и клетках в толще миокарда, характеризуются существенными морфологическими различиями.
Различия наблюдаются в состоянии покоя и особенно в ответ на провокационные стимулы, например изменения ЧСС или фармакологические препараты. Морфология потенциала действия не статична — она изменяется в ответ на колебания в физиологическом состоянии. Адаптация продолжительности потенциала действия, которая отражает нормальное укорочение потенциала действия при увеличении ЧСС, обеспечивает механизм для сохранения достаточного времени при наполнении желудочков во время диастолы.
Сокращение длительности потенциала действия в этой ситуации происходит из-за чистого увеличения токов реполяризации IK и обратного INaCa. Эта адаптация частично регулируется кинетикой активации и инактивации каналов, отвечающих за эти токи, а также их модуляцией различными каскадами передачи сигналов, например регулируемыми ВНС. Но дезадаптивная регуляция ионных токов часто наблюдается при приобретенных формах заболеваний сердца. Это патологическое электрическое ремоделирование может усиливать внутренние неоднородности в электрофизиологии сердца и формировать субстрат, который способствует аритмическому поведению.
2. Распространение импульса. В здоровом сердце потенциалы действия должны не только генерироваться, но и распространяться от клетки к клетке в виде волны возбуждения по всему миокарду предсердий и желудочков. Для успешного распространения предыдущая возбужденная клетка должна иметь достаточный заряд, чтобы довести мембранный потенциал Vm следующих клеток до их порогового потенциала возбуждения.
Щелевые контакты, которые содержат группы межклеточных каналов, обеспечивают структурную основу для этого электротонического потока ионов от клетки к клетке. Чтобы распространение было успешным, отношение генерируемого и потребляемого заряда в течение цикла возбуждения (коэффициент запаса), должно быть больше 1.
В отличие от нервов, длительность потенциала действия кардиомиоцитов у человека довольно велика, порядка 200 мс. Это необходимо для того, чтобы у каждого миоцита было достаточно времени для сокращения и расслабления перед следующим сердцебиением. Импульсы, которые приходят слишком рано в сердечном цикле, не вызывают нормальные потенциалы действия. Если импульс появляется во время фазы подъема или плато (фазы от 0 до 2), у натриевых каналов не будет достаточно времени для восстановления после быстрой инактивации, и клетка характеризуется абсолютной рефрактерностью.
Если импульс появляется несколько позже, во время фазы 3 потенциала действия, требуется сверхнормальный стимул для преодоления калиевых токов, которые остаются активными в течение терминальной части потенциала действия. Это явление известно как относительная рефрактерность. Поскольку не все натриевые каналы будут восстановлены после инактивации, скорость нарастания напряжения во время фазы 0 преждевременного сокращения может быть снижена.
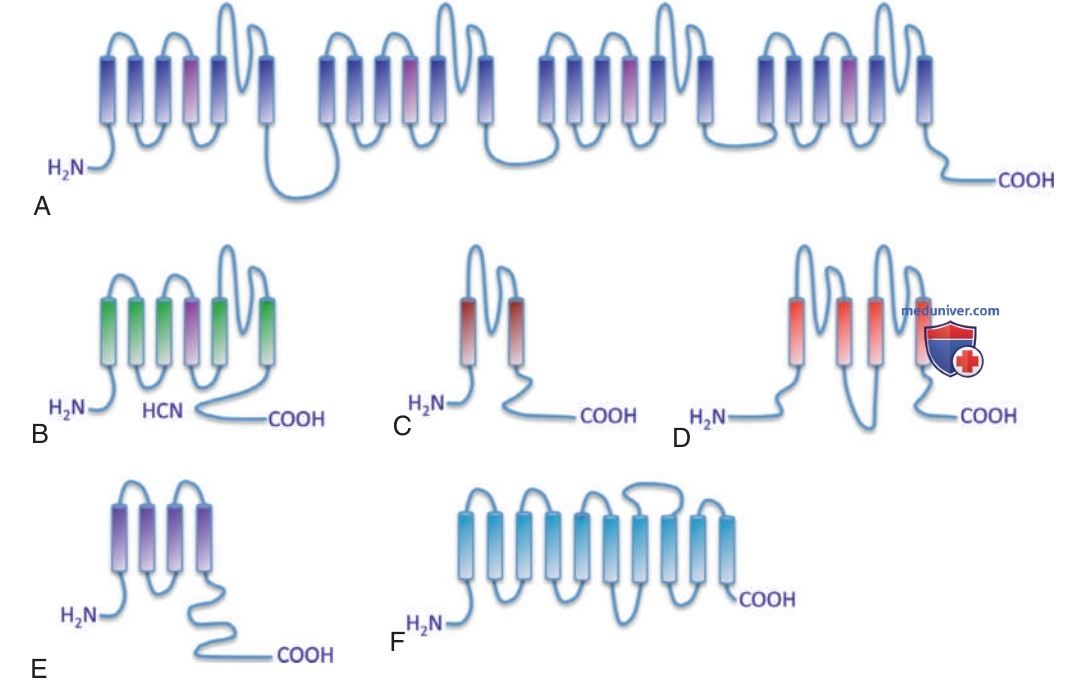
в) Молекулярная основа электрофизиологии сердца. Отдельные токи, которые отвечают за возбудимость сердца, отражают совокупную активность различных белковых комплексов, которые объединены в ионные каналы, транспортеры и обменники. На молекулярном уровне ионные каналы включают мультисубъединичные гликопротеины, например пороформирующую основную или α-субъединицу, и один или несколько вспомогательных белков (рис. 2).
Рисунок 2. Структура пороформирующих субъединиц ионных каналов, экспрессируемых в сердце. Отдельные цилиндры представляют собой трансмембранные домены. Во всех случаях амино- и карбокси-концевые домены находятся в цитоплазматическом компартменте. А. Потенциалзависимые натриевые и кальциевые каналы. B. Потенциал-зависимый калиевый канал. C. Внутренний выпрямляющий калиевый канал. D. Двухпоровый домен калиевого канала. E. Канал щелевого контакта. F. Натрий-калиевая аденозинтрифосфорная кислота
Последние влияют на ряд свойств канала, включая перенос основной субъединицы в сарколемму, а также на регулирование биофизических свойств канала, то есть на открытие и закрытие канала в ответ на различные факторы, такие как мембранный потенциал, лиганды, механические стимулы, вторичные мессенджеры или посттрансляционная модификация.
1. Натриевые каналы. Потенциал-зависимые натриевые каналы отвечают за активацию и распространение потенциала действия сердца. Приобретенные и наследственные синдромы, которые влияют на функцию потенциал-зависимых натриевых каналов в сердце, вызывают широкий спектр аритмических фенотипов. Натриевые каналы сердца активируются чрезвычайно быстро, в течение 1 мс, и начинают почти полностью инактивироваться в течение нескольких миллисекунд.
Очень небольшая доля каналов, которые остаются активными в течение нескольких сотен миллисекунд, приводит к постоянному или позднему току Na+, INaL.
Самый распространенный натриевый канал сердца содержит пороформирующую α-субъединицу, называемую Nav1.5, и несколько более мелких вспомогательных субъединиц или β-субъединиц, обозначаемых Navβ1-4. α-Субъединица представляет собой белок массой 260 кДа, состоящий из четырех гомологичных доменов, каждый из которых содержит шесть трансмембранных сегментов.
В ходе значительной экспериментальной работы выявлены ключевые области белка, которые регулируют свойства канала, включая зависимость от потенциала, активацию и инактивацию, а также участки связывания для таких фармакологических препаратов, как местные анестетики, антиаритмические препараты и нейротоксины.
β-субъединицы представляют собой отдельные трансмембранные белки, которые связываются с Nav1.5 через внеклеточные домены с характерной для Ig укладкой цепи. Они служат для увеличения доставки α-субъединицы к сарколемме и влияют на функцию канала. β-Субъединицы также влияют на внутриклеточную локализацию канала и его взаимодействие с различными адаптерами, сигнальными молекулами и белками цитоскелета. Кроме Nav1.5, несколько «нейрональных» а-субъединиц экспрессируются в сердце на низких уровнях и способствуют региональной гетерогенности в функции натриевых каналов.
Мутации в Nav1.5, в специфических β-субъединицах и в нескольких взаимодействующих регуляторных и поддерживающих белках могут влиять на натриевые токи в сердце и приводить к ряду аритмических синдромов, включая синдром удлиненного интервала Q-T 3-го типа и синдром Бругада.
Ток If способствует фазе 4 деполяризации в пейсмейкерных клетках и считается отражением активности активированных гиперполяризацией управляемых циклическими нуклеотидами или HCN-каналов (управляемые циклическими нуклеотидами гиперполяризационно-активируемые каналы). Полные каналы состоят из димеров белков HCN, каждый из которых имеет шесть трансмембранных доменов. HCN4 и HCN1 — преобладающие изоформы в узлах, a HCN2 обнаруживается во всей проводящей системе.
Связывание циклического АМФ, основного вторичного мессенджера в каскаде адренергической сигнализации, с карбоксильным концом канала сдвигает активацию в положительную сторону, тем самым увеличивая наклон фазы 4 деполяризации и обеспечивая сопряжение вегетативного тонуса с ЧСС.
2. Кальциевые каналы. Потенциал-зависимые кальциевые каналы важны для генерации потенциала действия в синоатриальном и АВ-узлах и для электромеханического сопряжения практически во всех сократительных кардиомиоцитах. Доминирующие формы, экспрессируемые в сердце, — кальциевые каналы L-типа (большие и продолжительные) и Т-типа (маленькие и транзиторные), которые содержат пороформирующие α-субъединицы, сходные по общей структуре с α-субъединицами потенциал-зависимых натриевых каналов.
Кальциевые каналы L-типа содержат субъединицу α1, нековалентно связанную вспомогательную субъединицу β (Cavβ1-4) и субъединицу α2-5 с альтернативным сплайсингом, которая посттрансляционно модифицируется посредством расщепления и образования дисульфидной связи. Преобладающая α1-субъединица в сердце — Саv1.2, а Саv1.3 локализуется главным образом в узловых и предсердных клетках. Обе α1-субъединицы характеризуются альтернативным сплайсингом с образованием вариантов, которые уникально регулируются.
Родственные кальциевые каналы Т-типа также обнаруживаются в сердце, но имеют другие биофизические свойства по сравнению с Са2+-каналами L-типа. Они активируются при более отрицательных напряжениях (70 мВ) и быстрее инактивируются. Основной изоформой, экспрессируемой в сердце, считается Саv3.1 и в меньшей степени Саv3.2. Эти каналы находятся только в узлах, клетках Пуркинье и предсердных миоцитах. В пейсмейкерных клетках кальциевые токи через каналы Т-типа способствуют фазе 4 деполяризации. Мутации в субъединицах Са2+-канала также вызывают ряд аритмических синдромов, включая синдром Тимоти и подтип синдрома Бругада.
3. Калиевые каналы. В сердце экспрессируются многочисленные классы калиевых каналов, где они способствуют реполяризации и поддержанию мембранного потенциала покоя. Гетерогенная экспрессия калиевых каналов в разных областях и типах клеток в значительной степени отвечает за наблюдаемую вариабельную морфологию потенциала действия. Как и в случае натриевых и кальциевых каналов, калиевые каналы образованы комплексом пороформирующих субъединиц вместе с различными дополнительными β-субъединицами. Но α-субъединицы калиевых каналов содержат 2-6 трансмембранных доменов, и полный канал формируется в виде димера или тетрамера в зависимости от конкретного подсемейства.
Нарушение регуляции экспрессии и функции калиевых каналов часто встречается при многих приобретенных формах заболеваний сердца. В результате потеря реполяризующих токов приводит к увеличению продолжительности потенциала действия и приобретенному синдрому удлиненного интервала Q-Т. Наследственные мутации, которые уменьшают калиевые токи, становятся причиной нескольких форм наследственного синдрома удлиненного интервала Q-T. А мутации с приобретением функции могут вызывать синдром короткого интервала Q-T.
Потенциал-зависимые калиевые каналы, или Kv-каналы, активируются при деполяризации мембраны. В сердце идентифицированы многочисленные классы Kv-каналов. α-Субъединицы представляют собой шесть трансмембранных белковых доменов. В отличие от натриевых и кальциевых каналов, функциональные калиевые каналы образуются путем сборки четырех таких субъединиц и различных β-субъединиц. Транзиторный исходящий ток состоит из двух компонентов, Ito,fast и Ito,slow.
Оба компонента быстро активируются и вносят вклад в фазу 1 потенциала действия сердца, но их кинетика восстановления отличается. Ito,fast особенно многочисленны в эпикардиальном слое желудочков, в частности в ПЖ. Считается, что такая дифференциальная экспрессия вносит вклад в патофизиологию синдромов с зубцом J, включая синдром Бругада.
Другой важный класс потенциал-зависимых калиевых каналов в сердце отвечает за калиевые токи замедленного выпрямления, в широком отношении классифицируемые как токи IK. К этим каналам относятся сверхбыстрые активирующие IKur, которые находятся только в миоцитах предсердий, и калиевые токи замедленного выпрямления, IKr и IKs, оба из которых вносят вклад в фазу 3 реполяризации потенциала действия. IKr быстро активируется и инактивируется и характеризуется сильным входящим выпрямлением. То есть ток движется легче (но не исключительно) в направлении внутрь, чем наружу, хотя физиологически значимым считается именно исходящий ток.
IKs медленно активируется и не имеет входящего выпрямления. Оба тока также характеризуются заметной региональной неоднородностью. Многочисленные кардиотропные и прочие ЛС, а также наследственные синдромы, которые уменьшают величину этих токов (в частности IKr), приводят к увеличению продолжительности потенциала действия и приобретенному или наследственному синдрому удлиненного интервала Q-T.
Второй важный класс калиевых токов в сердце — токи Kir, опосредуемые внутренними выпрямляющими калиевыми каналами. IK1 наблюдается в предсердных и в желудочковых кардиомиоцитах. Проводимость через эти каналы высока при отрицательных мембранных потенциалах, поэтому этот ток крайне важен для терминальной реполяризации (фаза 3) и для определения потенциала покоя мембраны (фаза 4). Другой внутренний выпрямляющий калиевый ток опосредуется каналами IKATP. Полные каналы содержат пороформирующую субъединицу и вспомогательные субъединицы сульфонилмочевины, которые становятся мишенями для ингибирования каналов производными сульфонилмочевины. Поскольку токи IKATP ингибируются внутриклеточным АТФ, они активируются в условиях ишемии.
Усиление исходящего тока сокращает продолжительность потенциала действия и уменьшает продолжительность систолы, тем самым уменьшая энергетические потребности. Так каналы IKATP обеспечивают связь между метаболическим состоянием и возбудимостью мембраны. Важно, что в результате сокращение продолжительности потенциала действия уменьшает рефрактерность, что может увеличить риск аритмий с механизмом re-entry. Последний важный класс внутренних выпрямляющих калиевых каналов — активируемые ацетилхолином и аденозином калиевые каналы, которые обозначаются как Kir3.1 и Kir3.4.
Эти каналы, которые особенно многочисленны в узловых и предсердных миоцитах, активируются, когда лиганды связываются с мускариновыми или пуринергическими рецепторами, сопряженными с G-белком. Эти рецепторы облегчают отсоединение субъединицы β-γ-димера G-белка Gβγ от Gα и активацию Kir каналов высвобождаемой Gβγ.
4. Каналы щелевых контактов. Каналы щелевых контактов, которые отвечают за электротоническое сопряжение миоцитов сердца, необходимы для нормального распространения импульсов по всему миокарду. Каналы образованы гексамерным комплексом мономеров коннексина, каждый из которых представляет собой тетрамерный трансмембранный белок. Коннексин 43 — преобладающая изоформа, экспрессируемая в миокарде желудочков и предсердий, а коннексин 40 также широко экспрессируется в предсердиях. В узлах экспрессируются различные количества коннексина 45 и коннексина 30.2, а ветви пучка Гиса и волокна Пуркинье экспрессируют значительные уровни коннексина 40.
Щелевые контакты в узле объединяют частоту генерации импульсов каждой узловой клеткой в одну функциональную единицу. Нарушение экспрессии и функции коннексина — процесс, известный как патологическое ремоделирование щелевого контакта, — наблюдается в миокарде предсердий и желудочков при многих приобретенных формах заболеваний сердца. Ремоделирование способствует аберрантному распространению импульса и предрасполагает к аритмиям. Герминативные или соматические мутации в генах коннексина сердца приводят к развитию аритмических синдромов, особенно с ФП.
г) Механизмы аритмогенеза. Аритмии, которые проявляются нарушениями ЧСС или ритма сердечных сокращений, представляют собой отражение патологического формирования импульса или проводимости. Поскольку кардиомиоциты находятся в сложной многоклеточной среде и электротонически связаны каналами щелевых контактов, аритмические синдромы почти всегда отражают сложное взаимодействие индивидуальных или автономных клеточных свойств в многоклеточной сети. Большинство клинически важных аритмий возникают на фоне приобретенного заболевания сердца, при котором патологическое электрическое ремоделирование в результате нарушения регуляции экспрессии или функции ионного канала сопровождает структурное ремоделирование.
Но многие аритмические синдромы, включая вызванные ЛП, обусловлены или усугубляются генетическими вариациями, включая вызывающие заболевания изменения в кодирующих областях, которые непосредственно влияют на функцию белков, регулирующих электрофизиологию сердца, а также варианты последовательности в регуляторных или других некодирующих областях генома, которые регулируют транскрипционные и посттранскрипционные изменения.
1. Нарушения формирования импульса. В здоровом сердце преобладающим водителем ритма выступает синусовый узел, который расположен в месте впадения ВПВ в правое предсердие. Вторичные водители ритма с более низкой частотой генерации импульсов находятся далее в специализированной системе проведения в АВ-узле и системе Гиса-Пуркинье. Частота разрядов пейсмейкерных клеток регулируется вегетативным тонусом. Симпатическая стимуляция увеличивает наклон фазы 4 деполяризации, а парасимпатическая стимуляция уменьшает наклон, увеличивая токи реполяризации. Подавление функции узлов осуществляется фармакологическими препаратами, такими как β-адренергические блокаторы, блокаторы кальциевых каналов, или препаратами наперстянки, а также фиброзирующими заболеваниями.
Мутации в нескольких генах, которые влияют на частоту формирования потенциала (белок натриевых каналов типа 5 α и HCN4), кальциевый ток (рецептор рианодина 2 и кальсеквестрин 2) или оба параметра (ANКВ), могут вызывать семейную дисфункцию синусового узла.
Напротив, в патологических условиях клетки миокарда вне специализированной проводящей системы могут проявлять спонтанную активность — это называется патологическим автоматизмом. Нарушение автоматизма чаще всего наблюдается при ишемии или реперфузии, когда максимальные диастолические потенциалы снижаются примерно до -60 мВ или -50 мВ. Это уровень, при котором Na+ или Са2+ способны достигать своего порога активации и запускать потенциалы действия.
2. Следовая деполяризация и триггерная активность. В процессе реполяризации сердца активен ряд внутренних и внешних токов, и небольшие изменения проводимости отдельных каналов могут заметно влиять на траекторию реполяризации. Следовая деполяризация — аномальные колебания мембранного потенциала. Следовая деполяризация происходит либо во время (ранняя следовая деполяризация), либо после (отсроченная следовая деполяризация) потенциала действия. Следовая деполяризация достаточной величины, чтобы вызвать потенциал действия, вызывает триггерную активность.
Ранняя следовая деполяризация почти всегда наблюдается при патологическом увеличении длительности потенциала действия, что обеспечивает достаточное время для повторной активации Са2+-каналов L-типа во время фазы плато потенциала действия.
Врожденные синдромы, а также брадикардия, гипокалиемия, гипомагниемия, антиаритмические препараты и многие некардиологические препараты могут увеличивать длительность интервала Q-T и способствуют ранней следовой деполяризации. И наоборот, высокая ЧСС и ЛП, которые сокращают продолжительность потенциала действия, подавляют раннюю следовую деполяризацию. Ранняя следовая деполяризация на фоне увеличения продолжительности потенциала действия часто вызывает пируэтную тахикардию (torsades de pointes, полиморфная желудочковая тахикардия), особенно при повышенной дисперсии реполяризации. Отсроченная следовая деполяризация, напротив, становится результатом внутриклеточной перегрузки Са2+.
Отсроченная следовая деполяризация часто наблюдается в условиях избытка катехоламинов, ишемии, токсических концентраций дигиталисоподобных препаратов и при некоторых врожденных синдромах, включая катехоламинергическую полиморфную желудочковую тахикардию. Чрезмерная нагрузка Са2+ активирует электрогенный обменник Na+-Ca2+, вызывая деполяризующий транзитор-ный входящий ток, ITI.
3. Нарушения проведения импульса. Во время каждого сердечного цикла импульсы должны генерироваться в пейсмейкерных клетках в синусовом узле, а волна возбуждения должна распространяться по всему предсердию, затем по специализированной системе проведения (включая АВ-узел и сеть Гиса-Пуркинье) и активировать миокард желудочка. Процессы, которые нарушают межклеточное сопряжение, например фиброз или кальциноз специализированной системы проводимости, могут уменьшать коэффициент запаса для проведения и вызывать блокады сердца различной степени. Описаны наследственные дефекты проводимости при мутациях в субъединицах натриевых каналов (белок натриевых каналов типа 5α и субъединица β-1 натриевого канала), которые влияют на фазу 0 потенциала действия.
Также возможны мутации в KCNJ2 (Kir2.1 inward-rectifier potassium channel — калиевый канал внутреннего выпрямления Kir2.1), который влияет на терминальную реполяризацию и мембранный потенциал покоя. Наследственные дефекты проводимости встречаются и при ряде пороков развития, которые затрагивают проводящую систему сердца, таких как синдром Холта-Орама, мышечная дистрофия Эмери-Дрейфуса и миотоническая дистрофия 1-го типа. Блокада проводимости также может наблюдаться при вторичном электрическом ремоделировании, которое вызвано структурным заболеванием сердца или обусловлено многими кардиоактивными препаратами.
4. Механизм Re-entry. Re-entry (рециркуляция волны возбуждения) считается самым частым механизмом клинически значимых нарушений ритма сердца, включая наджелудочковые и желудочковые аритмии. Механизм re-entry представляет собой постоянную циркуляцию волн возбуждения вокруг невозбудимого препятствия. В зависимости от количества волн re-entry в ткани (одна или несколько), их размера и пространственной стабильности на поверхностной ЭКГ может выявляться относительно организованный ритм, например трепетание предсердий или мономорфная желудочковая тахикардия, или на первый взгляд неорганизованный ритм, такой как ФП или полиморфная желудочковая тахикардия.
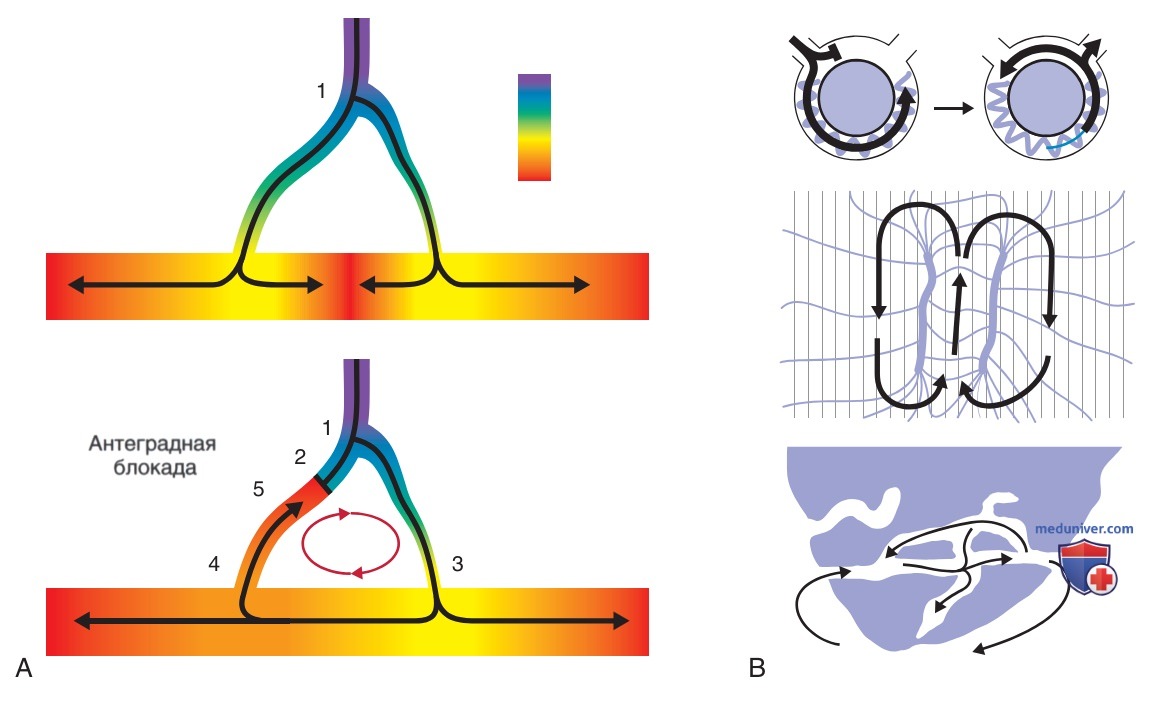
Для механизма re-entry необходимо наличие однонаправленной блокады в «быстром» проводящем пути вокруг препятствия в сочетании с рециркуляцией импульса из второго «медленного» пути в ретроградном направлении, например в месте бифуркации волокон Пуркинье в месте соединения с кардиомиоцитами желудочков или вокруг рубца после ИМ (рис. 3). Но «препятствием» также может быть жизнеспособный миокард, который оказывается невозбудимым из-за его внутренних электрофизиологических свойств, таких как клеточное разобщение или рефрактерность. Этот феномен называется функциональной блокадой.
Рисунок 3. Аритмии по механизму re-entry. A. Re-entry в месте соединения волокон Пуркинье с кардиомиоцитами желудочков. Вверху: в норме импульс распространяется вдоль волокна Пуркинье и разделяется на два пути (1), и вместе они активируют расположенный далее миокард желудочков. Внизу: импульс распространяется вдоль правого пути (3), но блокируется в левом пути (2). Первоначальный импульс распространяется внутри миокарда желудочков, повторно входит в левый путь в ретроградном направлении (4) и успешно проходит через область с блокадой (5). Продолжение распространения по этой петле (красный круг) может привести к желудочковой тахикардии по механизму re-entry. B. Механизм reentry, связанный с рубцом миокарда. Вверху: схема, показывающая одну петлю re-entry, которая запускается однонаправленной блокадой. Длина петли должна быть больше, чем самый длинный рефрактерный период в петле. В середине: «восьмерка», в которой циркулирует импульс reentry вследствие дисперсии рефрактерности во время тахикардии. Внизу: петля анатомического лабиринта, сформированная нитями жизнеспособного миокарда внутри рубца, с возможностью создания многочисленных петель re-entry
Поскольку рефрактерность критически зависит от продолжительности потенциала действия, участки миокарда с более длительным потенциалом действия могут образовывать подходящий субстрат для функционального re-entry.
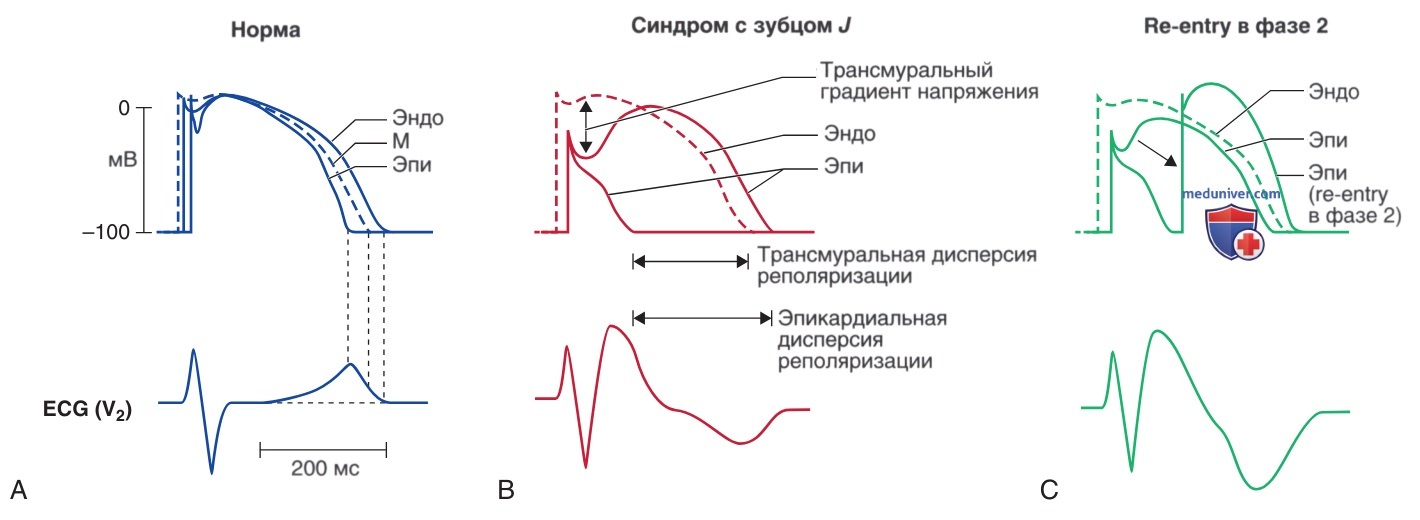
Гетерогенность продолжительности потенциала действия и сопутствующая дисперсия рефрактерности также играют критическую роль в поддержании аритмических механизмов, особенно благодаря феномену, известному как re-entry в фазе 2. Этот термин относится к токам во время фазы 2 потенциала действия от деполяризованной клетки к соседним клеткам, которые более полно реполяризованы и не рефрактерны к повторному возбуждению.
Этот принцип лучше всего охарактеризован при синдромах с зубцом J, особенно при синдроме Бругада, при котором потеря функции входящих токов (INa или ICa ) или приобретение функции исходящих токов (Ito, IK-ATP ) вызывает утрату купола потенциала действия во время фазы 2 и сокращение длительности потенциала действия в подгруппе кардиомиоцитов.
Затем ионы могут перетекать в эти клетки из соседних клеток, в которых сохраняется купол потенциала действия, вызывая локальное возбуждение, тесно сопряженную экстрасистолу и запуск механизма re-entry. При синдроме Бругада этот процесс возникает в выносящем тракте ПЖ, где плотность транзиторного исходящего тока значительно выше в эпикарде по сравнению с эндокардом (рис. 4).
Рисунок 4. Клеточная основа для синдромов с зубцом J и re-entry в фазе 2. В норме сегмент ST изоэлектрический из-за отсутствия трансмуральных градиентов напряжения на уровне плато потенциала действия. Углубление выемки в фазе I в патофизиологических условиях, таких как утрата функции INa или приобретение функции Ito, приводит к потере купола потенциала действия в некоторых эпикардиальных участках, но не во всем эпикарде, вызывая изменения ST и зубца T, характерные для синдрома Бругада. Потеря купола потенциала действия в эпикарде, но не в эндокарде, приводит к развитию выраженной трансмуральной дисперсии реполяризации и проведению купола потенциала действия от участков, в которых он сохраняется, к участкам, в которых он утрачен, вызывая локальное повторное возбуждение посредством механизма re-entry в фазе 2.
д) Резюме. Концепции электрофизиологии сердца, в том числе генерирование потенциала действия, молекулярная основа возбудимости сердца и механизмы, отвечающие за патологические сердечные ритмы, обеспечивают основу для понимания и выявления клинически значимых аритмий. Понимание биофизической основы наследственных аритмических синдромов и патологического ремоделирования, наблюдающегося при приобретенных аритмических синдромах, уже привело к разработке нескольких новых прицельных методов лечения, основанных на экспрессии, функции и регуляции ионных каналов.
Видео физиология проводящей системы сердца и механизм сокращения сердечной мышцы