Как упоминалось ранее, условие, необходимое для реентри, заключается в задержке импульса в альтернативном пути или путях, достаточной для восстановления возбудимости в участках ткани проксимальнее однонаправленной блокады.
Все нарушения ритма по типу реентри имеют главную общую особенность — волновой фронт должен встречаться с зоной локальной электрической неоднородности ткани. Эта неоднородность может быть связана с электрическими свойствами отдельного кардиомиоцита, который генерирует потенциал действия (электрическая неоднородность возбудимости или рефрактерности), пассивными свойствами, управляющими потоком ионов между кардиомиоцитами (межклеточная связь и геометрия ткани) или комбинацией этих условий.
Такие изменения могут быть постоянными (например, при ремоделировании в результате гипертрофии желудочков или ИМ) или могут быть исключительно функциональными (например, неоднородность рефрактерности в ишемизированной ткани в острый период). Кроме того, некоторые из этих изменений необходимы только для начального условия отклонения импульса, так называемой однонаправленной блокады проведения импульса. При ее развитии аритмия может развиться и в абсолютно электрически однородной ткани.
Медленное проведение импульса в цепи реентри также является важным фактором, определяющим ее размер. Уменьшение скорости проведения импульса приводит к уменьшению длины волны и уменьшению участка ткани, необходимого для поддержания реентри. Напротив, увеличение скорости удлиняет волну возбуждения, и, следовательно, для поддержания реентри требуется больший анатомический путь. Если больший путь невозможен, возникновение или поддержание тахикардии также невозможно.
В некоторых областях миокарда (например, в АВ-узле) медленное проведение является нормальным физиологическим явлением. Медленное проведение также может быть вторичным по отношению к патофизиологическим условиям (например, ИМ).
Также оно может быть вызвано функциональными особенностями, которые могут развиться в результате преждевременной стимуляции или развиваться во время быстрого переходного ритма.
Как обсуждалось в отдельной статье на сайте (просим Вас пользоваться формой поиска по сайту выше), распространение потенциала действия и скорость проведения возбуждения в миокарде определяются отношениями источник-приемник, которые отражают взаимодействие между активными свойствами мембраны кардиомиоцитов (источника, генерирующего потенциал действия) и пассивными свойствами, определяемыми геометрическими особенностями миокарда (приемника), а также сопротивлением сопряжения между источником и приемником.
Ионный ток, создаваемый источником, должен достичь приемника. На пути от источника к приемнику импульсу необходимо преодолеть внутриклеточное сопротивление (обеспечиваемое цитоплазмой) и межклеточное сопротивление (обеспечиваемое щелевыми контактами). Внеклеточное сопротивление также имеет место, но зачастую им можно пренебречь. Сопротивление сопряжения в основном определяется сопротивлением щелевых контактов. Следовательно, количество и распределение щелевых контактов, а также проводимость белков щелевых контактов (коннексинов) являются важными факторами, определяющими проведение потенциала действия.
По коэффициенту надежности проведения импульса возможно предсказать возможность распространения потенциала действия. Он определяется как отношение ионного тока, генерируемого деполяризующими ионными каналами кардиомиоцита (источника), к ионному току, поглощаемому во время цикла возбуждения отдельно взятого кардиомиоцита в сердце (приемник).
Таким образом, коэффициент надежности для распространения возбуждения пропорционален превышению ионного тока, генерируемого источником над потребностями приемника. Согласно этому определению, проведение возбуждения прекращается, когда коэффициент надежности падает менее 1, и становится стабильнее при увеличении коэффициента более 1. Эта концепция безопасности распространения возбуждения раскрывает зависимость скорости распространения возбуждения от состояния ионных каналов, межклеточного взаимодействия и геометрии ткани сердца.
По сути, локальные отношения источник-приемник лежат в основе неоднородностей электрической проводимости и создают условия для замедления проведения возбуждения, однонаправленной блокады и реентри.
а) Пониженная возбудимость мембраны. Возбудимость кардиомиоцита описывается легкостью, с которой он реагирует на стимул регенеративным потенциалом действия, и зависит от пассивных и активных свойств клеточной мембраны. К пассивным свойствам относятся сопротивление и емкость мембраны, а также межклеточное сопротивление.
Наиболее важным фактором, определяющим понижение возбудимости, является снижение проницаемости Na+-каналов. Чем более отрицательное значение мембранного потенциала, тем больше Na+-каналов способно к активации, тем больше приток Na+ в клетку во время фазы 0 и тем выше скорость проведения возбуждения. Напротив, деполяризация мембраны до уровня -60-70 мВ может инактивировать половину всех Na+-каналов, а деполяризация до -50 мВ или менее может инактивировать все Na+-каналы.
Пониженная возбудимость мембран может являться следствием многих физиологических и патофизиологических состояний. Когда стимуляция происходит во время фазы 3 (например, преждевременная стимуляция накладывается на период относительной рефрактерности), до полного восстановления и при менее отрицательных потенциалах клеточной мембраны, часть Na+-каналов все еще будет недоступной для активации (из-за их длительного восстановления после инактивации). В результате INa и фаза 0 следующего потенциала действия снижаются, а проведение преждевременного стимула замедляется, что способствует возникновению реентри.
Пониженная возбудимость мембран также может быть у кардиомиоцитов с постоянно низким уровнем потенциала покоя на фоне патологических состояний (например, острой ишемией, некоторыми процессами электрического ремоделирования), генетических мутаций, которые приводят к утрате функции Na+-каналов (например, синдром Бругада), тахикардии и лечения антиаритмическими препаратами I класса.
Потенциалы действия со сниженной скоростью подъема в результате частичной инактивации Na+-каналов называются подавленными быстрыми ответами. Эти изменения потенциала действия, вероятно, будут неодинаковыми, с разными степенями инактивации Na+-каналов. В результате формируются области с минимально сниженной скоростью, зоны со значительно подавленным ответом и области полной блокады. Кроме того, период рефрактерности в клетках со сниженным мембранным потенциалом может длиться дольше восстановления потенциала действия.
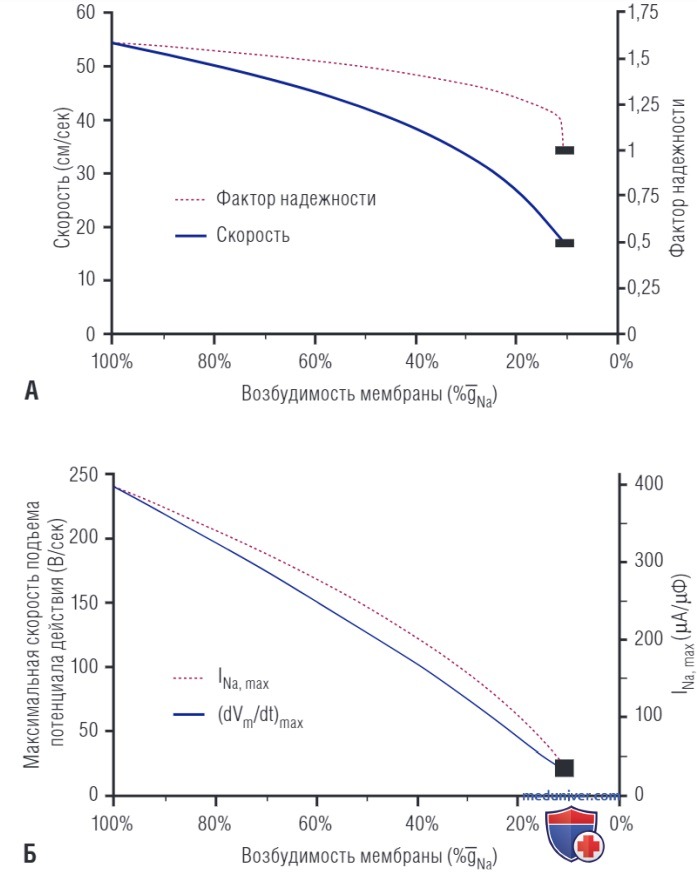
То есть клетка все еще может находиться в периоде абсолютной или относительной рефрактерности после возвращения Em к его наиболее отрицательному значению. С постепенным снижением возбудимости в источнике генерируется меньший ток Na+, а скорость проведения возбуждения и коэффициент надежности постепенно уменьшаются. Когда коэффициент надежности падает до значений менее 1, проведение возбуждения не происходит, и возникает блокада.
Таким образом, в пораженной области с частично деполяризованными волокнами могут быть некоторые участки с медленным проведением возбуждения и некоторые — с блокадой проведения возбуждения, в зависимости от уровня потенциала покоя и количества инактивированных Na+-каналов. Эта комбинация может послужить субстратом для возникновения реентри. Вероятность возникновения реентри в таких волокнах еще выше во время преждевременного возбуждения или во время ритмов с повышенной частотой, потому что еще больше замедляется проведение импульса, вплоть до развития блокады.
Примечательно, что при пониженной возбудимости мембран отсутствует вероятность очень медленного проведения импульса. Чаще всего, это приводит к резкому нарушению проводимости при относительно высокой скорости проведения импульса (рис. 1). Коэффициент надежности уменьшается очень медленно, и его значение мало подвержено изменениям при умеренных изменениях возбудимости мембран. Только когда наблюдается выраженное (около 90%) снижение доступности Na+-каналов, генерируемого деполяризующего заряда недостаточно для деполяризации мембраны до порогового уровня, и коэффициент надежности резко падает до 1 (при нелинейном — «все или ничего» — ответе клеточной мембраны и пороговом значении, характеризующем процесс возбуждения).
Рисунок 1. Компьютерное моделирование влияния постепенного снижения возбудимости мембраны на характеристики распространения импульсов. (А) Зависимость скорости проведения импульса и фактора надежности для проведения импульса от возбудимости мембраны. Зависимость скорости проведения импульса (сплошная линия) и фактора надежности проведения импульса (пунктирная линия) от доступности Na+-каналов (%gNa). И скорость, и фактор надежности постепенно уменьшаются по мере уменьшения возбудимости мембраны. Горизонтальные прямоугольники указывают на нарушение проведения импульса, которое происходит, когда фактор надежности снижается до менее 1. (Б) Зависимость максимальной скорости подъема потенциала действия и максимального входящего тока Na+ от возбудимости мембраны. lNa, max — пиковый ток Na+; (dVm/dt)max — максимальная скорость восходящего импульса в фазе нарастания потенциала действия
б) Низкое сопряжение кардиомиоцитов. Межклеточная связь поддерживается каналами щелевых контактов, которые соединяют соседние клетки и обеспечивают биохимическое и низкоомное электрическое сопряжение с пониженным сопротивлением. Хотя сопротивление щелевых контактов мембран для прохождения ионов и малых молекул и для проведения электрического импульса на несколько порядков выше, чем внутриклеточное сопротивление цитоплазмы, сопряжение клеток щелевыми контактами обеспечивает путь проведения возбуждения с сопротивлением, на несколько порядков более низким по сравнению с несопряженными клеточными мембранами.
В нормальном рабочем миокарде взрослого человека каждый кардиомиоцит электрически сопряжен в среднем с 11 соседними кардиомиоцитами, причем щелевые контакты преимущественно локализуются во вставочных дисках на концах веретеновидных клеток. Боковые (поперечные) щелевые контакты в боковых мембранах кардиомиоцитов, лишенных вставочных дисков, гораздо менее многочисленны и чаще встречаются в миокарде предсердий, чем желудочков. Это особое субклеточное распределение щелевых контактов является основным фактором, определяющим анизотропное проведение возбуждения в сердце.
Волновой фронт должен преодолеть большее количество кардиомиоцитов в поперечном направлении, чем при эквивалентном расстоянии в продольном направлении, потому что диаметр кардиомиоцита намного меньше его длины. Кроме того, при меньшем межклеточном сопряжении с помощью щелевых контактов в поперечном направлении возникают большее сопротивление и более медленное проведение возбуждения, чем в продольном.
Как в физиологических, так и в патологических условиях могут встречаться изменения межклеточного сопряжения. Физиологически межклеточное сопряжение снижено в миокарде предсердий и желудочков в поперечном направлении к главной оси волокна относительно такового в продольном направлении. Снижение межклеточного сопряжения также, вероятно, способствует медленному проведению импульсов в АВ-узле. В патологических условиях (например, при ишемии миокарда, гипертрофии желудочков, кардиомиопатии) изменение межклеточного сопряжения может возникать вследствие резких изменений средней проводимости щелевых контактов.
Эти изменения вторичны по отношению к ишемии, гипоксии, ацидозу или повышению внутриклеточного уровня Са2+. Они также могут быть вызваны изменениями в экспрессии, а также клеточном распределении щелевых контактов. Изменения в распределении и количестве щелевых контактов (ремоделирование щелевых контактов) были зарегистрированы на фоне почти всех сердечных патологий, предрасполагающих к нарушениям ритма. К ремоделированию также относят уменьшение некоторых каналов щелевых контактов в результате прерывания взаимодействия между клетками вследствие фиброза и подавления образования или доставки коннексина 43 (Сх43) ко вставочному диску.
Кроме того, щелевые контакты могут становиться более значительными вдоль боковых сторон мембран кардиомиоцитов (так называемое структурное ремоделирование).
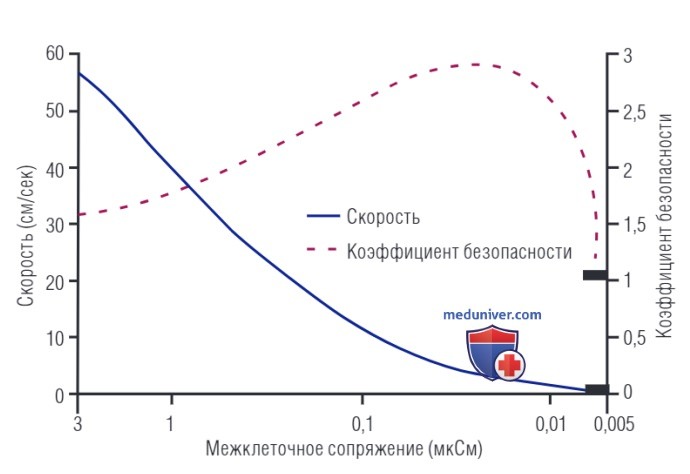
Как и при пониженной возбудимости мембраны, скорость проведения импульса постепенно снижается вслед за уменьшением межклеточного сопряжения. Однако было показано, что частичное разобщение сопряжения через щелевые контакты приводит к снижению на порядок скорости проведения возбуждения по сравнению со скоростью на фоне максимально сниженной возбудимости. Фактически очень медленное распространение возбуждения, необходимое для объяснения очень маленьких локальных цепей реентри, не может происходить только при пониженной возбудимости мембраны. Оно требует наличия либо очень низких уровней межклеточного взаимодействия, либо сильно прерывистой архитектуры миокарда.
Важно отметить, что изменения коэффициента надежности по причине межклеточного разобщения противоположны тем, которые наблюдаются при уменьшении возбудимости мембраны (рис. 2). Коэффициент надежности увеличивается до максимума при уменьшении сопряжения и выраженном снижении частоты. Электрическое сопряжение между соседними клетками — важный фактор, определяющий баланс источник-приемник. По мере того как сопряжение клеток снижается, происходит большее ограничение деполяризующего тока в деполяризующем источнике с меньшей электротонической нагрузкой и осевым потоком заряда к расположенному далее приемнику (источник с меньшей вероятностью будет подавлен поглощением распространяющегося возбуждения со стороны соседних клеток).
Рисунок 2. Компьютерное моделирование влияния постепенного уменьшения сопряжения щелевого контакта на характеристики распространения импульса. Проведение импульса при сниженном сопряжении межклеточных щелевых контактов. Скорость проведения (сплошная линия) и коэффициент безопасности (пунктирная линия) в зависимости от проводимости щелевого перехода. Скорость монотонно уменьшается по мере уменьшения связи. Напротив, коэффициент безопасности сначала «парадоксальным образом» увеличивается до максимума, а затем резко снижается до точки блокады проведения возбуждения (горизонтальная полоса при коэффициенте безопасности 1)
В результате отдельные клетки деполяризуются с высоким запасом по коэффициенту надежности, но проведение импульса осуществляется с определенными межклеточными задержками. При таком низком уровне сопряжения проведение возбуждения очень медленное, но, как это ни парадоксально, очень надежное. Благодаря высокому коэффициенту надежности в ткани может поддерживаться чрезвычайно низкая скорость проведения возбуждения при значительном снижении межклеточного сопряжения. Только при крайних значениях разобщения возникает блокада распространения импульса.
Важно отметить, что экспрессия коннексина в кардиомиоцитах чрезвычайно высока по отношению к проведению электрического импульса и требуется значительное снижение межклеточного сопряжения, чтобы значительно снизить скорость проведения возбуждения. Было показано, что снижение экспрессии Сх43 на 50% не влияет на проведение импульса в миокарде желудочков. Экспрессия Сх43 должна быть снижена на 90%, чтобы повлиять на проведение возбуждения, но даже тогда скорость проведения снижается только на 20%.
в) Структура миокарда и его геометрия. Геометрия ткани может влиять на распространение потенциала действия и скорость проведения импульса. В отличие от разобщенной клеточной последовательности, в которой соединения с высоким сопротивлением чередуются с низким цитоплазматическим сопротивлением клеток, высокая степень прерывности может быть вызвана большими сегментами ткани (состоящими из сегмента с боковыми ответвлениями), чередующимися с небольшими сегментами ткани с небольшой массой (соединительные сегменты без ответвлений).
Когда возбуждение небольшой массы клеток способствует возбуждению большей массы клеток (так называемый захват), на стыке может наблюдаться временное замедление скорости проведения. Это происходит, например, при резком переходе импульса от узкого пучка волокон миокарда к большему тканевому слою или при его распространении в область, где наблюдается резкое увеличение количества ответвлений). В таком случае может произойти замедление или блокада проведения импульса из-за несоответствия приемника по отношению к источнику. Ток, обеспечиваемый волновым фронтом возбуждения (источником тока), недостаточен для зарядки емкости и, таким образом, возбуждает гораздо больший объем последующего участка ткани (приемник тока).
В нормальном сердце резких изменений геометрических свойств недостаточно, чтобы обеспечить определенное рассогласование между приемником и источником и вызвать блокаду проведения импульса при нормальном потенциале действия, потому что коэффициент надежности для проведения импульса велик. То есть ток активации намного превышает величину, необходимую для распространения возбуждения. Однако, когда наблюдаются отклонения в потенциале действия, невозбужденная область имеет пониженную возбудимость (например, при острой ишемии) или и то и другое, причиной блокады проведения импульса могут стать анатомические препятствия.
Кроме того, фиброз, который сопровождает старение организма, болезни сердца и сердечную недостаточность, увеличивает степень и неоднородность структурных нарушений. Фиброзированный миокард демонстрирует медленное, неоднородное и выраженно анизотропное проведение возбуждения, вероятно, вторичное по отношению к низкому межклеточному сопряжению, прерывистой архитектуре ветвления и зигзагообразным цепям проведения импульса. Фиброзные нити обычно возникают между кардиомиоцитами, проходя параллельно их продольной оси и разделяя соседние, располагающиеся латерально кардиомиоциты, с пониженной скоростью поперечного проведения импульса.
Фибробласты, хотя и невозбудимые, могут не препятствовать распространению электрической активации, но со значительной задержкой. В экспериментальных исследованиях было показано, что фибробласты могут соединяться с кардиомиоцитами через щелевые контакты; однако остается неясным, имеет ли место сопряжение фибробластов и кардиомиоцитов in vivo.