Структурная анизотропия клеток миокарда важна для понимания того, как реализуется нормальное распространение возбуждения и аритмогенез. Структурная анизотропия может быть связана с формой клетки и паттерном клеточного распределения белков, участвующих в проведении импульсов, таких как коннексины щелевых контактов и мембранные ионные каналы.
Анизотропная архитектура большинства областей миокарда, состоящая из удлиненных клеток, образующих тяжи и слои ткани, лежит в основе зависимости скорости распространения от направления распространения импульса. В нормальном миокарде желудочков проведение импульса в направлении, параллельном длинной оси пучков волокон, происходит примерно в 3-5 раз быстрее, чем в поперечном направлении.
Это объясняется главным образом более низким сопротивлением миокарда в продольном направлении по сравнению с поперечным; следовательно, межклеточный ток присутствует в основном на концах клетки (хотя распространение также происходит и в поперечном направлении). Как обсуждалось ранее, щелевые контакты вставочных дисков формируют основной источник межклеточного сопротивления току между пучками волокон миокарда.
Следовательно, структура миокарда, которая определяет протяженность и распределение этих щелевых контактов, оказывает сильное влияние на осевое сопротивление и проведение возбуждения.
а) Межклеточное сопряжение: организация щелевых контактов. Анизотропные проводящие свойства миокарда желудочков зависят от геометрии сопряженных клеток, а также количества, размера и расположения каналов щелевых контактов между ними.
Кроме того, щелевые контакты различаются по своему молекулярному составу, степени экспрессии белков и паттерну их распределения. Каждое из этих изменений может вносить вклад в специфические свойства распространения возбуждения в данных участках ткани. Тканеспецифическая экспрессия коннексина и пространственное распределение щелевых контактов, а также вариации в структурном составе каналов щелевых контактов обеспечивают большую универсальность физиологических характеристик щелевых контактов и обеспечивают различие свойств проводимости в сердечной ткани.
В миокарде предсердий и желудочков активно экспрессируются три различных коннексина: Сх40, Сх43 и Сх45, названные согласно их молекулярной массе. Четвертый коннексин был выявлен в АВ-узле (Сх31.9). Каналы щелевого контакта, в структуре которых содержится Сх40, обладают наибольшей проводимостью, а с Сх45 — наименьшей.
Кардиомиоциты СА и АВ-узлов снабжены небольшими, редко расположенными, рассредоточенными щелевыми контактами, содержащими Сх45. Сх45 формирует каналы с низкой скоростью проведения возбуждения, что лежит в основе относительно слабого межклеточного взаимодействия в тканях узлов и связано с замедлением проведения импульса. Напротив, щелевые контакты миокарда предсердий состоят в основном из Сх43 и Сх40, миокарда желудочков — из Сх43, волокон Пуркинье — из Сх40.
Изменения в распределении и функции щелевых контактов в миокарде связаны с задержкой проведения импульса или его блокадой. Инактивация щелевых контактов снижает скорость проведения импульса в поперечном направлении в большей степени, чем в продольном. Это приводит к избыточному усилению анизотропии, обеспечивает субстрат для реентри активности и повышает предрасположенность к нарушениям ритма.
б) Расположение кардиомиоцитов и геометрия миокарда. Разобщения в архитектуре миокарда существуют на нескольких уровнях. Помимо разобщений, создаваемых как таковыми границами клеток, роль резистивных барьеров могут выполнять микрососуды и слои соединительной ткани, разделяющие пучки возбудимых кардиомиоцитов. Ожидается, что распространяющийся импульс будет сталкиваться с такими препятствиями и перемещаться, обходя их, где бы он ни встречал возбудимую ткань.
В некоторых областях миокарда (например, в сосочковых мышцах) соединительнотканные перегородки разделяют миокард на единичные пучки, каждый из которых состоит из 2-30 клеток, окруженных соединительнотканной оболочкой. Внутри единичного пучка кардиомиоциты плотно соединены или сопряжены друг с другом в продольном и поперечном направлениях посредством вставочных дисков, содержащих щелевые контакты, активируясь равномерно и синхронно при распространении импульса вдоль пучка. Смежные пучки также связаны друг с другом.
Они более плотно сопряжены в направлении длинной оси его клеток и пучков (из-за высокой плотности щелевых контактов внутри единичного пучка), чем в направлении, поперечном длинной оси (из-за низкой плотности соединений между пучками). Это отражается в более низком осевом сопротивлении в продольном направлении, чем в поперечном направлении, в участках миокарда, состоящих из множества единичных пучков. Кроме того, анизотропия в макроскопическом масштабе может влиять на проведение возбуждения в тех местах, где пучок сердечных волокон разветвляется или где сходятся отдельные пучки.
Заметное замедление может происходить при резком изменении направления волокна, вызывающем резкое увеличение эффективного осевого сопротивления. Блокада проведения импульса, которая иногда может быть однонаправленной, может возникать в подобных местах соединения, особенно при снижении возбудимости мембраны кардиомиоцита.
в) Однородная анизотропия по сравнению с неоднородной. Однородная анизотропия характеризуется равномерным распространением волнового фронта во всех направлениях. Измеряемая скорость проведения импульса монотонно изменяется при переходе от быстрой (в продольном направлении) к медленной (в поперечном направлении) оси, что указывает на относительно тесную связь между группами волокон во всех направлениях.
Однако это определение основано на характеристиках активации на макроскопическом уровне, где пространственное разрешение охватывает множество кардиомиоцитов и пучков, и поэтому оно описывает работу миокарда как функционального синцития.
Напротив, когда трехмерную сеть кардиомиоцитов разбивают на линейные одноклеточные цепочки, можно представить, что щелевые контакты ограничивают ток в осевом направлении и индуцируют скачкообразное проведение импульса из-за периодического увеличения сопротивления в осевом направлении в местах сопряжения щелевых контактов. То есть проведение импульса состоит из быстрого возбуждения отдельных клеток с последующей задержкой проведения импульса через щелевые контакты.
В двух- и трехмерной модели эти неоднородности исчезают из-за латерального сопряжения щелевых контактов, которое служит для усреднения незначительных локальных различий во времени активации отдельных кардиомиоцитов в волновом фронте возбуждения.
В многоклеточной ткани скачкообразное распространение импульса вновь появляется только в условиях критического разобщения щелевых контактов, которое приводит к функциональному обнаружению клеточной структуры и вызывает сверхмедленное и извилистое проведение, которое, как известно, является ключевой составляющей аритмогенеза.
Изменение характеристик анизотропии распространения в макроскопическом масштабе от однородного к неоднородному предрасполагает к нарушениям ритма по типу реентри.
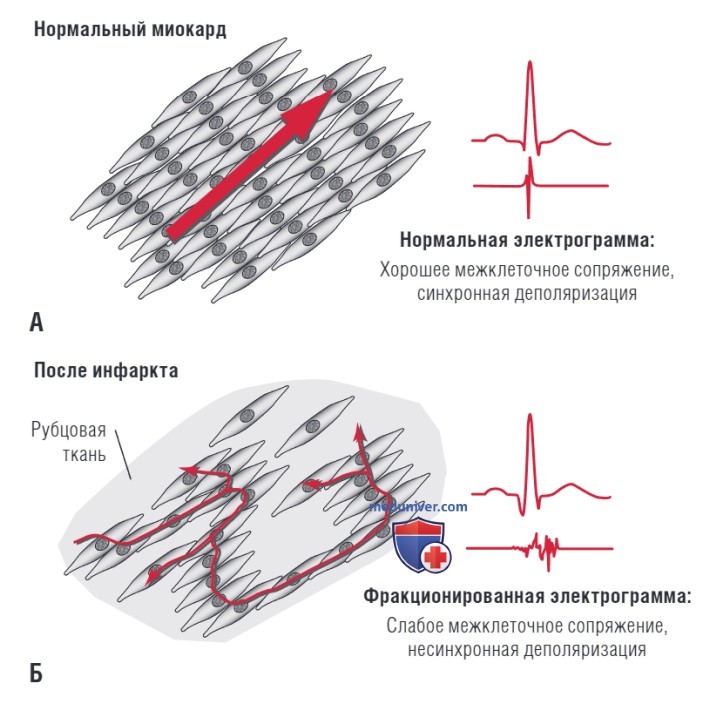
Неоднородная анизотропия характеризуется сильным электрическим сопряжением между кардиомиоцитами в продольном направлении, но отсутствием сопряжения с латеральными щелевыми контактами. Следовательно, происходит нарушение структуры поперечного проведения возбуждения, характерной для однородной анизотропии. Это приводит к нарушению последовательности или зигзагообразному проведению, что можно зарегистрировать в виде фракционированных электрограмм, характерных для неоднородной анизотропии (рис. ниже).
Влияние рубца на распространение электричества. (А) Однородный лист миокарда быстро проводит электрический волновой фронт с синхронной активацией большого количества клеток, что выражается в резком подъеме на электрограмме. (Б) Рубцевание миокарда вызывает неупорядоченное распространение, что приводит к электрограмме с низкой амплитудой и множеством фрагментированных пиков
При неоднородной анизотропии в миокарде также может происходить резкий переход скорости проведения от быстрой в продольном направлении к медленной в поперечном направлении. Исключение составляют однородная анизотропия миокарда, при которой в пределах обоих направлений возникают промежуточные скорости.
Неоднородная анизотропия может возникнуть в нормальных сердечных тканях, вторично по отношению к разделению частей мышечных пучков в поперечном направлении фиброзной тканью, которая с возрастом разрастается с образованием продольно ориентированных изолирующих пограничных участков (например, crista terminalis, межпредсердная перегородка у взрослых или сосочковая мышца желудочков).
Наличие подобных соединительнотканных перегородок приводит к формированию неоднородной анизотропии при патологических состояниях, таких как хроническая ишемия или рубцующийся ИМ, при котором возникает фиброз в миокарде (см. рис. выше).