Когда-то рак считали единственной болезнью, покрытой тайной в плане этиологии, прогноза и лечения. Теперь понятно, что рак представляет собой сборную группу из многих различных заболеваний, он зачастую не поддается единой классификации даже по тканям первичного происхождения. Гормон-рецептор-положительные опухоли МЖ отличаются по своей биологии, прогнозу и терапии от рецептор-негативных новообразований МЖ. Однако объединяющей чертой всех видов рака у человека является то, что они имеют генетическую основу. Это не означает, что все виды рака имеют наследственную предрасположенность.
Действительно, такие семейные раковые синдромы встречаются относительно реже, нежели спорадические ЗНО. Однако как при наследственных, так и при спорадических новообразованиях необходимо накопление ошибок в ДНК или изменений, которые ведут к поэтапному развитию событий, в конечном итоге приводящих к раку. Эти изменения ДНК обычно классифицируют как мутации, изменение числа копий и перестройки генов. Рак также возникает в результате эпигенетических изменений в ДНК, которые заключаются не в изменениях последовательности в ДНК, а вызывают модификации, ведущие к нарушениям выключения или активации генов.
В этой и последующих статьях на сайте будет описана генетическая основа рака, а также представлены свежие примеры того, как эти знания привели к появлению новых диагностических тестов и методов таргетной (направленной) терапии.
Рак — заболевание, которое часто рассматривается как аномальная пролиферация клеток с инвазией за пределы опухоли в нормальные тканевые структуры. Хотя это относится ко многим раковым заболеваниям, недооцененным аспектом биологии рака является тот факт, что раковые клетки не обязательно имеют аномальную пролиферацию, но могут также быть результатом недостаточной гибели клеток или задержки клеточного цикла. Сейчас предполагают, что две противодействующие силы управляют размножением и гибелью или покоящимся состоянием клеток и что необходимо поддерживать соответствующее равновесие для их нормального функционирования и роста.
Первичные стадии канцерогенеза запускаются, когда этот баланс нарушается в результате аномально повышенной пролиферации или снижения клеточной гибели, или задержки клеточного цикла.
Следовательно, гены, которые опосредуют пролиферацию и гибель клеток, часто являются ранними «драйверами» рака, и, соответственно, многие из этих генов мутированы или изменены при различных типах рака.
Исходя из этого, выделяют две широкие категории генов раковых заболеваний: «онкогены» и «гены-супрессоры опухолей». Онкогены представляют собой ускорители роста раковых клеток, управляющие аномальной пролиферацией клеток с помощью различных механизмов. Типичные онкогены, мутации которых при раке у человека наблюдаются наиболее часто, включают KRAS, BRAF, PIK3CA и ERBB2 (HER2). Онкогены выполняют разнообразные функции, однако большинство мутаций и изменений, которым они подвергаются, активируют ключевые ростстимулирующие сигнальные пути, которые затем управляют пролиферацией клеток. С другой стороны, гены-супрессоры опухолей действуют в качестве «тормозов» клеточного роста.
Их нормальная функция заключается в контроле клеточного цикла путем контроля и остановки пролиферации по мере необходимости. Любое нарушение функции гена-супрессора опухоли неизменно приводит к увеличению общего числа клеток, возможно, даже без дополнительного фактора усиленной пролиферации клеток. В качестве примеров генов-супрессоров опухолей, мутации которых при раке у человека наблюдаются наиболее часто, приводят ТР53, CDKN2A, CDKN2B и др. Для большинства видов рака характерно наличие генетических изменений генов-супрессоров опухоли и онкогенов одновременно, однако типы генетических изменений и их значимость для лечения могут сильно различаться при отдельных видах ЗНО.
а) Изменения ДНК в онкогенах и генах-супрессорах опухолей. Учитывая различные, но взаимодополняющие роли онкогенов и генов-супрессоров опухолей, нет ничего удивительного в том, что определенные типы генетических изменений чаще связаны с тем или иным классом генов. Например, активирующие мутации внутри онкогенов проявляют тенденцию к гетерозиготности (то есть когда мутирован только один аллель), так как мутация с приростом функции может оказывать влияние даже при наличии нормального белка, вырабатываемого другим аллелем «дикого» типа (рис. 1, А). Эти мутации обычно возникают в областях онкогена, которые известны как регуляторы активности соответствующего белка (например, мутации киназного домена), которые ведут к постоянной активации этого белка.
Рисунок 1. Поэтапная трансформация нормального эпителия толстой кишки в инвазивный рак. Трансформация от нормального эпителия через стадию аденомы до колоректальной карциномы происходит за счет накопления генетических и эпигенетических изменений онкогенов и генов-супрессоров опухолей, известная как Vogelgram, по имени доктора медицины Bert Vogelstein
Аналогичным образом амплификация гена, ведущая к увеличению числа копий онкогена, может оказывать сходный эффект, что и транслокации или перестройки (например, BCR-ABL), которые сопоставляют два гена так, что онкоген находится в «постоянно включенном» состоянии. Наоборот, в генах-супрессорах опухоли обычно должны происходить мутации с утратой их функции. Эти нарушения должны произойти в обоих аллелях клетки (рис. 1, В). Соответственно, мутации с утратой функции, наблюдаемые во многих генах-супрессорах опухолей, обычно приводят к преждевременному укорочению молекулы белка, например нонсенс-мутации и мутации со сдвигом рамки считывания, обусловленные вставкой/делецией нуклеотидов. Кроме того, более крупные геномные изменения, например делеции или потеря всего гена/хромосомы, представляют собой еще один механизм инактивации опухолевого супрессора.
Несмотря на наличие таких общих типов генетических изменений, выявляемых в онкогенах и генах-супрессорах опухолей, следует отметить, что существует ряд исключений. Например, ТР53 представляет собой ген-супрессор опухоли, однако наиболее частым типом его мутаций, обнаруживаемых при раке, являются миссенс-мутации, а не сдвиги рамки считывания или делеции. Это вызвано тем, что эти частые миссенс-мутации оказывают доминантный негативный эффект и предотвращают формирование тетрамеров белка р53, что приводит к утрате функции, хотя описаны и мутации ТР53 с приростом функции. Напротив, определенные делеции в гене рецептора эпидермального фактора роста (EGFR) (ERBB1) устраняют ауторегуляторные домены, что ведет к конститутивной активации этого онкогена.
В конце концов, природа и тип мутаций в онкогенах и генах-супрессорах опухолей основаны на модификации конкретных доменов белка, которые легко позволяют соответственно активировать или инактивировать ген.
б) Изменения зародышевой линии против соматических изменений ДНК при раке. Человеческое тело состоит из триллионов клеток, и каждая клетка, как правило, содержит две копии генома (диплоидные клетки). Зрелые эритроциты и тромбоциты являются одними из немногих типов клеток без ДНК, а гаметы (яйцеклетки и сперматозоиды) имеют только одну копию генома (гаплоидные клетки), что позволяет зиготе наследовать гаплоидный геном от каждого родителя. ДНК, полученную из нормальных клеток, часто называют зародышевой линией, так как она происходит из родительских яйцеклеток и сперматозоидов, которые, в свою очередь, называют зародышевыми клетками. Следовательно, по определению, ДНК зародышевой линии (иногда также называемая «конституциональная ДНК») наследуемая, так как люди получают всю свою ДНК от обоих родителей.
Из этого следует, что любые гетерозиготные мутации в ДНК зародышевой линии могут передаваться потомству с вероятностью наследования мутантного аллеля 50:50.
Большинство изменений ДНК зародышевой линии, которые приводят к синдромам семейного (наследственного) рака, являются мутациями, обнаруженными в генах-супрессорах опухоли (табл. 1). Фактически самое строгое генетическое определение супрессора опухоли — это изменение в гене, предрасполагающем к образованию опухоли. Действительно, родословные семей с наследственной предрасположенностью к раку прояснили природу генов-супрессоров опухолей, включая гипотезу «двойного удара», выдвинутую Кнудсоном, а также идентификацию ключевых генов-супрессоров опухолей, например RB1, BRCA1, BRCA2 и АРС. Поскольку для инициации рака необходима биаллельная инактивация супрессора опухоли, то можно допустить, что синдромы семейного (наследственного) рака наследуются по АуР-типу, аналогично наследственным заболеваниям, таким как кистофиброз или спинальная мышечная атрофия.
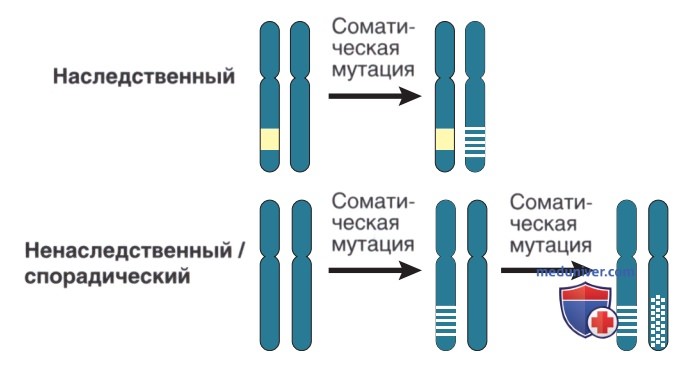
Однако считается, что большинство генов-супрессоров опухолей приводят к эмбриональной гибели при наличии в зиготе двух мутантных копий, так как такая картина редко наблюдается в семьях с известными мутациями данного гена-супрессора опухоли как по отцовской, так и по материнской линии. Вероятнее, что «второй удар» или инактивация второго аллеля происходит только в клетках, которые могут стать опухолевыми (рис. 2). Это второе событие утраты функции гена может происходить различными способами, включая потерю гена, новую мутацию или эпигенетическое выключение. Вне зависимости от механизма, так как это второе событие происходит только в единичной клетке и поэтому будет отсутствовать в гаметах, эти изменения называют соматическими. Поскольку человеческое тело состоит из триллионов клеток, то при наследовании индивидуумом одного мутантного аллеля в гене-супрессоре опухоли вероятность того, что любая отдельная клетка получит «второй удар» в течение жизни, является довольно высокой.
Рисунок 2. Двухударная модель развития рака Кнудсона. Для инициации опухоли необходима биаллельная инактивация. При синдромах семейного (наследственного) рака первое «попадание» наследуется в зародышевой линии, а для инициирования канцерогенеза необходим только один соматический второй «удар». В спорадически возникших опухолях первое «попадание» происходит в единичной клетке, и для инициирования опухоли по-прежнему необходимо, чтобы второй соматический «удар» произошел по той же клетке
Поэтому тип наследования синдромов семейного (наследственного) рака является в целом АуД. Однако, как указывалось ранее, рак — это результат накопления множества изменений в ДНК. Следовательно, даже полной утраты функции гена-супрессора опухоли обычно недостаточно для образования клеточной массы или опухоли, так как нужны дополнительные генетические события (рис. 3). Это объясняет, почему, несмотря на аутосомный характер наследования, многие синдромы семейного (наследственного) рака имеют неполную пенетрантность (то есть рак развивается не у всех носителей).
Рисунок 3. Поэтапная трансформация нормального эпителия толстой кишки в инвазивный рак. Трансформация от нормального эпителия через стадию аденомы до колоректальной карциномы происходит за счет накопления генетических и эпигенетических изменений онкогенов и генов-супрессоров опухолей, известная как Vogelgram, по имени доктора медицины Bert Vogelstein
Изменения ДНК в родоначальных клетках, предрасполагающие к образованию опухоли и рака, объясняют также и относительно более раннюю диагностику семейных форм рака по сравнению со спорадическими. В первом случае инициация рака ускоряется, так как каждая диплоидная клетка в организме имеет функциональную потерю половины копий гена-супрессора опухоли по сравнению со случаями спорадического рака, когда этот «первый удар» должен произойти в любой данной соматической клетке. На самом деле именно это наблюдение, наряду с характером наследования внутри семей и множественными независимыми опухолями, наблюдаемыми у людей с онкологическими заболеваниями, привело Кнудсона к созданию гипотезы о существовании генов-супрессоров опухолей.
С началом больших программ по секвенированию ДНК раковых клеток стала очевидной сложность онкологических заболеваний у человека. Хотя эти исследования в целом подтверждают мнение относительно того, что большинство раковых заболеваний возникает в результате поэтапного накопления соматических генных мутаций и изменений, приводящих к ранним изменениям пролиферации, предраковым опухолям, а затем — к инвазивному заболеванию, здесь есть и примечательные исключения. В настоящее время хорошо известно, что такие патогены, как вирусы, способны инициировать или предрасполагать к формированию рака. Например, ВПЧ экспрессируют в инфицированных клетках белки, инактивирующие ключевые гены-супрессоры опухоли, например р53 и RB. Это «выгодно» для вируса, так как пролиферация клеток необходима для репликации вируса, но это также создает ситуацию, сходную с возникновением мутаций генов-супрессоров опухолей.
Аналогично ракам невирусной природы данное событие инициирующее, но его недостаточно для образования опухоли, и по-прежнему необходимы дополнительные генетические события, чтобы рак действительно приобрел инвазивный характер
Результаты секвенирования ДНК также показали, что число мутаций или генетических изменений, необходимых для канцерогенеза, весьма разнообразно, и ситуация еще больше усложняется при развитии отдаленных метастазов. Тем не менее статистический анализ рака легкого и толстой кишки свидетельствует о том, что трех повреждений генов может быть достаточно. Та же группа исследователей предположила на основе геномных и эпидемиологических данных, что повышенная клеточная пролиферация может быть ассоциирована с повышенным риском развития рака, но появление мутаций и, следовательно, самого рака действительно содержит большую долю случайности или «невезения». Дальнейшие исследования, вероятно, внесут дополнительную ясность в этот вопрос в силу того, что количество видов рака, геном которых был подвергнут секвенированию, возрастает в геометрической прогрессии.
в) Генетическая нестабильность, клональная эволюция и гетерогенность опухоли. Основной процесс, который является обязательным условием для развития большинства видов рака, — это внутренняя генетическая нестабильность. При делении нормальных клеток механизмы контроля и репарации внутри клеток обеспечивают исправление любых ошибок ДНК до прохождения клеточного деления. Это обеспечивает почти идеальную точность воспроизведения и предотвращает возникновение заболеваний, связанных с соматическими изменениями ДНК, таких как рак. В раковых клетках подобные безотказные механизмы отключены, в силу чего в клетках происходит накопление мутаций ДНК, изменение числа копий генов и геномные перестройки. Однако особенно важно, что отсутствие механизмов восстановления ДНК приводит к динамическому, непрерывному процессу дарвиновской эволюции. По мере того как раковые клетки продолжают делиться, каждая последующая клетка слегка отличается от предыдущей по составу генома.
Разрушающие мутации или нарушения приводят к гибели клеток, тогда как «выгодные» изменения обеспечивают усиление клонального роста, хотя дополнительные мутации и изменения постоянно возникают даже в этой клональной популяции. Несмотря на то что некоторые редкие виды рака являются исключением из этой модели, современные исследования по секвенированию ДНК метастазов подтверждают данную точку зрения, так как многие раковые клетки одного и того же пациента несут так называемые частные мутации. Хотя некоторые из этих мутаций могут не иметь функциональных последствий, в силу чего их именуют пассажирскими мутациями, они, наряду с другими геномными изменениями, свидетельствуют о постоянной генетической нестабильности раковых образований у человека.
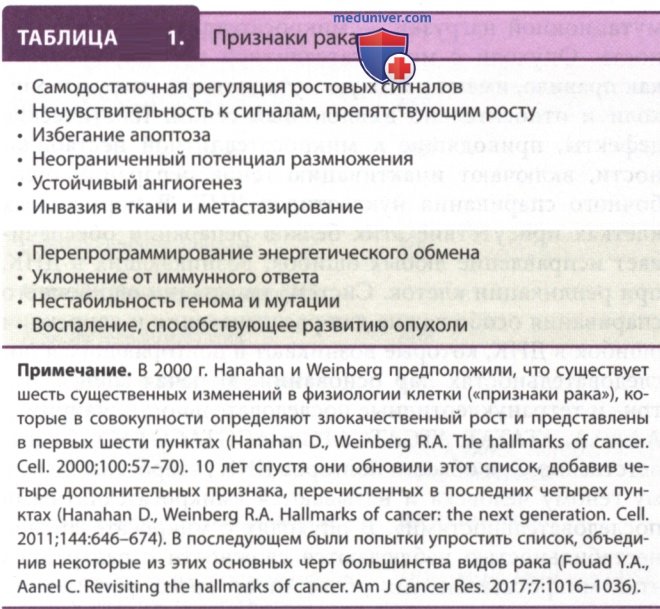
Эта продолжающаяся клональная эволюция создает основу для развития рака. Отличительные особенности рака хорошо охарактеризованы и обобщены в табл. 1. Такие признаки, как нестабильность генома, ангиогенез, ускользание от иммунной системы, избегание клеточной гибели и опухолевых супрессоров, а также устойчивая пролиферативная способность, — все они связаны с генетическими изменениями, которые прямо или косвенно возникают из-за генетической нестабильности. Выяснены некоторые механизмы генетической нестабильности, которые можно разделить на две большие категории. Частый тип генетической нестабильности раковых клеток человека — хромосомная нестабильность, которая характеризуется изменениями числа копий и перестройками генов. Поэтому в ЗНО с хромосомной нестабильностью более вероятны амплификации, делеции и анеуплоидия.
С другой стороны, генетическая нестабильность на уровне нуклеотидов также является хорошо описанным феноменом, хотя эта форма нестабильности встречается намного реже. Работы по секвенированию ДНК показали, что такие виды рака имеют тысячи мутаций в своих геномах и часто являются диплоидными или околодиплоидными, в отличие от опухолей с хромосомной нестабильностью. Это увеличение числа мутаций часто обозначают как высокую «мутационную нагрузку опухоли». Показано, что несколько генов прямо опосредуют хромосомную нестабильность, а многие гены способствуют увеличению мутационной нагрузки опухоли. Наиболее яркий пример последних — гены репарации ошибок спаривания нуклеотидов (DNA mismatch) и регуляция особой формы мутационной нагрузки — микросателлитная нестабильность. Опухоли с микросателлитной нестабильностью, как правило, имеют высокую мутационную нагрузку опухоли и относительно диплоидный геном.
Генетические дефекты, приводящие к микросателлитной нестабильности, включают инактивацию генов репарации ошибочного спаривания нуклеотидов ДНК. В нормальных клетках присутствие этих белков репарации обеспечивает исправление любых ошибок, возникающих в ДНК, при репликации клеток. Система репарации ошибочного спаривания особо важна для распознавания и коррекции ошибок в ДНК, которые возникают в повторяющихся последовательностях пар оснований, включая моно-, ди-, три- и тетрануклеотидные последовательности, например ААААА, АТАТАТ, АТСАТСАТС и ACGTACGTACGT соответственно. Эти области повторов ДНК разбросаны по всему геному человека и называются «микросателлитными последовательностями». В опухолях с микросателлитной нестабильностью наблюдаются сложности с репарацией этих микросателлитных областей во время репликации ДНК ввиду дефицита белков репарации ошибочного спаривания оснований.
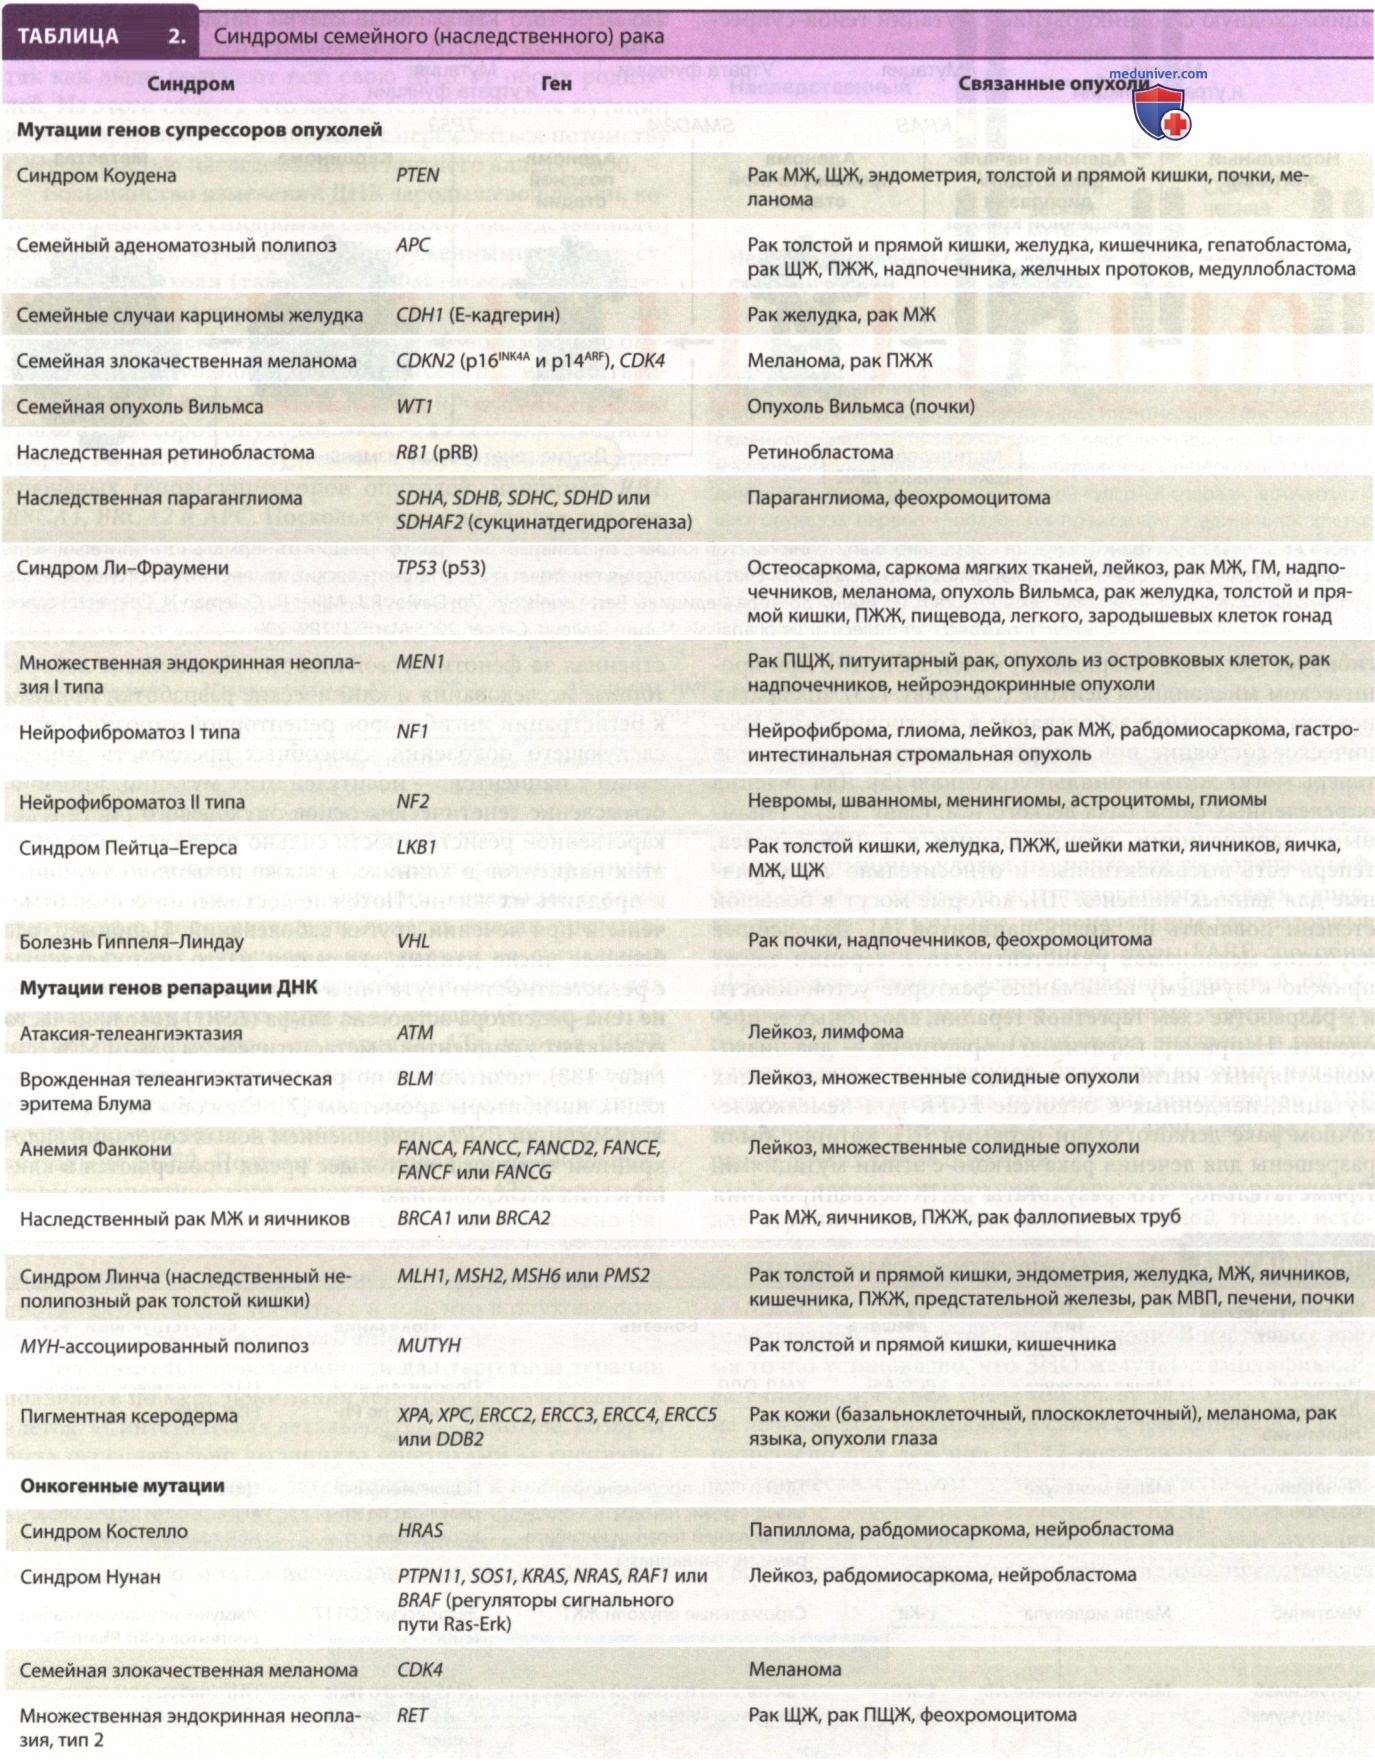
Например, в опухолях с микросателлитной нестабильностью возникают мутации генов системы репарации ошибочного спаривания оснований, нарушения и эпигенетическое отключение активности генов. Особенно в правосторонних опухолях толстой кишки часто отмечается эпигенетическое отключение белков репарации ошибочного спаривания, причем гены MLH1 и MSH2 повреждаются наиболее часто. Хотя MLH1 и MSH2 не являются супрессорами роста, они подходят под определение опухолевых супрессоров, так как мутации зародышевой линии в любом из этих генов приводят к наследственным неполипозным колоректальным ракам и другим ЗНО, таким как рак яичников и эндометрия, также известным как синдром Линча. Наследственные синдромы с повышенным риском рака обобщены в табл. 2.
Учитывая, что генетическая нестабильность способствует гетерогенности опухолей, именно это свойство рака часто обусловливает такую резистентность опухолей к лечению. Даже в случае если терапевтический агент может быть эффективным в отношении большинства раковых клеток, предсуществующие мутации и другие нарушения генов будут потом отбираться в новой доминирующей популяции. Поэтому эволюция по Дарвину, которая приводит к раку и метастазам, реализуется и при назначении пациентам различных химиотерапевтических и таргетных ЛП.