а) Определение. Термин «мегалобластная анемия» используют для определения анемии/панцитопении, возникшей в результате нарушения синтеза ДНК, а также дисбаланса созревания ядра и клеточной цитоплазмы, что приводит к остановке созревания и раннему разрушению крупных эритроцитов. Большие макроцитарные эритроциты также являются характерным признаком других нарушений, отличных от мегалобластной анемии (табл. 1).
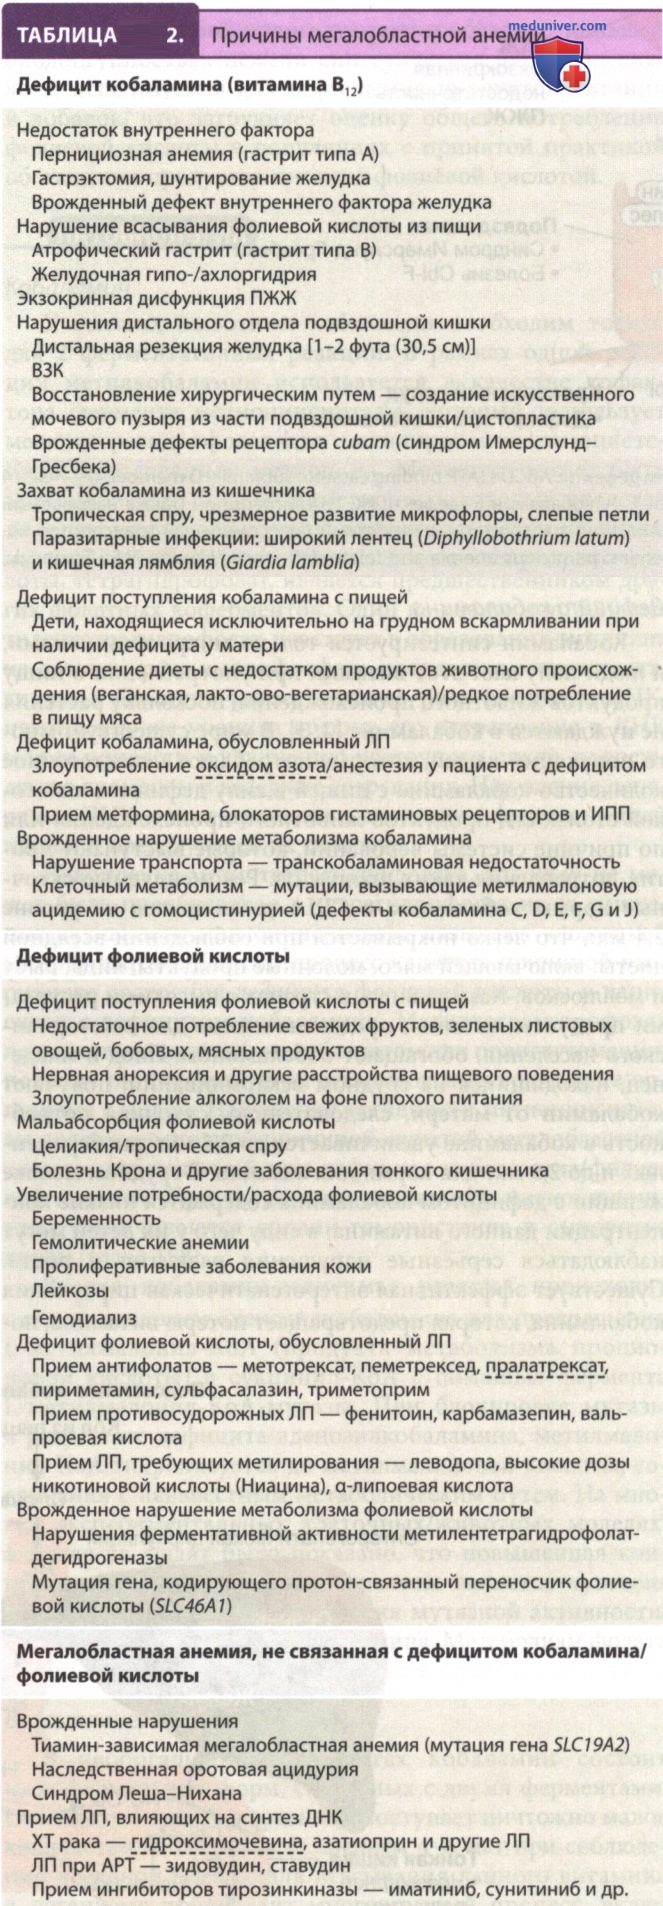
Однако на практике большинство причин возникновения макроцитарных эритроцитов совпадают с причинами развития мегалобластных анемий тяжелой степени тяжести. Наиболее частыми причинами развития мегалобластной анемии тяжелой степени являются дефицит кобаламина (витамина В12) и фолиевой кислоты — двух витаминов, обладающих взаимосвязанными ролями в рамках синтеза тимидина и пуринов для синтеза ДНК (табл. 2).
РФ. В12-дефицитная анемия (мегалобластная анемия, пернициозная анемия, болезнь Аддисона-Бирмера) характеризуется прогрессирующей гиперхромной, макроцитарной анемией, гиперсегментацией ядер нейтрофилов, мегалобластным эритропоэзом и морфологическими аномалиями других ростков кроветворения в костном мозге; в отличие от других анемий, В12-дефицитная анемия часто ассоциируется с развитием патологических психоневрологических симптомов (фуникулярный миелоз)*.
P.S. * КР «Витамин В12-дефицитная анемия». Национальное гематологическое общество, Национальное общество детских гематологов, онкологов. Одобрены МЗ РФ, 2021.
б) Эпидемиология:
1. Дефицит кобаламина. Кобаламин синтезируется только микроорганизмами, и люди получают этот витамин при употреблении в пищу продуктов животного происхождения, поскольку растения не нуждаются в кобаламине. В мире существует много популяций людей, которые потребляют недостаточное количество кобаламина с пищей в силу дефицита и высокой стоимости продуктов животного происхождения или по причине системы верований, которые выступают против потребления таких продуктов. Рекомендуемые суточные нормы кобаламина в США установлены на уровне 2,4 мкг, что легко покрывается при соблюдении всеядной диеты, включающей мясо, молочные продукты, яйца, рыбу и моллюсков.
Как правило, в странах с высокими ресурсами продукты питания, предназначенные для вегетарианского населения, обогащают кобаламином. Плод и младенец, находящийся на грудном вскармливании, получают кобаламин от матери, следовательно, суточная потребность в кобаламине увеличивается до 2,6 мкг для беременных и до 2,8 мкг для кормящих женщин. В грудном молоке женщин с дефицитом кобаламина содержатся низкие концентрации данного витамина, в силу чего у их детей могут наблюдаться серьезные нарушения развития и роста.
Существует эффективная энтерогепатическая циркуляция кобаламина, которая предотвращает потерю витамина, поэтому в случае наличия дефицита или соблюдения диеты с низким содержанием кобаламина потребуются годы, чтобы возник дефицит кобаламина при нормальном функционировании ЖКТ.
Кобаламин представляет собой микрокомпонент белков, содержащихся в продуктах питания, входящих в рацион человека, и большинство причин его серьезного дефицита обусловлены неспособностью организма усваивать данный витамин. Пернициозная анемия, одна из возможных причин дефицита кобаламина, представляет собой недостаток секреции внутреннего фактора желудка вследствие аутоиммунного заболевания слизистой оболочки желудка. Без своевременного лечения данное нарушение приводит к опасной для жизни анемии, панцитопении и миелоневропатии.
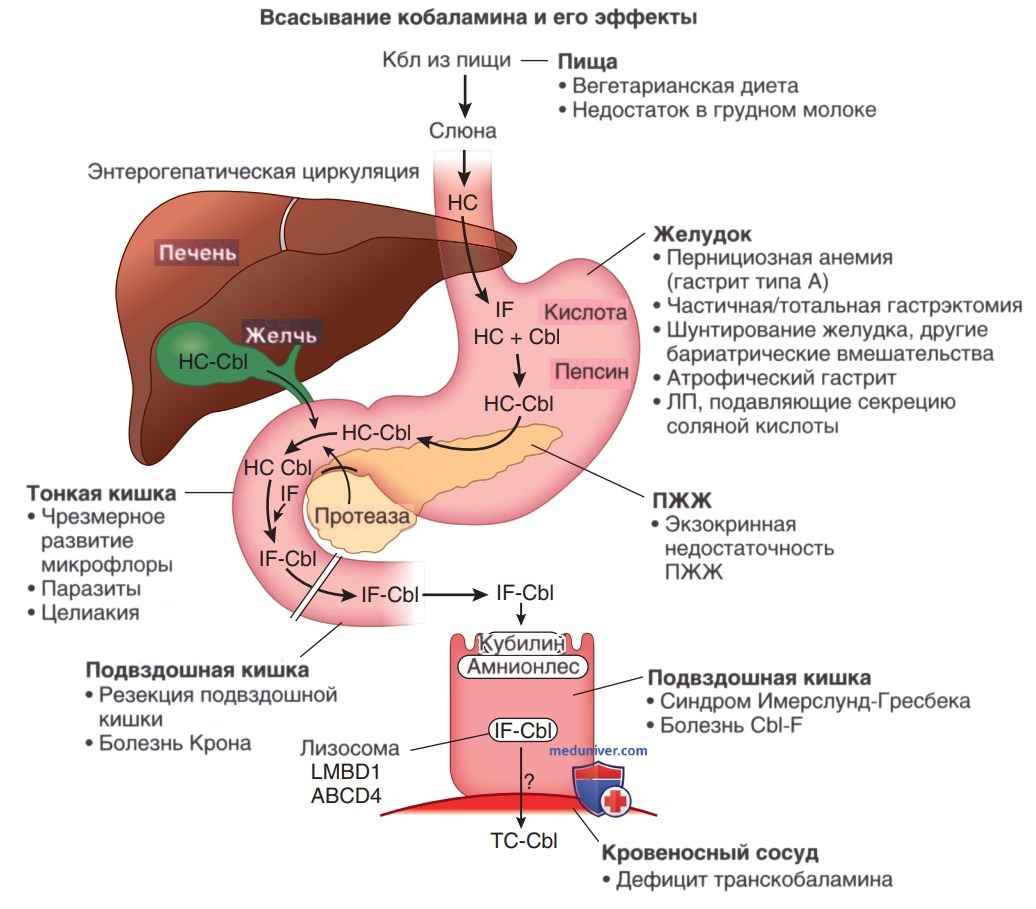
Причиной дефицита кобаламина может также являться хирургическое вмешательство, заболевание желудка, ПЖЖ и подвздошной кишки. Нормальные процессы всасывания кобаламина продемонстрированы на рис. ниже.
Нормальные процессы всасывания кобаламина и связанные с ним дефекты. ABCD4 (ATP binding cassette subfamily D member 4) — член 4 подсемейства А АТФ-связывающей кассеты (дефект); СЫ — кобаламин; Cbl-F — кобаламин F (дефект); НС — гаптокоррин (также называемый R-белок/R-фактор); IF — внутренний фактор; LMBD1 (probable lysosomal cobalamin transporter) — вероятный лизосомальный транспортер кобаламина (дефект); ТС — транскобаламин
Ежегодная заболеваемость пернициозной анемией в зависимости от ДК составляет 1-50:100 000 населения. Распространенность пернициозной анемии, опять же в зависимости от ДК, достигает 50-4000:100 000 населения. Распространенность пернициозной анемии увеличивается с возрастом. Наибольшая распространенность взрослой формы пернициозной анемии зафиксирована у лиц африканского/европейского происхождения, в то время как среди жителей Восточной Азии наблюдается более низкая заболеваемость и распространенность данного заболевания.
Атрофический гастрит легкой степени тяжести с мальабсорбцией кобаламина из пищевых белков встречается у 20% пожилых людей, особенно среди представителей белой европеоидной расы. Недостаточное потребление кобаламина с пищей зависит от популяции, но может варьировать в диапазоне 30-50% в районах Южной Америки, Африки и Индии.
2. Дефицит фолиевой кислоты. В отличие от кобаламина, фолиевая кислота в изобилии содержится в продуктах растительного происхождения, молочных продуктах и субпродуктах. В ходе приготовления продуктов часть фолатов разрушается, особенно если воду, которую использовали для приготовления, утилизируют и не включают в блюдо. Дефицит фолиевой кислоты может наблюдаться в популяциях с ограниченным доступом или с отвращением к овощам, бобовым и фруктам.
Алкоголь и некоторые ЛП препятствуют всасыванию фолиевой кислоты или способствуют увеличению ее выведения из организма и являются основными причинами клинических проявлений дефицита фолиевой кислоты.
Всасывание фолиевой кислоты происходит преимущественно в верхней части тонкого кишечника. Таким образом, такие заболевания, как целиакия, тропическая спру, чрезмерное размножение микрофлоры и ВЗК, осложняются клиническим дефицитом фолиевой кислоты. В последние 20 лет во многих странах, в том числе США, Канаде, Чили, Коста-Рике и Южной Африке, зерновые продукты обогащают фолиевой кислотой. Данная практика позволила практически устранить дефицит фолиевой кислоты, за исключением лиц с нарушенной абсорбцией/злоупотреблением алкоголем.
В странах, в которых отсутствует практика обогащения продуктов питания фолиевой кислотой, может наблюдаться ее значительный дефицит в зависимости от привычного рациона питания, который в странах с ограниченными ресурсами обеспечивает <50% рекомендуемого уровня фолиевой кислоты.
Рекомендуемая суточная норма фолиевой кислоты в США составляет 400 мкг для взрослых мужчин и небеременных женщин. Суточная норма увеличивается до 600 мкг для беременных и до 500 мкг для кормящих женщин. Фолаты, содержащиеся в продуктах питания, представляют собой полиглутаматы и обладают меньшей биодоступностью, нежели синтетическая фолиевая кислота, используемая для обогащения продуктов питания и добавок, что затрудняет оценку общего потребления фолиевой кислоты в популяциях с принятой практикой обогащения продуктов питания фолиевой кислотой.
в) Патофизиология:
1. Кобаламин. У высших животных кобаламин необходим только для 2 ферментативных реакций. В рамках одной реакции метилкобаламин используется в качестве кофактора фермента метионинсинтазы, который использует метилтетрагидрофолат для метилирования гомоцистеина с образованием метионина. Метионин может быть активирован до S-аденозилметионина, который является донором метильной группы для многих реакций, включая важный синтез креатина, липидов, нейротрансмиттеров, метилирования ДНК и многих других соединений. Деметилированный производный продукт фолиевой кислоты, тетрагидрофолат, является предшественником других фолатных коферментов.
Один из коэнзимов, 5,10-метилентетрагидрофолат, участвует в образовании тимидина из дезоксиуридинмонофосфата посредством тимидилат-синтазы.
Тимидин играет важную роль в синтезе ДНК, накопление же урацила вредно: его встраивание в ДНК может привести к удлинению клеточного цикла, повреждению хромосом и задержке созревания. Нарушения репарации ДНК может привести к апоптозу с фрагментацией клеток и последующей их гибелью.
Накопление метилтетрагидрофолата, который не может быть преобразован в тетрагидрофолат из-за снижения активности метионинсинтазы, называют «ловушкой метилфолатов». Данный процесс является причиной вторичного состояния дефицита фолиевой кислоты у пациентов с дефицитом кобаламина. Метилтетрагидрофолат не является надлежащим субстратом для полиглутамации, поэтому он диффундирует из клеток и выводится из организма с мочой. Нарушение активности метионинсинтазы является основной причиной скрытой мегалобластной анемии, наблюдаемой при дефиците кобаламина/фолиевой кислоты.
При ухудшении активности метионинсинтазы увеличиваются уровни гомоцистеина в сыворотке крови.
Вторая кобаламин-зависимая реакция происходит с использованием аденозилкобаламина для превращения L-метилмалонил-КоА (продукта метаболизма пропионовой кислоты) в сукцинил-КоА с помощью фермента L-метилмалонил-КоА-мутазы. При блокировке мутазы в результате дефицита аденозилкобаламина, метилмалонил-КоА гидролизуется до метилмалоновой кислоты, соединения с неизвестным метаболическим путем. На многих экспериментальных клеточных/животных моделях, а также на людях было показано, что повышенная концентрация метилмалоновой кислоты является чувствительным индикатором нарушения мутазной активности, следовательно, дефицита кобаламина. Метаболизм фолата в этом пути не происходит.
1.1 Всасывание кобаламина. В необогащенных продуктах кобаламин состоит из коферментных форм, связанных с двумя ферментами. Поскольку с пищей в организм поступает ничтожно малое количество кобаламина (в среднем 4-6 мкг при соблюдении всеядной диеты), для всасывания данного витамина в организме происходит многоэтапный процесс, включающий связывание белков и рецепторов. Нормальные процессы всасывания продемонстрированы на рис. выше и подробно описаны в различных литературных источниках. Пища смешивается со слюной и переваривается в желудке, под действием пепсина и кислоты желудочного сока осуществляется высвобождение кобаламина из связанного с пищевыми белками состояния, что позволяет ему связываться с гаптокоррином (другое название — R-белок/R-фактор) — гликопротеином, присутствующим в слюне.
Комплекс гаптокоррин-кобаламин перемещается в ДПК, где к нему присоединяется гаптокоррин-кобаламин, рециркулированный из желчи. Протеазы ПЖЖ в присутствии бикарбоната переваривают высвобождающий из гаптокоррина кобаламин, который связывается с внутренним фактором, секретируемым париетальными клетками желудка. Связывание с внутренним фактором является специфичным процессом для истинного кобаламина. По этой причине внутренний фактор не связывается с аналогами кобаламина, широко распространенными в окружающей среде. Комплекс внутренний фактор — кобаламин перемещается в дистальный отдел подвздошной кишки, где он связывается с рецептором cubam (комплекс кубулина и амнионлеса). Комплекс внутренний фактор — кобаламин усваивается в лизосомах, и для его экспорта в цитоплазму необходимы 2 специфических экспортера (продукты генов LMBD1 и ABCD4).
В итоге кобаламин связывается с транскобаламином, который является физиологическим белком доставки. Специфический рецептор транскобаламина (CD320) облегчает клеточное поглощение, при котором транскобаламин разлагается лизосомами, а кобаламин становится доступным для внутриклеточных процессов. Существует много внутриклеточных транспортеров и ферментов, ответственных за возможное появление коферментных форм метилко-баламина на метионинсинтазе и аденозилкобаламина на L-метилмалонил-КоА-мутазе. Изучение врожденных дефектов этих ферментов (обозначаемых как кобаламин A-J) позволило понять большую часть этого сложного процесса метаболизма. Некоторые из этих расстройств представлены в табл. 2.
1.2 Транспортировка кобаламина. В крови около 80% общего кобаламина связано с гаптокоррином и только 10-20% — с транспортным белком транскобаламином. Известно, что транскобаламин является наиболее важным транспортером, поскольку его врожденные нарушения приводят к детской мегалобластной анемии и тяжелым формам инвалидности. Напротив, дефицит гаптокоррина достаточно распространенное явление и не приводит к развитию заболеваний. Гаптокоррин связывается с аналогами кобаламина (которые в изобилии присутствуют в толстой кишке человека, продуктах питания и окружающей среде) и могут играть важную роль в секвестрации аналогов для облегчения их выведения.
Гаптокоррин присутствует в гранулоцитах. Гаптокоррин-кобаламин поглощается рецепторами асиалогликопротеина в печени, что может способствовать удалению его аналогов путем секреции в желчь. Существуют проблемы при интерпретации общего уровня кобаламина, поскольку связанный с транскобаламином кобаламин является лишь малой частью его общего циркулирующего в организме количества, что описано в отдельной статье на сайте - просим Вас пользоваться формой поиска по сайту выше.
1.3 Дефицит кобаламина в результате мальабсорбции:
1) Пернициозная анемия. За много десятилетий до обнаружения кобаламина была выявлена пернициозная анемия вследствие ахлоргидрии, не реагирующей на введение гистамина, которая наблюдалась у некоторых пациентов с фатальной прогрессирующей макроцитарной панцитопенией. Название данного заболевания может ввести в заблуждение, поскольку оно связано с желудком, у многих пациентов может даже не быть анемии. Пернициозная анемия обусловлена хроническим воспалительным процессом слизистой оболочки дна и тела желудка, в котором имеют место воспалительные инфильтраты и иммунный ответ на Н+/ К+-АТФазу желудка в париетальных клетках.
При атрофии слизистой оболочки желудка наблюдается потеря париетальных клеток желудка, которые осуществляют производство внутреннего фактора в дополнение к желудочному соку. Этот тип гастрита А развивается в течение многих лет и первоначально может способствовать развитию ЖДА, прежде чем поражение станет достаточно тяжелым, чтобы привести к потере внутреннего фактора.
Помимо прочего, могут продуцироваться АТл к внутреннему фактору, которые также способны блокировать абсорбцию кобаламина. При наличии пернициозной анемии происходит утилизация секретированного в желчь кобаламина, поскольку в ДПК отсутствует внутренний фактор, связывающий кобаламин. Таким образом, вместо обычной нормальной суточной потери кобаламина на уровне около 1 мкг она может достигать 5-9 мкг, что значительно сокращает время до развития дефицита.
Еще одной причиной развития хронического гастрита является бактерия Helicobacter pylori, хотя она в основном поражает антральный отдел желудка (гастрит типа В). До сих пор не установлено, играет ли Н. pylori роль в развитии пернициозной анемии и дефицита кобаламина.
Пернициозная анемия обнаруживается при других аутоиммунных нарушениях, таких как эндокринопатии (например, заболевание ЩЖ), СД-1 и витилиго. У родственников пациентов с пернициозной анемией может присутствовать полный спектр аутоиммунных заболеваний. Отмечается особенно сильная взаимосвязь между болезнью Грейвса (диффузный токсический зоб) и пернициозной анемией: у 1/4 пациентов присутствуют оба заболевания. Важно, чтобы у женщин с аутоиммунным заболеванием ЩЖ был достаточный уровень кобаламина до беременности и в течение всего периода лактации.
2) Мальабсорбция кобаламина, связанного с пищевыми белками. У пожилых людей (чаще всего у лиц европейского происхождения) развиваются менее тяжелые формы желудочной атрофии, при которых потеря пепсина и кислоты желудочного сока препятствует полному высвобождению кобаламина, связанного с пищевыми белками. ЛП, понижающие кислотность желудочного сока, также могут нарушать всасывание кобаламина, связанного с пищевыми белками. Трудно понять, каков реальный риск приема таких ЛП, поскольку их часто назначают популяции пациентов пожилого возраста, для которой характерно развитие возрастной атрофии желудка. Выявить атрофию желудка у пациента можно на основании сывороточных маркеров.
3) Мальабсорбция кобаламина вследствие хирургического вмешательства. Тотальная гастрэктомия неизменно приводит к сильному дефициту кобаламина из-за потери внутреннего фактора через 1-5 лет в зависимости от исходного уровня запасов кобаламина. Бариатрические хирургические вмешательства, такие как шунтирование желудка по Ру и рукавная гастропластика, приводят к тому, что поток кобаламина из пищи отдаляется от клеток, секретирующих внутренний фактор, в силу формирования обходного пути желудка. Рецептор cubam локализован в дистальной части [1-2 фута (30,5 см)] подвздошной кишки, поэтому при ее поражении (в результате ВЗК или использования в целях хирургического создания искусственного мочевого пузыря/цистопластики) возникает дефицит кобаламина.
4) Другие причины мальабсорбции. Экзокринная недостаточность ПЖЖ может привести к нарушению усвоения гаптокоррина и высвобождению кобаламина для связывания с внутренним фактором. Установлено, что чрезмерное развитие микрофлоры, наблюдаемое при тропической спру, вызывает дефицит кобаламина и фолиевой кислоты. Заражение широким лентецом пресноводных рыб (Diphyllobothrium latum) является редкой причиной захвата кобаламина в ДПК. Кишечная лямблия (Giardia lamblia) является более распространенной протозойной кишечной инфекцией, которая может вызывать снижение абсорбции кобаламина.
5) Врожденная мальабсорбция кобаламина. Аномалия внутреннего фактора желудка проявляется в виде мегалобластной анемии в младенчестве/детстве, в зависимости от исходного уровня кобаламина на момент рождения. Более распространенные нарушения включают мутации в рецепторе cubam, выявленные в белках кубулин/амнионлес. Первоначально данное нарушение выявили в Скандинавии и дали ему название болезни Имерслунд-Гресбека. Однако куда большая распространенность данного заболевания наблюдается на Ближнем Востоке. Неизвестно, являются ли гетерозиготные носители этих мутаций более предрасположенными к дефициту кобаламина, связанного с питанием/атрофическим гастритом.
6) Дефицит кобаламина из-за приема лекарственных средств. В рамках многих исследований сообщается о влиянии метформина на уровень кобаламина. Данный ЛП однозначно способствует снижению уровней кобаламина в сыворотке крови и может способствовать развитию нарушения всасывания кобаламина в подвздошной кишке, однако неизвестно, способен ли его прием способствовать развитию манифестной мегалобластной анемии. Динитрогена оксид (Азота закись) (анестетик) может в определенной степени являться причиной дефицита кобаламина, который обычно проявляется в виде миелоневропатии. Данный газ инактивирует метионинсинтазу и увеличивает выведение кобаламина, поэтому его повторное использование может стать причиной серьезного дефицита кобаламина в организме.
Длительное непрерывное использование может через ~10 дней привести к аплазии костного мозга.
В группу риска входят лица, работающие в стоматологических и медицинских кабинетах, где используется динитрогена оксид (Азота закись), или люди, которые часто применяют диспенсеры для взбитых сливок, содержащие динитрогена оксид (Азота закись). Кроме того, сообщается о подострых неврологических расстройствах, вызванных с дефицитом кобаламина, которые возникают у пациентов с нераспознанной пернициозной анемией после однократной анестезии динитрогена оксидом (Азота закисью). Симптомы данных расстройств могут проявляться через несколько дней/недель. Часто неврологические расстройства трудно поддаются корректировке, несмотря на надлежащий прием дополнительного кобаламина.
2. Фолиевая кислота:
2.1 Метаболизм фолиевой кислоты. Роль метилтетрагидрофолата как кофактора для метионинсинтазы описана ранее. Тем не менее существуют другие фолатные коферменты, которые функционируют в качестве кофакторов для многих ферментов, участвующих в метаболизме аминокислот, синтезе пурина, реакциях метилирования, одноуглеродном метаболизме и регуляторных функциях. Ингибирование этих реакций в результате дефицита фолиевой кислоты может вызвать снижение роста и пролиферации клеток, что является ключевым механизмом действия антифолатов, назначаемых в рамках ХТ рака.
Одна клеточная форма, 5,10-ме-тилентетрагидрофолат, находится в точке разветвления и используется тимидилатсинтазой для получения тимидина, необходимого для синтеза ДНК или необратимо восстанавливается 5,10-метилентетрагидрофолатредукта-зой до метилтетрагидрофолата. Как уже отмечалось ранее, прежде чем использовать фолиевую кислоту в других реакциях, необходимо, чтобы метилтетрагидрофолат был преобразован кобаламин-зависимой метионинсинтазой. Распространенный полиморфизм метилентетрагидрофолатредуктазы (С677Т), известный как термолабильная мутация, в некоторой степени снижает эффективность фермента и приводит к повышению уровней гомоцистеина и снижению уровней фолиевой кислоты при низком потреблении последней. Распространенность полиморфизма весьма различна: от <1% у африканцев до 30% у населения Средиземноморья, Мексики и Северного Китая.
Его связь с риском развития различных заболеваний у человека была тщательно изучена, но до сих пор однозначно не определена. Полиморфизм изменяет пропорции форм коферментов фолиевой кислоты, снижая уровень метилтетрагидрофолата, следовательно, уровня циркулирующей фолиевой кислоты. Увеличение уровня гомоцистеина и снижение уровня фолиевой кислоты наиболее заметно в популяциях с низким/незначительным ее потреблением.
2.2 Абсорбция и транспортировка фолиевой кислоты. Натуральные фолаты, содержащиеся в продуктах питания, представляют собой полиглутаматы, которые должны быть гидролизованы ферментом щеточной каймы верхней части тонкой кишки — фолилполиглутамат гидролазой. Моноглутамат фолата транспортируется в клетки с помощью поверхностного протон-связанного транспортера фолатов. Стабильная форма фолиевой кислоты (невосстановленный фолат) используется в добавках и для обогащения зерновых продуктов. Ее биодоступность составляет около 90%. Фолиевая кислота восстанавливается до тетрагидрофолата, а затем метилируется и выделяется в плазму.
Восстановленный фолатный носитель (семейство растворенных носителей, SLC19A1) транспортирует фолаты в клетку и из нее. Поглощенные фолаты в портальной циркуляции захватываются в печени, полиглутаматируются и задерживаются/высвобождаются в кровоток/желчь. Циркулирующие фолаты связаны с белками, в частности с альбумином. Эритроциты накапливают фолаты в процессе эритропоэза, и, таким образом, уровень фолатов в эритроцитах может более стабильно отражать долгосрочный уровень фолиевой кислоты, нежели в сыворотке. Концентрации фолатов в СМЖ в 3 раза выше, чем в крови, а в сосудистом сплетении имеется множество рецепторов для их поглощения и транспорта.
2.3 Причины дефицита поступления фолиевой кислоты с пищей. Дефицит поступления фолиевой кислоты с пищей встречается в тех районах мира, в которых в настоящее время отсутствует практика обогащения продуктов питания фолиевой кислотой. Продукты, содержащие наибольшее количество фолиевой кислоты природного происхождения, включают темно-зеленые листовые овощи, бобы и зернобобовые культуры, орехи, апельсиновый сок, печень и другие субпродукты. Далее следуют картофель, большинство фруктов и яйца, которые содержат небольшое количество фолиевой кислоты, а за ними — молочные продукты и мышечное мясо.
В странах с высокими ресурсами часто фолиевой кислотой обогащают зерновые продукты, энергетические батончики, спортивные напитки и другие продукты питания, предназначенные для поддержания здоровья и потребления спортсменами. Согласно оценкам, в США потребление фолиевой кислоты природного происхождения из пищи составляет 200 мкг/сут, при этом лица, не принимающие добавки фолиевой кислоты, дополнительно потребляют 200 мкг из злаковых продуктов, обогащенных фолиевой кислотой. Общее количество суточного потребления фолиевой кислоты лицами, дополнительно принимающими добавки, намного выше — 700-1000 мкг. По результатам опросов, в США низкий уровень фолиевой кислоты в сыворотке крови был выявлен у 15% населения до внедрения программы обогащения продуктов питания фолиевой кислотой.
Дефицит поступления фолиевой кислоты с пищей распространен в регионах мира с ограниченными возможностями потребления свежих растительных продуктов и является серьезной проблемой для женщин детородного возраста, которым необходимо повышенное количество фолиевой кислоты для предотвращения осложнений беременности, обусловленных ее дефицитом. При дефиците фолиевой кислоты в результате ее недостаточного потребления с пищей часто наблюдается дефицит других питательных веществ, в том числе витамина С, железа, других витаминов и минералов.
1) Мальабсорбция фолиевой кислоты. Уровень фолиевой кислоты в сыворотке крови снижается в течение 3 нед после значительного недостаточного потребления/мальабсорбции фолиевой кислоты, а через 15-20 нед начинаются изменения в костном мозге. Мальабсорбция фолиевой кислоты происходит при заболеваниях верхних отделов тонкого кишечника и редко наблюдается после гастрэктомии/шунтирования желудка по Ру. Почти у 1/2 пациентов причиной развития дефицита фолиевой кислоты является целиакия, вызывающая атрофию тонкого кишечника. Тропическая спру, причина хронической диареи и прогрессирующей атрофии ворсинок тонкого кишечника, также вызывает дефицит фолиевой кислоты с сопутствующим дефицитом кобаламина или без него. ВЗК, в частности болезнь Крона, помимо дефицита железа и витамина В12, вызывает дефицит фолиевой кислоты.
2) Расстройства, являющиеся причиной повышения потребности в фолиевой кислоте. Заболевания, при которых происходит усиление клеточной пролиферации, могут привести к истощению запасов фолиевой кислоты. К таким заболеваниям относятся кожные заболевания (например, псориаз) и хронические гемолитические анемии, особенно СКА. Кроме того, процедура гемодиализа способствует потере фолиевой кислоты и других водорастворимых витаминов.
3) Потребление алкоголя и дефицит фолиевой кислоты. Злоупотребление алкоголем является наиболее распространенной причиной дефицита фолиевой кислоты, проявляющегося в виде мегалобластной анемии. Несмотря на хорошее качество питания, у больных алкоголизмом могут наблюдаться макроцитоз и повышенные значения гомоцистеина, часто когда уровень фолиевой кислоты и Hb в сыворотке крови все еще нормальный. Нарушение метаболизма фолиевой кислоты в результате злоупотребления алкоголем усугубляется низким качеством питания.
Несмотря на реализацию программы по обогащению продуктов питания фолиевой кислотой, в США все еще фиксируют случаи мегалобластной анемии, возникшей в результате дефицита фолиевой кислоты по причине злоупотребления алкоголем. Было показано, что у больных алкоголизмом с дефицитом фолиевой кислоты имеются нарушения ее всасывания в кишечнике, ее окислительное разрушение, нарушения ее всасывания в печени, снижение ее накопления и ее усиленное выведение с мочой. Воздействие на ферменты метаболизма метионина, особенно метионинсинтазу, вероятно, обусловлено токсическими метаболитами этилового спирта. Иногда диагностика мегалобластной анемии у больных алкоголизмом может представлять сложность, поскольку часто наблюдающийся у них сопутствующий дефицит железа вследствие ЖКК может маскировать макроцитоз.
Кроме того, алкоголь является причиной развития сидеробластной анемии, дефекта утилизации железа, который также может маскировать макроцитоз. Не связанные с алкоголем причины цирроза могут вызывать макроцитоз в результате мембранных нарушений в эритроцитах, даже при надлежащем уровне фолиевой кислоты.
4) Дефицит фолиевой кислоты, связанный с приемом лекарственных средств. Согласно табл. 2, существует множество ЛП, влияющих на метаболизм фолиевой кислоты. Доказано, что противосудорожные ЛП, в частности карбамазепин, фенитоин, вальпроат и фенобарбитал, вызывают макроцитоз, истощение запасов фолиевой кислоты и гипергомоцистеинемию. Прием добавок фолиевой кислоты позволяет восстановить нормальный уровень содержания фолиевой кислоты в организме, не оказывая влияния на эффективность противоэпилептического эффекта.
Существует много антифолатов, которые используются повсеместно в целях ингибирующего действия на клеточную пролиферацию (например, метотрексат, пеметрексед и пралатрексат) и назначаются в рамках XT рака, а также при ревматических заболеваниях. Любопытно, что при приеме фолиевой кислоты не происходит нейтрализации положительного эффекта метотрексата. Некоторые АБ (например, триметоприм, пириметамин) и некоторые производные сульфонамида также являются антифолатами.
Сульфасалазин, назначаемый при ВЗК, также вызывает истощение запасов фолиевой кислоты. Функциональный дефицит фолиевой кислоты может быть вызван ЛП, которые для метаболизма требуют метилирования, истощая нормальные запасы метильных групп. Такие ЛП, как леводопа, высокие дозы никотиновой кислоты (Ниацина) и безрецептурный ЛП α-липоевая кислота, способствуют повышению уровня гомоцистеина.
5) Врожденное нарушение метаболизма фолиевой кислоты. Существуют 2 врожденных нарушения фолиевой кислоты, которые проявляются в виде мегалобластной анемии: дефицит метилентетрагидрофолат дегидрогеназы и наследственная мальабсорбция фолиевой кислоты из-за мутаций в протон-связанном транспортере фолатов. Дефицит метилентетрагидрофолатдегидрогеназы был выявлен у 6 младенцев и детей с мегалобластной анемией, иммунодефицитом/воспалительными состояниями и гипергомоцистеинемией. У некоторых пациентов отмечается эффективность лечения высокими дозами фолиевой/фолиниевой кислоты. Вероятность клинических случаев данного заболевания у взрослых пациентов пока еще неизвестна.
Существенный дефицит метилентетрагидрофолат дегидрогеназы (нестандартный термолабильный полиморфизм) вызывает гипергомоцистеинемию с низким содержанием метионина, но не мегалобластную анемию. У этих пациентов могут возникать тромботические осложнения гипергомоцистеинемии и неврологический дефицит. Лечение бетаином и фолиевой кислотой позволяет существенно улучшить прогноз.