ВИЧ вызывает прогрессирующий иммунодефицит и смерть от оппортунистических инфекций или опухолевых заболеваний. Достижения в области диагностики, профилактики и лечения, которые привели к снижению заболеваемости и смертности от ВИЧ, появились в результате идентификации и характеристики ВИЧ. Вслед за передовыми открытиями ретровируса, вызывающего СПИД (1983-1985), были охарактеризованы продукты генов ВИЧ и способ репликации вируса, что привело к выявлению главных мишеней для противовирусной терапии и непосредственно к разработке эффективной комбинированной APT в 1995-1996 гг.
Как описано в отдельной статье на сайте (просим Вас пользоваться формой поиска по сайту выше), внедрение APT склонило чашу весов в эпидемии в сторону уменьшения числа смертей относительно числа новых случаев инфекции.
Изменившийся ландшафт эпидемии ВИЧ-инфекции ставит перед нами новые задачи. В связи с ростом численности ВИЧ-инфицированного населения, проходящего курс лечения, повышения смертности инфицированных людей, несмотря на APT, и появления устойчивости к противовирусным ЛП первоочередной задачей ОЗ становится разработка стратегий, направленных на искоренение или контроль ВИЧ в отсутствие APT.
Здесь мы суммируем основные концепции биологии ВИЧ, однако наше понимание ВИЧ остается неполным; новые и текущие исследования, объясняющие взаимодействие организма и вируса, продолжат выявлять новые мишени для противовирусной терапии и приводить к инновационным стратегиям искоренения ВИЧ.
ВИЧ был впервые обнаружен после интенсивного обследования пациентов, у которых был выявлен СПИД. Добавление плазмы или совместная культивация с лимфоцитами от больных СПИДом вызывали выраженный цитопатический эффект в культуре клеток; бесклеточный материал передавал инфекцию свежим неинфицированным культурам и воспроизводил клеточную патологию; культуры содержали как ферментативную активность обратной транскриптазы, так и вирионы с морфологией, характерной для лентивирусов.
Изначально этот вирус был назван человеческим Т-лимфотропным вирусом III (HTLV-III) из-за его очевидного родства с другими ретровирусами человека HTLV-I и -II; последующее исследование выявило лишь отдаленное родство с HTLV, и новый вирус был переименован в ВИЧ.
Плазма инфицированных людей содержала значительное количество АТл к вирусу, что позволило разработать методы детекции ИФА и вестерн-блот, используемые для диагностики, эпидемиологического надзора и контроля продуктов крови.
а) Классификация и происхождение. ВИЧ относится к роду лентивирусов подсемейства ретровирусов семейства Orthoretrovirinae; все ретровирусы характеризуются наличием специфического фермента — обратной транскриптазы, который катализирует синтез ДНК на матрице РНК, что является ключевым и уникальным событием в репликации ретровируса, позволяющим интегрировать вирусную ДНК в геном хозяина.
Retroviridae — это большое семейство вирусов, поражающих организмы различных позвоночных животных, главным образом млекопитающих и птиц. Ретровирусы ответственны за целый спектр болезней, включая иммунодефициты и неопластические, неврологические, гематологические, энцефалитные и воспалительные заболевания. Представители рода лентивирусов вызывают хронические, рецидивирующие или прогрессирующие заболевания, включая иммунодефициты, у различных видов млекопитающих.
После разработки первых методов лабораторной диагностики ВИЧ-инфекции дополнительный анализ выявил людей с симптоматикой СПИДа, у которых не было серологических реакций, характерных для ВИЧ, что привело к выявлению второго, особого, вируса иммунодефицита, обозначенного ВИЧ-2. Распространение ВИЧ-2 было ограничено в основном Западной Африкой и странами, имеющими экономические, политические или культурные связи с Западной Африкой.
ВИЧ генетически разнообразен, и происхождение и распространение вариантов ВИЧ, циркулирующих в настоящее время у людей, было прослежено путем анализа последовательностей нуклеиновых кислот ВИЧ и близкородственных вирусов приматов; эти анализы убедительно свидетельствуют о том, что ВИЧ возник в результате зоонозной передачи от приматов к людям, вероятно, в период с 1890 по 1930 г. в Центральной и Западной Африке. Зоонозная передача происходит путем тесного контакта крови и жидкостей организма; царапины, укусы и разделывание отловленных зараженных животных представляют собой готовые механизмы для передачи.
Возможности для зоонозной передачи, вероятно, существовали на протяжении тысячелетий, и причины, по которым распространение эпидемии не происходило до недавнего времени, неясны. В конце XIX — начале XX вв. распространению эпидемии, возможно, способствовал целый ряд факторов, включая значительное увеличение плотности населения, недоедание, способствующее возникновению иммунодефицита, демографические сдвиги, вызванные политическими переворотами, и развитие инфраструктуры, например строительство дорог, облегчающих передвижение людей на большие расстояния.
Дальнейший генетический анализ и отбор проб у нечеловекообразных приматов пролил новый свет на источники эпидемии ВИЧ. Относительно высокая генетическая вариабельность ВИЧ оказалась полезной как для целей классификации, так и для характеристики источника и распространения ВИЧ. В настоящее время выделены четыре отдельные группы: большая группа вирусов, встречаемая во всем мире (М, от main — основная), относительно небольшая группа вирусов в Центральной Африке (О, от other — другие) и две небольшие группы у людей с западноафриканским происхождением, обозначенные N и Р (вызвавшие ~20 и 2 случая инфекции соответственно).
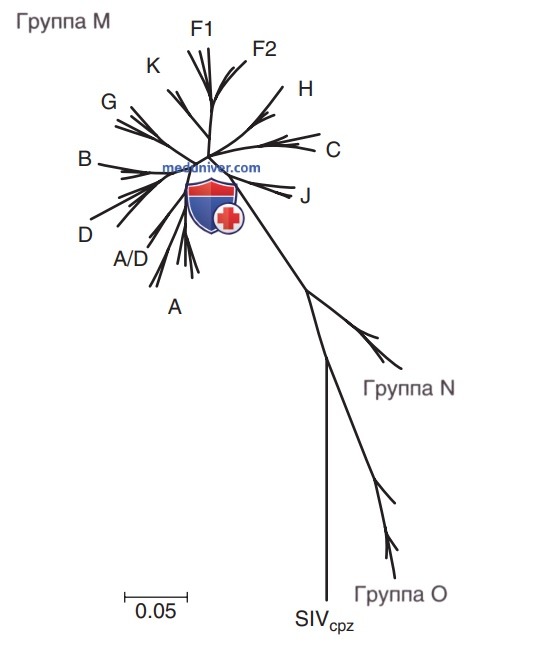
Филогенетические реконструкции демонстрируют различное происхождение для групп ВИЧ-1, указывая на то, что каждая из них является результатом отдельного зоонозного события (рис. 1). М-вирусы тесно связаны с аналогичным обезьяньим вирусом иммунодефицита, присутствующим у видов шимпанзе (обозначается SIVcpz, вирус иммунодефицита обезьян, cpz для обозначения конкретного животного резервуара). Группа «О» наиболее тесно связана с SIV*, встречаемой у западных равнинных горилл и у шимпанзе.
P.S. * В русскоязычной литературе принято сокращение ВИО.
Рисунок 1. Филогенетические взаимоотношения групп и подтипов ВИЧ-1. Выровненные референсные последовательности обратной транскриптазы ВИЧ были анализированы методом максимального правдоподобия, филогенетические деревья построены и укоренены на далеком предке — последовательности вируса иммунодефицита шимпанзе. Ветви вирусов группы М образуют звездчатую структуру, указывающую на существование общего предка. Приводится пример рекомбинантных последовательностей — А/D, содержащий части родительских подтипов А и D, как промежуточный между родительскими подтипами. Группы О и N отдаленно связаны с группой М и, вероятно, представляют собой независимые зоонозные события. Маркер — генетическая дистанция, отображающая различие в процентах. База данных последовательностей ВИЧ
Напротив, ВИЧ-2 тесно связан с SIVsmm, лентивирусом, обычно присутствующим у дымчатых мангобеев, ареал обитания которых включает Западную и Центральную Африку, где и был идентифицирован ВИЧ-2.
Вирусы группы М вызывают подавляющее большинство случаев инфекции у человека и довольно разнообразны, включая по крайней мере девять подтипов, обозначенных от А до D, F, далее до Н, J и К. Анализ взаимосвязей последовательностей нуклеиновых кислот позволяет выявить общую «звездообразную» филогению (см. рис. 1) и свидетельствует о том, что в целом все современные варианты произошли от общего предка. Исследования самых ранних выявленных вирусных последовательностей указывают на то, что ВИЧ, вероятно, подвергся диверсификации вскоре после передачи от животных человеку. Между этими подтипами может происходить рекомбинация (см. рис. 1) с образованием новых рекомбинантных вирусов, классифицируемых как циркулирующие рекомбинантные формы.
После открытия СПИДа ВИЧ быстро распространился по всему миру. В то время как в Африке сохранялось высокое разнообразие вирусов, «эффекты основателя» привели к распространению одного или ограниченного числа вариантов вирусов того или иного подтипа в странах за пределами Африки. Эпидемия в США началась с вируса подтипа В; хотя первоначально случаи заболевания трактовались как единичные, был проведен тщательный и исчерпывающий анализ, который позволил проследить эпидемию ВИЧ от Африки до США через Гаити, а также раннюю экспансию в крупных мегаполисах, причем Нью-Йорк был важнейшим связующим звеном.
Все современные лабораторные методы, позволяющие выявить ВИЧ, идентифицируют все варианты ВИЧ-1 и ВИЧ-2. У людей соответствующего географического происхождения, особенно уроженцев Западной Африки, чрезвычайно важно точно охарактеризовать инфекцию, чтобы запланировать терапию соответствующим образом; ВИЧ-2 и ВИЧ-1 группы О проявляют естественную резистентность к ненуклеозидным ингибиторам обратной транскриптазы и ингибиторам слияния. Поскольку возможны двойные инфекции ВИЧ-1/ВИЧ-2, крайне важно, чтобы все люди из эндемичных для этих двух вирусов районов (особенно в Западной Африке) были тестированы как на ВИЧ-1, так и на ВИЧ-2.
б) Структура и молекулярная биология:
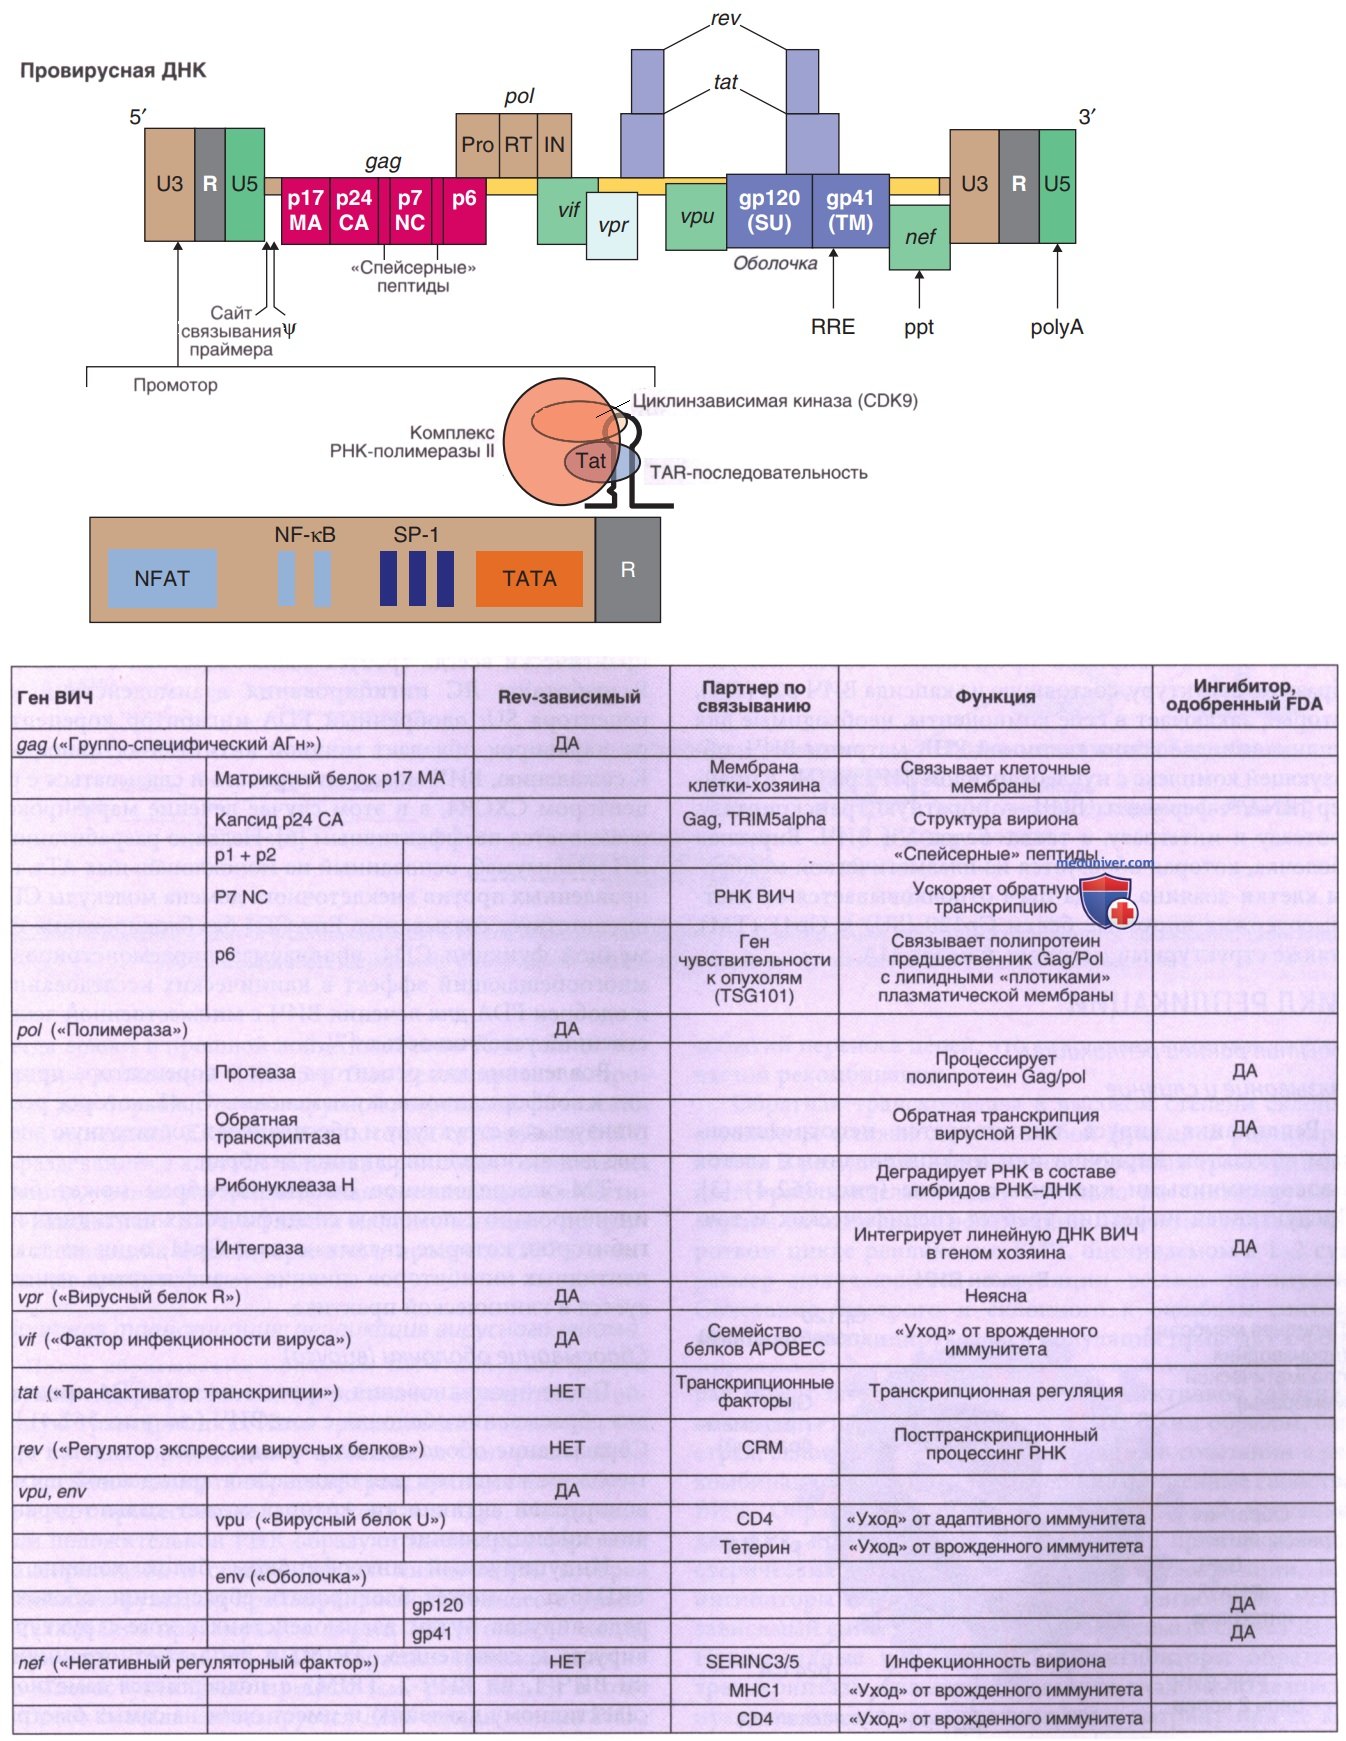
1. Структура и организация генома. Как и все ретровирусы, ВИЧ размножается с образованием промежуточной кДНК. Вирион содержит две копии одноцепочечной плюс-смысловой РНК (называемой вирусной РНК), а стабильно инфицированная клетка содержит двуцепочечную вирусную ДНК, интегрированную в геном хозяина (называемую провирусом). Как показано на рис. 2 и рис. ниже, вирусная РНК и провирус имеют особую организацию генома в нетранслируемых областях 3’ и 5’ Нетранслируемые области содержат короткий концевой повтор, а также уникальные последовательности в областях 5’ (U5) и 3’ (U3) на каждом конце генома, которые дублируются во время репликации, генерируя более длинную дублированную последовательность, называемую длинным концевым повтором на каждом конце провируса.
Рисунок 2. Ранние события репликации ВИЧ включают присоединение, слияние, «раздевание», обратную транскрипцию и интеграцию в геном хозяина. Приведено изображение обратной транскрипции и интеграции ВИЧ-инфекции
Организация и функционирование генома ВИЧ. Изображена провирусная дезоксирибонуклеиновая кислота с полным длинным концевым повтором (LTR). Гены ВИЧ выделены строчным курсивом. Продукты генов выделены прописными буквами. Гены (изображенные не в масштабе) обозначены цветом, а функция соответствующего продукта генов кратко описана. Отмечаются компоненты клетки-хозяина, взаимодействующие с продуктами каждого из вирусных генов, а также те из них, которым соответствуют одобренные Комитетом по контролю за лекарственными средствами и пищевыми добавками лекарственные препараты (FDA). Rev — регуляторный белок ВИЧ-1
ВИЧ кодирует девять генов, продукты которых необходимы для обеспечения структурных, ферментативных и регуляторных функций, а также нейтрализации врожденного иммунитета (см. рис. выше). Гены ВИЧ принято обозначать строчным курсивом (gag, pol и т.д.), при этом названия отражают их функцию, местоположение в вирионе или являются историческим пережитком предшествующей классификации (например, gag — групповой АГн).
Охарактеризованы также дополнительные гены, функция которых важна для регуляции или репликации (tat, rev, vpr) или блокирования иммунных реакций на ВИЧ (vif, vpu, nef); все они имеют решающее значение для ВИЧ-инфекции in vivo.
2. Структура вириона. Вирион ВИЧ содержит продукты вирусных генов и клеточные компоненты, необходимые для передачи инфекции и формирования провируса. Вирионы ВИЧ представляют собой почти сферические частицы диаметром от 80 до 120 нм и состоят из вирусного core (сердцевины), окруженного липидной оболочкой (рис. 3).
Рисунок 3. Вирион ВИЧ. ВИЧ — оболочечный вирус, состоящий из двух копий плюс-РНК, ферментов, необходимых для репликации, заключенных в центральной (core) части вириона, окруженной мембраной, которая образовалась в результате почкования из инфицированной клетки
Core зрелого вириона представляет собой конусообразную структуру, состоящую из капсида ВИЧ р24 (СА), который заключает в себе компоненты, необходимые для репликации: две копии геномной РНК-матрицы ВИЧ, образующей комплекс с нуклеокапсидом ВИЧ р6 (NC); праймер tRNAlys; ферменты ВИЧ — обратную транскриптазу, протеазу и интегразу, а также белок Vif ВИЧ. Вирусная оболочка, которая образуется из плазматической мембраны клетки-хозяина, когда ВИЧ отпочковывается от клетки, содержит вирусные белки Gp120 (SU) и Gp41 (ТМ), а также структурный матричный белок МА.
3. Цикл репликации:
3.1 События ранней репликации:
- Связывание и слияние. Репликация вируса инициируется непосредственным контактом вирионов или инфицированных клеток с восприимчивыми клетками хозяина (рис. 4). Продуктивная инфекция требует специфических и точных взаимодействий, опосредованных поверхностными тримерными гликопротеиновыми комплексами ВИЧ-1-Env, состоящими из ВИЧ sp120 SU, нековалентно связанного с ВИЧ gp41 ТМ. Фаза присоединения опосредуется исключительно гликопротеином оболочки SU, который взаимодействует с двумя — различными мембранными белками для связывания рецептором и корецептором (см. рис. 4).
Рисунок 4. Поздние события в репликации ВИЧ. После образования провируса транскрипция, посттранскрипционный процессинг, трансляция, сборка вирионов, почкование и созревание вирионов происходят путем вовлечения клеточных процессов
ВИЧ изначально связывает рецепторы CD4, что приводит к конформационному изменению в Env и облегчает последующее связывание с корецепторами. Как правило, белки SU используют либо CCR5, либо CXCR4 для заражения CD4+ Т-клеток, но встречаются и вирусы с двойной тропностью CCR5/CXCR4. Хотя вирусная инфекция может распространяться с помощью любого корецептора — CCR5 или CXCR4, для первичного заражения, по всей видимости, требуются CCR5-тропные вирусы. В популяции имеется значительная доля людей, имеющих мутантный ген CCR5, который не кодирует функциональный CCR5.
Случаи ВИЧ-инфекции у людей, имеющих гомозиготную мутацию CCR5, чрезвычайно редки, что позволяет предположить, что заражение практически всегда требует взаимодействия с CCR5. Разработаны ЛС ингибирования взаимодействий корецептора SU; одобренный FDA ингибитор корецептора маравирок обладает мощной антиВИЧ-активностью. К сожалению, ВИЧ может мутировать и связываться с рецептором CXCR4, а в этом случае лечение маравироком оказывается неэффективным.
Недавно разработанный ЛП ибализумаб, основанный на моноклональных АТл, направленных против внеклеточного домена молекулы CD4, препятствует связыванию Env-CD4 без блокирования иммунной функции CD4; ибализумаб продемонстрировал многообещающий эффект в клинических исследованиях и одобрен FDA для лечения ВИЧ с множественной лекарственной устойчивостью.
Вовлечение как рецептора, так и корецептора приводит к конформационному изменению Gp41, которое реорганизует его структуру и обеспечивает достаточную энергию для активизации слияния мембран.
ТМ-опосредованное слияние мембран может быть ингибировано с помощью специфических пептидных ингибиторов, которые связываются с Gp41; один из таких пептидных ингибиторов слияния — энфувиртид, используется в клинической практике.
- Сбрасывание оболочки (вируса). После проникновения вируса в клетки CD4 происходит сбрасывание оболочки с core ВИЧ (см. рис. 4). Сбрасывание оболочки, или «раздевание», является критическим моментом для проявления врожденной противовирусной активности, которая может сильно ограничить инфицирование.
Индуцируемый интерфероном белок хозяина — TRIM5-α — может блокировать сбрасывание оболочки ряда вирусов путем взаимодействия с core-структурой вируса; к сожалению, TRIM5-α не может ограничить ни ВИЧ-1, ни ВИЧ-2. TRIM5-α подвергается заметному селективному давлению и имеет один из самых быстрых темпов положительного отбора среди человеческих генов. Исследования показывают, что текущая версия TRIM5-α, присутствующая в человеческой популяции, возможно, была отобрана во время какой-то предыдущей эпидемии для защиты от древней ретровирусной инфекции.
Согласно этой модели, сравнимой с поговоркой «генералы всегда воюют в прошлой войне, особенно если они ее выиграли», нынешний TRIM5-α был селектирован в прошлом для борьбы с ретровирусной инфекцией. К сожалению, нынешний TRIM5-α не способен ограничить ВИЧ, и «раздевание» в клетках человека происходит неминуемо. Условия, точная внутриклеточная локализация и кинетика «раздевания» ВИЧ остаются малоизученными, но фармакологические ингибиторы этого процесса (PF74) в настоящее время изучаются.
- Обратная транскрипция: репликация вирусного генома. После сбрасывания оболочки ВИЧ получает доступ к нуклеозидтрифосфатам, что позволяет осуществлять обратную транскрипцию. Хотя традиционно считается, что этот процесс происходит в цитоплазме (см. рис. 4), для ядерного импорта обратная транскрипция не требуется, и этот процесс может происходить в ядре. Матричные цепи положительной РНК образуют комплекс с обратной транскриптазой и специфической лизин-тРНК, которая выполняет функцию праймера, расположенного в участке связывания праймера (см. рис. выше) около 5’ конца матричной РНК и РНК ВИЧ.
Обратная транскрипция — это многоступенчатый процесс (см. рис. 2), в ходе которого сначала синтезируется ДНК-копия генома РНК, а затем РНК «вырезается» из РНК-ДНК гибрида с использованием РНКза-Н-функции обратной транскриптазы.
Удаление РНК является неполным, и остаток РНК в области, называемой полипуриновым трактом (см. рис. 2), затем служит для запуска следующей стадии синтеза ДНК. Во время обратной транскрипции происходят несколько событий переноса цепей, что открывает возможности для частой рекомбинации.
Обратная транскриптаза в высокой степени склонна к ошибкам в связи с очень слабой функцией редактирования. В результате завершенная обратная транскрипция дает приблизительно одну мутацию на синтезируемый вирион за один цикл репликации. При относительно коротком цикле репликации ВИЧ, оцениваемом в 1-2 сут, размер получающейся популяции весьма значителен. Сочетание быстрого и склонного к ошибкам синтеза в большой реплицирующейся популяции приводит к формированию генетически разнообразной популяции, которая может быстро реагировать на селективное давление со стороны иммунной системы и ЛП.
Таким образом, быстрая, склонная к ошибкам репликация в сочетании с рекомбинацией определяет важнейшие патогенные свойства ВИЧ. Обратная транскрипция была первой мишенью для APT, при этом был разработан ряд прямых и аллостерических ингибиторов обратной транскрипции. Все ингибиторы обратной транскрипции ингибируют РНК-зависимый синтез ДНК или ДНК-зависимый синтез ДНК. Нуклеозидные и нуклеотидные ингибиторы обратной транскриптазы являются дидезокси-аналогами дезоксинуклеотидов, которые включаются в матрицу при ее копировании и действуют как терминаторы цепи, блокируя синтез нуклеиновых кислот.
Ненуклеозидные ингибиторы обратной транскрипции связываются с обратной транскриптазой в гидрофобном домене, проксимальном по отношению к активному участку, деформируя структуру фермента и нарушая синтез нуклеиновых кислот.
3.2 Ядерный транспорт и интеграция. Вновь синтезированная ДНК ВИЧ претерпевает интеграцию в геном хозяина. Комплекс белка ВИЧ — интегразы, вновь синтезированной ДНК ВИЧ и ассоциированных белков называется интасомой. Структурные исследования выявили мультимерные молекулы интегразы, связанные с концами ретровирусной ДНК, которые близко сводят концы цепей ДНК, подготавливая ее к интеграции в геном в ходе многоступенчатого процесса (см. рис. 2).
Интеграция является весьма успешной мишенью для антиретровирусной терапии, и ингибиторы, блокирующие перенос цепи ДНК ВИЧ в геном хозяина, в настоящее время являются антиретровирусными ЛП первой линии в клинической практике.
- Ранний «уход» от внутриклеточного иммунитета: Vif и Vpu. ВИЧ-инфекция запускает сложный набор иммунных реакций, при этом активизируется ряд вирусных факторов, противодействующих врожденному и адаптивному иммунитету. Как описано ранее, ВИЧ способен инфицировать человеческие клетки, так как в других отношениях эффективный TRIM5-α-механизм ограничения, блокирующий «раздевание», не способен обнаружить проникающий в организм вирус.
Инфекция активизирует два дополнительных интерферон-индуцированных гена, кодирующих белки семейства АРОВЕС (фермент, редактирующий мРНК аполипопротеина В, каталитический полипептидоподобный), — ферменты редактирования нуклеиновых кислот и BST-2 (тетерин). ВИЧ, в свою очередь, обладает специфическими функциями для противодействия таким противовирусным механизмам.
Индуцированные интерфероном белки семейства АРОВЕС представляют собой ферменты редактирования нуклеиновых кислот, способные катализировать удаление аминогрупп из цитозинового компонента цитидина; при копировании эти дезаминированные основания цитидинов соединяются с аденозином, а не гуанином, и конечным результатом является формирование множественных мутаций G-to-A, в результате чего происходят гипермутация и полная инактивация вируса. В отсутствие вирусных факторов белки АРОВЕС могут быть включены в новые вирионы.
В результате в ходе очередного цикла инфекции после проникновения ВИЧ в новые клетки хозяина АРОВЕС приступает к гипермутации генома ВИЧ, образованного в ходе обратной транскрипции. Чтобы заблокировать АРОВЕС-опосредованную инактивацию ВИЧ, продукт вирусного гена Vif (см. рис. выше) непосредственно связывается с АРОВЕС, перенаправляя его на путь деградации с участием убиквитина. Направление АРОВЕС на элиминацию вместо включения в вирион позволяет эффективно нейтрализовать мощный врожденный иммунный ответ.
Вторым продуктом индукции интерферона является стромальный АГн костного мозга 2 (BST-2), CD317, или тетерин. BST-2 привязан к плазматической мембране на своих амино- и карбоксильных концах и накапливается при почковании вириона. Тетерин может непосредственно блокировать процесс почкования. Почкующиеся вирионы могут содержать один конец молекулы тетерина в мембране вириона, в то время как другой конец тетерина остается на клеточной мембране, тем самым эффективно блокируя высвобождение вириона. Для противодействия этому механизму клетки-хозяина белок ВИЧ — Vpu эффективно блокирует тетерин с помощью разнообразных механизмов, включающих прямое связывание и направление белка на путь внутриклеточной деградации.
3.3 Поздние этапы репликации:
- Транскрипция и трансляция: использование клеточных процессов для обеспечения баланса продуктов вирусных генов. После установления провирусного состояния ВИЧ продуцирует вирусные РНК и белки, используя вирусные факторы совместно с клеточными механизмами транскрипции и трансляции. Таким образом, ВИЧ размножается не путем ослабления функций клеток, а главным образом с использованием специфических взаимодействий между факторами организма-хозяина, что обеспечивает сбалансированное соотношение продуктов вирусных генов.
- Транскрипция. Интегрированный провирус экспрессируется в составе хроматина клетки-хозяина. Участок U3 длинного концевого повтора ВИЧ содержит сайты связывания транскрипционных факторов, распространенных в лимфоцитах и моноцитарно-макрофагальных линиях, включая активаторный белок 1 (АР-1), белок специфичности 1 (SP-1), транскрипционный фактор NF-кВ (ядерный фактор «каппа-би») и ядерный фактор активированных Т-клеток (NFAT). Присутствие вирусного фактора — трансактиватора транскрипции (Тат) заметно стимулирует транскрипцию путем связывания со специфическим РНК-энхансером — так называемой трансактивирующей областью (TAR), а также рекрутирования дополнительных транскрипционных факторов (см. рис. 4).
- Посттранскрипционный процессинг. Ретровирусы транскрибируют все свои гены от одного промотора. Полноразмерная РНК ВИЧ подвергается процессингу для экспрессии всех продуктов девяти генов и упаковки вирусного генома в вирионы. Для обеспечения достаточного количества видов мРНК для экспрессии всех белков ВИЧ процессинг РНК эффективно регулируется путем альтернативного сплайсинга и дифференцированного транспорта РНК (см. рис. 4).
- Трансляция матричной рибонуклеиновой кислоты. Все РНК ВИЧ транслируются с участием клеточных рибосом в гладком или шероховатом эндоплазматическом ретикулуме. Количественное соотношение белков ВИЧ регулируется механизмами трансляции и посттрансляционной модификации, опосредованными механизмами хозяина, которые очень важны для функционирования вирусных белков. Полноразмерная РНК ВИЧ служит в качестве РНК для включения в вирусные частицы и синтеза Gag/Pol.
Gag синтезируется как полипротеин-предшественник с молекулярной массой 55 кД в сравнительно больших количествах. Белок Gag миристилирован на N-конце, что придает ему способность связывать клеточные мембраны. Продукты гена pol транслируются с использованием механизма сдвига рамки. Эффективность этого механизма невелика, и количество продуктов гена pol существенно меньше, чем белков Gag, что позволяет эффективно контролировать содержание ферментов в пользу преобладания структурных белков.
Белки ВИЧ Vpu и Env транслируются из 4,5-кб бицистронной мРНК, что позволяет эффективно продуцировать оба белка — Vpu и Env. Поскольку Vpu связывает CD4 путем прямого взаимодействия этих белков на внутриклеточных мембранах (см. ниже), он препятствует взаимодействию CD4 и Env, которое могло бы удержать Env внутри клеток. Таким образом, скоординированная экспрессия Vpu с Env обеспечивает эффективную экспрессию Env. Белок Env синтезируется как gp160 предшественник поверхностного и трансмембранного Env (SU и ТМ), одновременно с трансляцией внедряется в расширения мембран шероховатого эндоплазматического ретикулума и гликозилируется преимущественно в нескольких канонических сайтах N-гликозилирования.
Множественно сплайсированные молекулы мРНК, кодирующие Tat, Rev и Nef, транслируются раньше всех после заражения; Tat и Rev транспортируются в ядро, где активируют транскрипцию и транспорт (см. выше). Nef выполняет ряд цитоплазматических функций в «уходе» от иммунитета хозяина путем связывания МНС-1 и CD4 и их «отвода» от плазматических мембран. Таким образом, на раннем этапе инфекционного цикла количество иммунных молекул, которые помогают идентифицировать и поражать инфицированные вирусом клетки, сокращается на поверхности инфицированных клеток, облегчая репликацию вируса.
- Транспортировка и сборка компонентов вириона: изящный танец. Поздние этапы репликации вируса сложны, однако анализ отдельных этапов выявил ряд важных взаимодействий между компонентами хозяина и вириона, которые представляют собой активные области для разработки полезных терапевтических ЛС.
Белки ВИЧ и вирионная РНК перемещаются к плазматической мембране, где происходит сборка вириона. Вновь образованные полипротеины-предшественники Gag и Gag/Pol претерпевают котрансляционные модификации, в результате которых Gag направляется к мембранам. Gag обладает свойствами самосборки, но правильная начальная сборка core-части вириона с образованием гексагональной решетки предполагает включение вирионной РНК и дополнительных факторов. Вирионная РНК подвергается димеризации, в основном за счет прямых взаимодействий РНК-РНК, которые требуют наличия специализированных последовательностей РНК, называемых psi, в 5’-области генома, что благоприятствует включению только несплайсированных РНК ВИЧ.
Полипротеин-предшественник Gag может непосредственно связывать РНК ВИЧ, обеспечивая возможный механизм переноса к клеточной мембране. Gag также накапливается в специализированных мембранных микродоменах, обогащенных сфингомиелинами, насыщенными фосфолипидами, и ХС, типичным для липидных «плотиков», и связывает компоненты пути ESCRT (см. рис. 4). Путь ESCRT обычно участвует в перестройке внутриклеточных мембран и процессах расщепления, необходимых для таких событий, как биогенез органелл, образование лизосом и цитокинез.
Рекрутируя ESCRT к местам сборки ВИЧ на плазматической мембране, ВИЧ задействует этот высокоспециализированный путь в пользу почкования. Элегантные исследования передачи ВИЧ показали, что эти события могут также участвовать в межклеточной передаче ВИЧ в «вирусологических синапсах» — специализированных зонах межклеточных контактов.
В процессе почкования ВИЧ проходит несколько этапов созревания, включая протеолитический процессинг белков-предшественников Gag и Gag/Pol с участием протеазы ВИЧ (см. рис. 4).
Будучи частью предшественника Gag/Pol, протеаза «вырезает» себя сама из предшественника, а затем осуществляет процессинг Gag и Gag/Pol до формирования соответствующих белков. Процессинг критически важен для инфекционности вирионов, а ингибиторы протеазы являются высокоэффективными агентами в терапии ВИЧ.
Во время процессинга решетка core начинает изгибаться в результате внедрения пентамеров капсидного белка в критические точки гексагональной решетки, структура сворачивается в фуллереноподобный конус, который включает димерную лизин-тРНК ВИЧ и ферменты ВИЧ. Ингибиторы созревания, блокирующие созревание путем связывания Gag вместо ингибирования протеазы, представляют собой новую противовирусную мишень.
Гликопротеин — предшественник Env ВИЧ процессирует клеточная фуриноподобная протеаза с образованием зрелых продуктов gp120 (SU) и gp41, которые направляются к плазматической мембране через мембраны Гольджи и пост-Гольджи. Поскольку клеточный рецептор CD4 процессируется с помощью аналогичных механизмов, внутриклеточное связывание Env-CD4 может эффективно блокировать Env, препятствуя достижению им поверхности клетки. Белок ВИЧ Vpu, который непосредственно связывает и направляет CD4 на путь протеолитической деградации, увеличивает долю Env, достигающую клеточной поверхности и участков почкования ВИЧ.
Трансмембранный белок стромальных клеток костного мозга антиген-2 (BST-2/тетерин) препятствует высвобождению частиц ВИЧ-1 путем удержания вирионов на мембранах инфицированных клеток. Однонуклеотидные полиморфизмы в BST-2/тетерине связаны со снижением риска передачи ВИЧ-1 от матери к ребенку и прогрессирования СПИДа у взрослых.
Обнаружены новые факторы рестрикции — серининкорпорирующие белки (SERINC) 3 и 5, которые снижают инфекционную способность вирионов. SERINC3 и SERINC5 являются интегральными белками плазматической мембраны, способными встраиваться в вирионы в процессе почкования.
Белок ВИЧ Nef эффективно «уводит» SERINC3/5 с поверхности, тем самым повышая инфекционную способность. Эти исследования выявили новые потенциальные мишени для дальнейшей разработки противовирусных препаратов.
в) Резюме. К моменту завершения инфекционного цикла ВИЧ производит потомство для следующего инфекционного цикла, препятствует адаптивным и врожденным иммунным реакциям и создает провирусное состояние в инфицированной клетке. Несмотря на множество механизмов «ухода» от иммунитета, большинство инфицированных клеток (>99,9%) погибают в течение 1-2 сут после заражения. Таким образом, у вируса есть очень мало времени, чтобы задействовать важные клеточные пути для завершения репликации, так как клетки подвергаются разрушению.
Небольшая доля инфицированных клеток выживает и сохраняется в течение длительного времени. Как следствие, нынешняя APT, мишенью которой являются активные стадии репликации ВИЧ, не искореняет ВИЧ-инфекцию. Механизмы персистенции остаются малоизученными, но, вероятно, включают транскрипционные и иммунологические механизмы. Дополнительные исследования будут иметь большое значение для выявления механизмов персистентности и определения новых стратегий лечения ВИЧ-инфекции.
Полноразмерная РНК состоит из основной кэпированной мРНК размером ~9,2 кВ, которая подвергается альтернативному сплайсингу для получения трех главных классов РНК: несплайсированной РНК размером 9,2 кВ, ответственной за трансляцию gag/pol; нескольких однократно (частично) сплайсированных видов РНК размером 4,5 кБ, ответственных за трансляцию vif, vpr и vpu/env; множественно сплайсированных видов размером 1,8 кБ, ответственных за tat, rev и nef. Множественно спланированные РНК размером 1,8 кБ конститутивно экспрессируются, а несплайсированные и однократно спланированные мРНК ВИЧ требуют специфического транспорта белков из ядра.
Механизм удержания их в ядре неясен, но наличие цис-регуляторных последовательностей, присутствующих в gag/pol и env, приводит к их удержанию в ядре. Для экспорта несплайсированных и однократно сплайсированных РНК ВИЧ вирусный белок Rev прикрепляется к специальному участку env несплайсированной и однократно сплайсированной РНК, называемому элементом, реагирующим на Rev (RRE).
RRE — это последовательность из 240 нуклеотидов, складывающаяся в определенную структуру, к которой привязывается Rev.
Затем комплекс Rev-PHK задействует ядерный транспортный аппарат клетки-хозяина — белок CRM-1, который транспортирует РНК из ядра. Таким образом, вовлечение соответствующих элементов хозяйских клеток приводит к установлению нужного соотношения видов мРНК — 9,2, 4,5 и 1,8 кБ.