Развитие скелетных мышц в эмбрионе - кратко с точки зрения эмбриологии
А. Развитие скелетной мускулатуры
А. Развитие скелетных мышц:
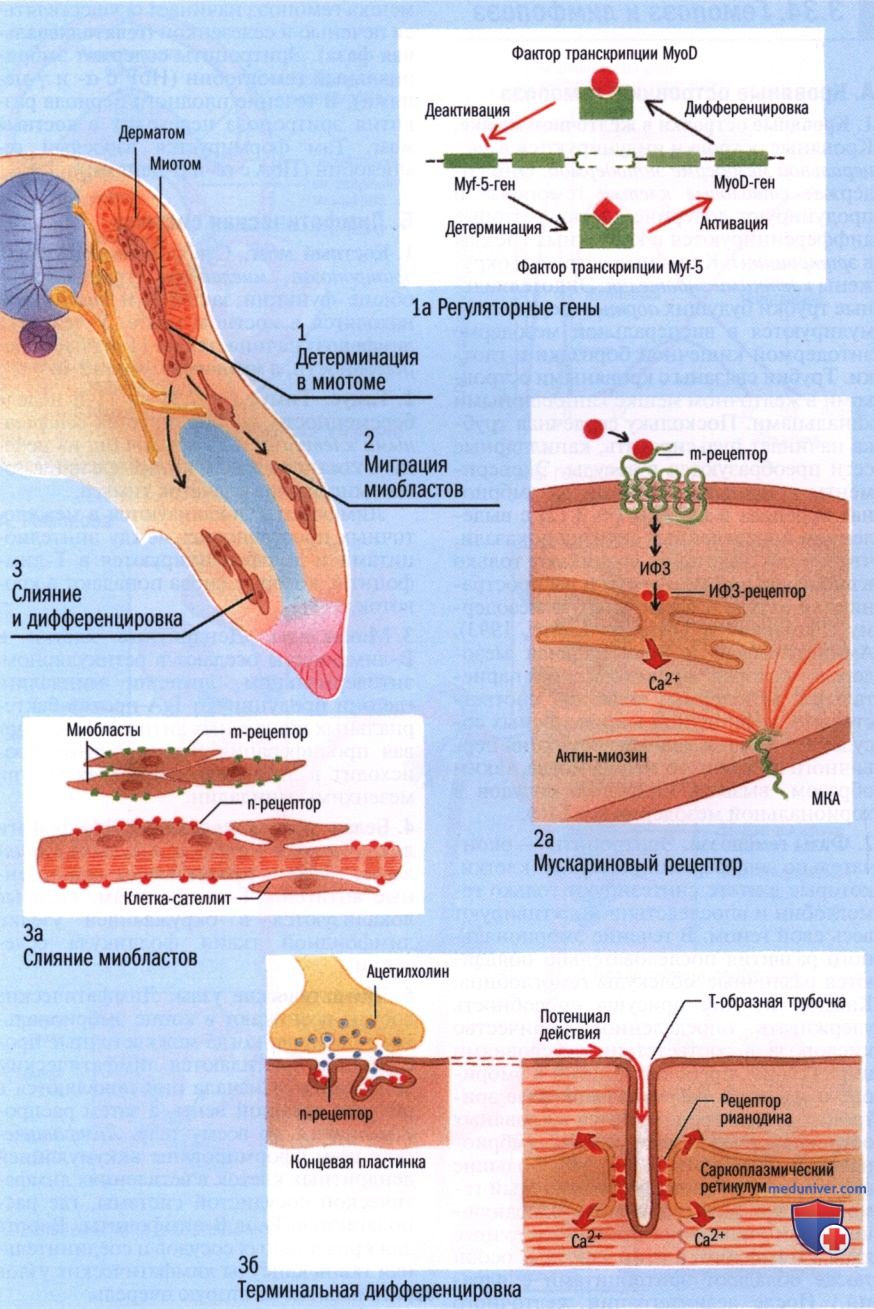
1. Детерминация в миотоме. Скелетная мышца развивается из сомитов. Миобласты для аутохтонной мускулатуры спины сливаются в миотомах в сегментарно организованные мышечные волокна, которые после иннервации преобразуются в дефинитивные мышцы спины.
Миобласты для вентральных мышц стенки тела и конечностей мигрируют в виде отдельных клеток из переходной зоны между миотомом и дерматомом. Жевательная и лицевая мускулатура происходят из соответствующих сегментов глоточных дуг («проблема головы»). Впереди области глоточных дуг располагаются рудиментарные сомитические сегменты, которые дают начало миобластам для наружных мышц глазного яблока (предушные миотомы).
Из регуляторных генов (1а), ответственных за детерминацию миобластов, первым был открыт ген MyoD. Поскольку трансфекция с MyoD может побудить другие клетки к преобразованию в миобласты в культуре ткани, MyoD считали мастер-геном, который включает все гены, необходимые для развития скелетных мышц.
Изучение трансгенных мышей, дефектных для MyoD, показало, однако, что MyoD — только один из всего семейства регуляторных генов. Регуляторный ген Myf-5 вовлечен в спецификацию миобластов в миотомы, а регуляторный ген MyoD вовлечен в терминальную дифференцировку мышечных трубочек. Myf-5 может действовать, активируя MyoD, который, в свою очередь, деактивирует Myf-5. Лиганды, взаимодействующие с этими факторами транскрипции, в настоящее время неизвестны (Hughes, 1992).
2. Миграция миобластов. Миграция миобластов в зачатки конечностей, очевидно, направляется определенной для сегмента комбинацией МКА. Гипотетически эта комбинация передается в виде информации о расположении (позиции) париетальным мезодермальным клеткам, двигающимся через зону роста, и впоследствии служит для направленного роста сегментарных нервных волокон.
В миотоме и в течение миграции миобласты, как и другие эмбриональные клетки, которые претерпевают морфогенетические изменения, экспрессируют мускариновые рецепторы ацетилхолина (2а). Возбуждение этих рецепторов ведет через ген ИФЗ к мобилизации внутриклеточного кальция, который, возможно, регулирует сокращение актин-миозиновых нитей в течение амебовидного движения.
3. Окончательная дифференцировка. В зачатке мышцы миобласты прекращают пролиферацию и начинают соединяться друг с другом. Многоядерные клетки дифференцируются в мышечные волокна. Мускариновый рецептор ацетилхолина исчезает, а никотиновый — появляется (3а). Некоторые оставшиеся миобласты между мышечными волокнами становятся клетками-сателлитами, которые активируются в случае повреждения мышцы для ее восстановления.
Когда мышечное волокно иннервируется нервным волокном, происходящим из того же самого сегмента, оно формирует концевую пластинку (3б), в которой сконцентрированы никотиновые рецепторы. Эндоплазматический ретикулум миобласта становится саркоплазматическим ретикулумом мышечного волокна. Клеточная мембрана инвагинирует, формируя систему Т-трубочек. Триада оккупируется рианодиновым рецептором, членом семейства генов ИФЗ, рецепторов эндоплазматического ретикулума.
Этот рецептор отвечает на потенциал действия, исходящий из концевой пластинки, вызывая освобождение кальция.
В течение дифференцировки миобластов все основные клеточные компоненты, от рецепторов до актин-миозиновых нитей, заменены специфическими (дифференцированными) вариантами из соответствующих семейств генов. Необходимый контакт между нервным и мышечным волокнами, достигнутый методом «проб и ошибок», обеспечивается длительным синтезом МКА (которые функционируют как трофические факторы).
Денервация приводит к потере концевых пластинок и к распределению никотиновых рецепторов по всей мембране мышечной клетки. Точно так же деструкция мышечного волокна вызывает дегенерацию нервного волокна.