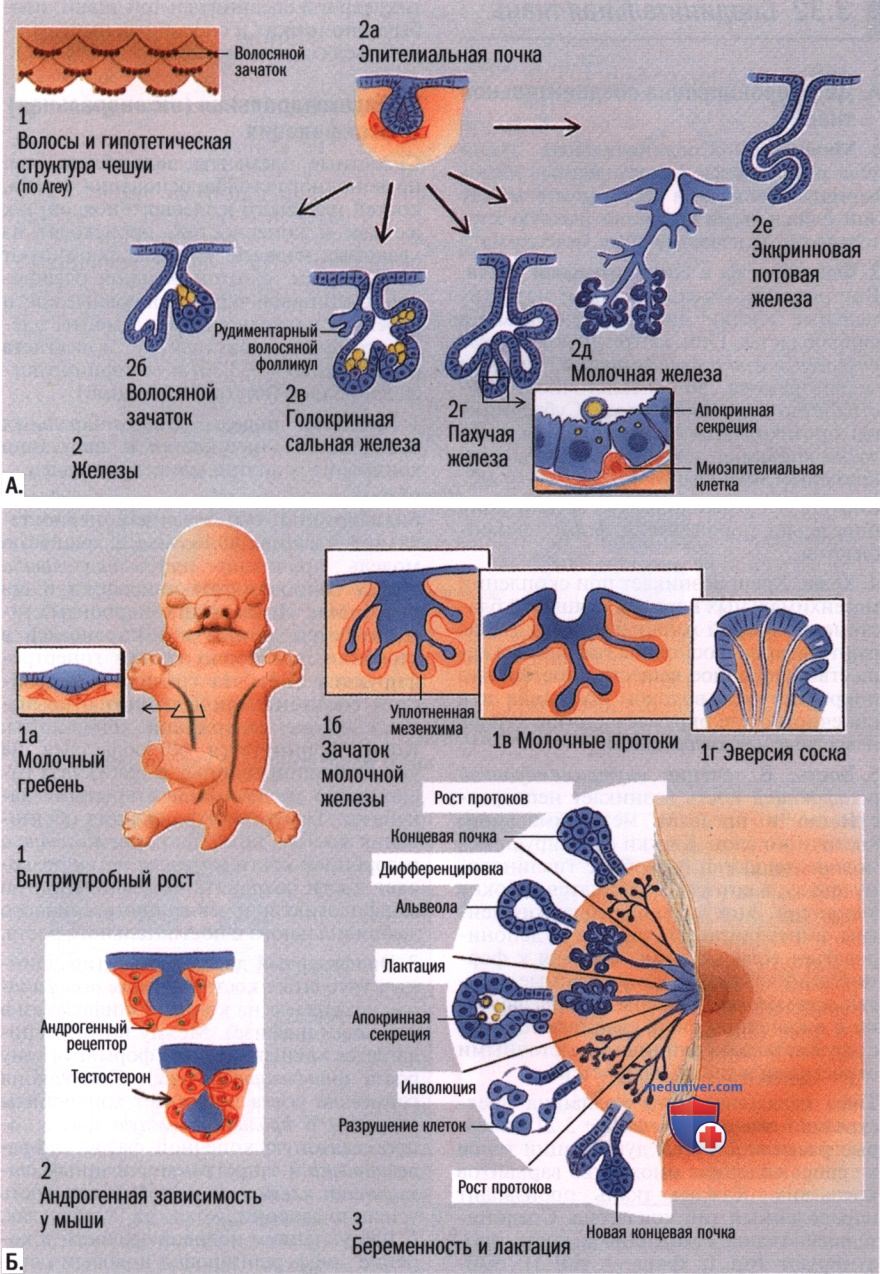
Дифференцировка эктодермальных желез в эмбрионе - кратко с точки зрения эмбриологии
А. Взимоотношения между эктодермальными железами. Б. Развитие и циклический рост молочной железы
А. Взимоотношения между эктодермальными железами:
1. Волосы и гипотетическая структура чешуи. Зубы образуются из чешуек низших позвоночных. У млекопитающих чешуйки исчезают как волосы, а образуются железы. На поверхностях, покрытых чешуей и волосами, наподобие хвоста опоссума, волосы растут между чешуйками. Они первоначально формируются в виде хорошо иннервированных осязательных волосков.
Строение зачатков волос в коже спины человеческого зародыша все еще демонстрирует ее первоначальную чешуйчатую структуру, хотя чешуя уже не образуется.
2. Железы. Эктодермальные железы, как и волосы, возникают в виде почек (2а) в эктодерме путем конденсации мезенхимы. Некоторые железы образуются из фолликулов волос (2б).
Голокринные сальные железы (2в) соска молочной железы, крайней плоти и век (Мейбомиевы железы) — это сальные железы, в которых отсутствует волосяной фолликул. Молочные железы (2д) образуются из пахучих (2г) желез, на что указывает их апокринная секреция и наличие миоэпителиальных клеток.
Трубчатые, неразвет-вленные эккриновые потовые железы (2е) — недавняя ступень эволюции, появившаяся сначала у приматов (Romer/ Parsons). Это развитие сопровождается редукцией оболочки волоса и увеличением подкожного жира, который теперь участвует в регуляции температуры.
Б. Развитие и циклический рост молочной железы:
1. Внутриутробный рост. Как и зубы, молочные железы возникают вдоль эпителиального гребня. Грудной гребень (1а) — приподнятое эктодермальное уплотнение, которое продолжается (в человеческом эмбрионе на стадии 18) от подмышечных впадин до паховой области. Этот гребень дает начало зачаткам (1б) молочных желез и позже регрессирует. Эпителиальные зачатки медленно врастают в подлежащую мезенхиму, формируя 15—20 молочных протоков (1в) с плотными конечными почками на их вершинах.
При канализации протоков поверхностный эпителий опускается в отверстие протока, которое эвагинирует незадолго до рождения (эверсия соска, 1г).
2. Андрогенная зависимость у мышей. У мышей, в отличие от человека, молочная железа уже в эмбриональном периоде в половом плане диморфна. Мезенхимальные клетки в уплотненной мезенхиме развивающейся молочной железы демонстрируют в своих ядрах андрогенные рецепторы. В эмбрионах мужского пола воздействие тестостерона «заставляет» мезенхимальные клетки в области шейки зачатка молочной железы сокращаться, что приводит к его сжатию и исчезновению.
3. Беременность и кормление грудью. После наступления половой зрелости женские стероидные гормоны (эстрогены) вызывают развитие подкожного жира в женской груди. В последующих циклах эстроген вызывает ускорение роста системы протоков (пролиферативная фаза), в то время как прогестерон вызывает обратимую дифференцировку терминальных почек (секреторная фаза). Рост протоков происходит путем пролиферации и ветвления компактных конечных почек. Структура ветвления определяется соединительной тканью
В течение первых двух третей беременности эстроген и гормон роста индуцируют экстенсивный рост протоков. В последней трети беременности под влиянием прогестерона и пролактина конечные почки дифференцируются в альвеолы (дифференцировка). Секреция молока (лактация) инициируется гормональной стимуляцией (окситоцин) и нервным возбуждением (кормление грудью).
После окончания кормления грудью вся секреторная ткань редуцируется (инволюция) и сохраняется только система протоков. Она содержит обширные сегменты недифференцированных эмбриональных клеток, от которых появляются новые конечные почки в течение продолжающихся циклов и во время последующих беременностей. Существование эмбриональных клеток с пролиферативным потенциалом внутри системы протоков молочной железы объясняет, почему эти органы так восприимчивы к злокачественному росту.