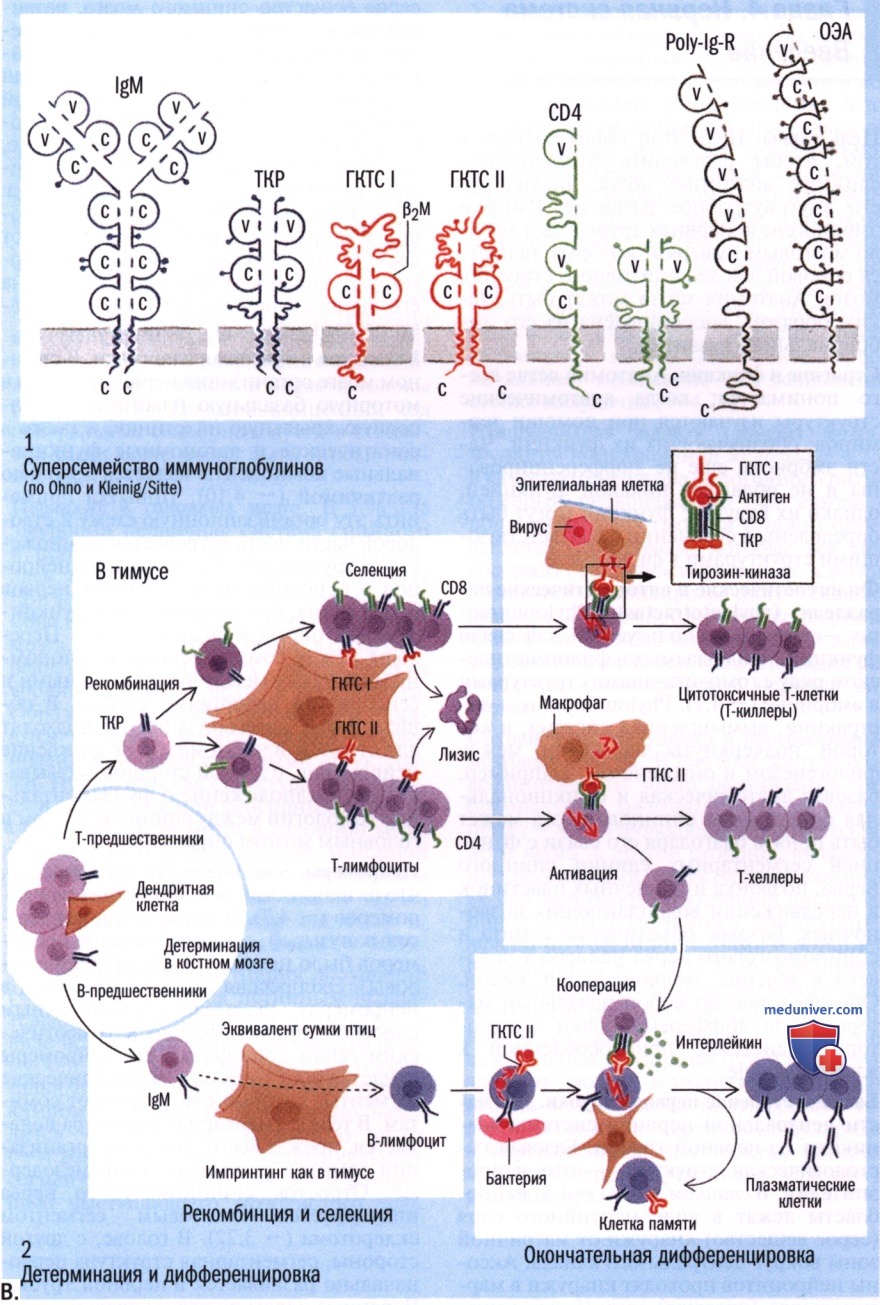
Дифференцировка иммуноглобулинов лимфоцитов в эмбрионе - кратко с точки зрения эмбриологии
В. Детерминация и дифференцировка лимфоцитов
В. Детерминация и дифференцировка суперсемейства иммуноглобулинов лимфоцитов:
Суперсемейство иммуноглобулинов происходит из гликопротеина клеточной мембраны. Мембраносвязанные члены связаны с молекулами клеточной адгезии (МКА) типа селектинов. Вместе с факторами роста лимфатической системы, цитокинами, они — наиболее изученные примеры молекул, которые вызывают детерминацию и дифференцировку. Полностью зрелая молекула иммуноглобулина М (IgM) локализуется в клеточной мембране В-лимфоцитов и функционирует как рецептор для антигенов. Т-клеточный рецептор (ТКР) — соответствующий рецептор в мембране Т-лимфоцитов.
Комплекс тканевой совместимости (ГКТС, «главный комплекс тканевой совместимости») закодирован для антигенов, вовлеченных в иммунологическое распознавание. ГКТС I выявлен во всех клетках, ГКТС II — только в антиген-презентирующих макрофагах, дендритных клетках и лимфоцитах. Предковый ген, вероятно, закодировал белок с субъединицей (доменом) β2M-микроглобулинового (β2М) типа.
В ходе эволюции произошла репликация субъединиц внутри гена и повторная дупликация всего гена, которые дали начало суперсемейству генов иммуноглобулинов CD4 и CD8, молекулы которых характеризуют линию стволовых клеток. CD4 выражен на Т-хелперах, а CD8 — на цитотоксических Т-клетках (Т-киллерах). Все гемопоэтические стволовые клетки характеризуются CD-детерминантами (кластеры дифференцировки).
Poly-Ig-рецептор — мембранный белок, используемый в плаценте для межклеточного транспорта антител матери к плоду. Опухолевый эмбриональный антиген (ОЭА) встречается в раковых клетках желудочно-кишечного тракта и в эмбриональной энтодерме. Как маркерный ген опухоли, он используется в диагностике опухолей. Его функция неизвестна.
- Детерминация и дифференцировочная детерминация в костном мозге. Как и стволовые клетки лимфопоэза, дендритные клетки и макрофаги поступают в лимфатические узлы из костного мозга. Там прямой контакт между этими клетками может определить детерминирующие факторы для более позднего «хоминга» в лимфатических органах.
Дифференцировка в тимусе. Предшественники Т-клеток мигрируют в тимус. В течение этого «хоминга» CD7 функционирует как МКА. После соматической рекомбинации в переменной области рецепторного гена Т-клетки каждый лимфоцит выражает индивидуальный рецептор Т-клетки. Дифференцировка сопровождается селекцией. В этом процессе характерные детерминанты поверхности клеток человека представлены в тимусе комплексом ГКТС на эпителиоцитах (КТС I) и дендритных клетках (КТС II).
Все Т-лимфоциты, которые обладают рецепторами Т-клеток, распознающими эндогенные детерминанты, устраняются аутолизом. Незрелые Т-клетки все еще несут оба детерминанта — факторы CD4 и CD8. Соединение их с ГКТС I вызывает дифференцировку CD8-положительных цитостатических Т-клеток, в то время как соединение с ГКТС II вызывает этот процесс у CD4-положительных Т-хелперов. Дифференцировка В-лимфоцитов аналогично имеет место в костном мозге (эквиваленте сумки птиц).
- Окончательная дифференцировка. Лимфоциты мигрируют в зоны Т-клеток и В-клеток лимфатических органов. Окончательная дифференцировка вызывается контактом с антигеном (вставка). После «процессинга» антиген располагается в бороздке на поверхности белка ГКТС. Рецептор лимфоцита соединяется с антигеном, a CD4- или CD8-моле-кулы с ГКТС II или ГКТС I. CD-детерминанты и рецептор Т-клетки связываются с тирозин-киназой семейства src-онкогена. Активация инициирует секрецию факторов роста (интерлейкинов), которые определяют клоновую пролиферацию.
В-клетки в конечном счете дифференцируются в плазмоциты, которые секретируют IgG или IgA. Для активации В-клеток необходимо их взаимодействие с Т-хелперами. В-клетки представляют антиген ГКТС II Т-хелперам, которые индуцируют клоновую экспансию В-клеток путем секреции интерлейкинов. «Клетки памяти», сохраненные после первичной реакции, соответствуют детерминированной стволовой клетке «резерва», имеющейся в других тканях.