Гипоталамические нейропептиды в ЦНС, подавляющие потребление пищи - по руководству США
Как центр, объединяющий энергетический гомеостаз, гипоталамус также является источником нейропептидов, которые подавляют процесс потребления пищи и активируют чувство насыщения. Гипоталамические анорексигенные агенты включают меланокортины, кокаин-амфетамин-регулируемый транскрипт (КАРТ) и серотонин.
а) Меланокортины. Меланокортины образуются в процессе сайт-специфического посттрансляционного расщепления предшествующей родительской молекулы ПОМК. Расщепление ПОМК в передней части гипофиза приводит к повышению уровня адренокортикотропного гормона, который оказывает действие через рецептор меланокортина 2, стимулируя надпочечниковый стероидогенез.
В мозге ПОМК расщепляется до меланокортина α-меланоцитстимулирующего гормона, который является агонистом рецепторов меланокортина 3 и 4. Введение а-меланоцитстимулирующего гормона (интрацеребровентрикулярно) грызунам приводит к потере веса путем подавления процесса потребления пищи и стимуляции расходования энергии (Нири и соавт., 2004).
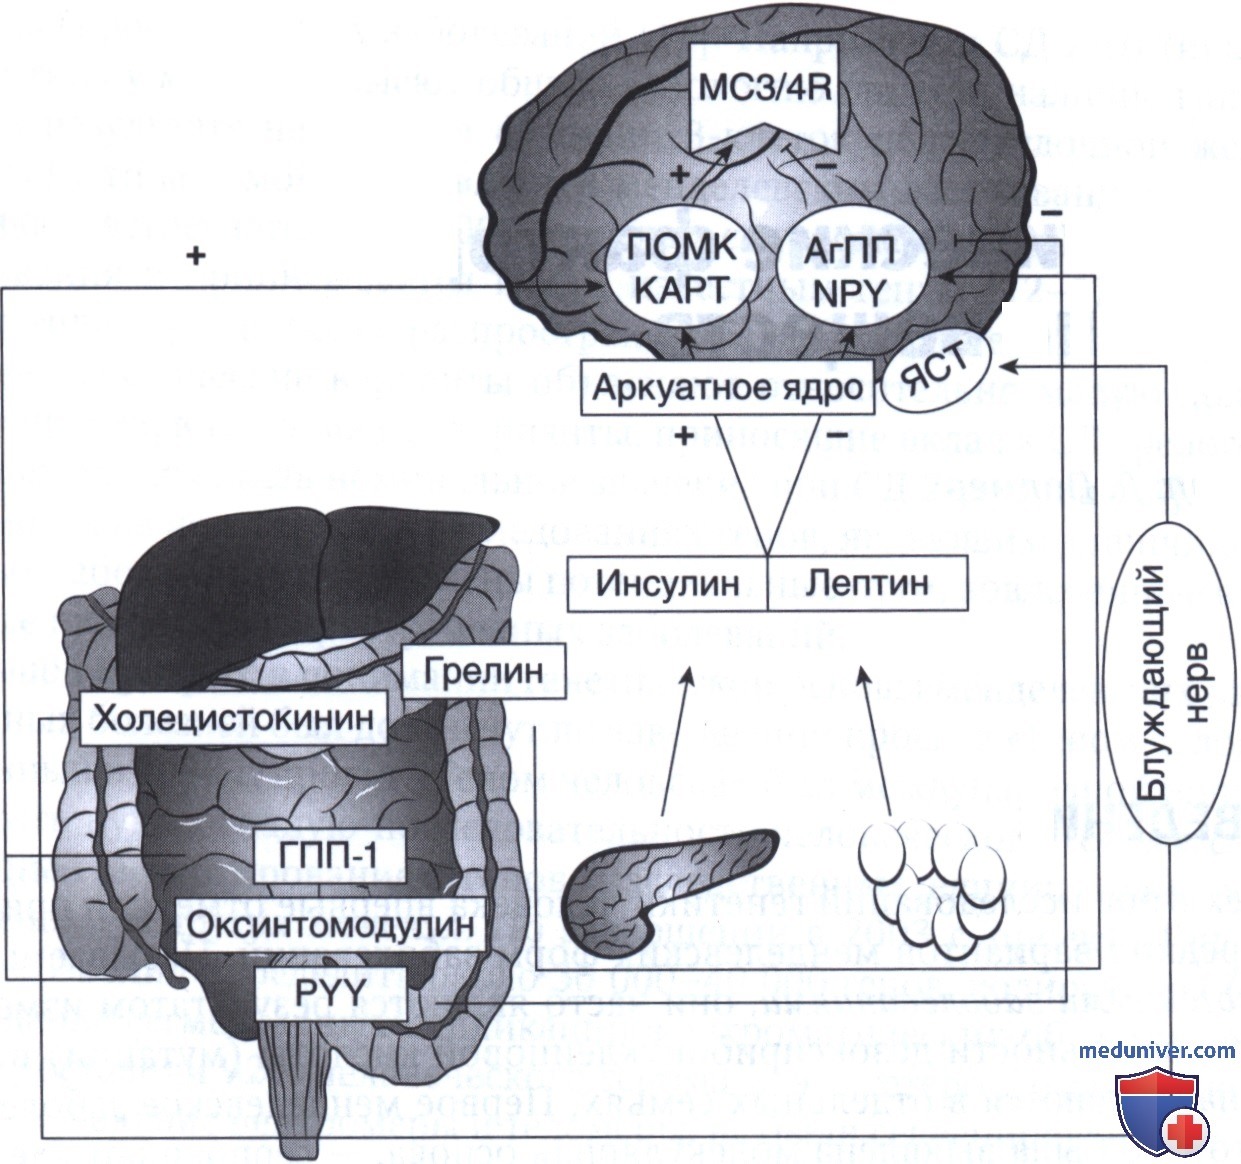
Это влияние опосредовано активацией двух подтипов нейрональных рецепторов металокортина 3 и 4, а смежные гипоталамические нейроны, экспрессирующие АгПП и NPY, являются антагонистами. Таким образом, рецептор меланокортина 4 играет ключевую роль в регуляции массы тела. Нейроны NPY/АгПП ингибируются лептином и инсулином.
Общая физиология взаимодействия этих противодействующих нейропептидов очевидна при их связанных с массой тела изменениях. Вслед за потерей веса снижение уровней инсулина и лептина ведут к активации NPY/АгПП-нейронов и ингибированию ПОМК-нейронов (Флайер, 1998; Шварц и соавт., 2000). Эти контррегуляторные изменения вызывают увеличение потребления пищи и накопление жировой ткани.
Дефекты сигнального пути меланокортина, подобные тем, что наблюдались у трансгенных мышей с целенаправленным повреждением рецептора меланокортина 4 (нокаутные мыши), приводят к перееданию и ожирению (Хасзар и соавт., 1997). Достаточно распространенная функциональная мутация человеческого рецептора меланокортина 4 была выявлена у пациентов с тяжелым ожирением в детском возрасте (Фаруки и соавт., 2000).
Следует заметить, что, хотя у большинства пациентов с ожирением не наблюдается мутаций рецептора меланокортина 4, для некоторых пациентов терапия, направленная на активацию путей меланокортина 4, в перспективе может принести положительные результаты. В то время как интраназальное введение фрагмента меланокортина (меланоцитстимулирующего гормона/адренокортикотропного гормона 4-10) выглядело многообещающим в этом отношении, меланоцитстимулирующий гормон/адренокортикотропный гормон 4-10 не оказали анорексигенного эффекта на людей с ожирением, несмотря на незначительное снижение массы тела у людей с нормальной массой тела (Фэм и соавт., 2001; Халшмид и соавт., 2006).
Использование более селективного агониста рецептора меланокортина 4 (МК-0493) также не принесло результатов в снижении массы тела у людей с ожирением (Кришна и соавт., 2009). Однако недавно разработанный агонист рецептора меланокортина 4 (RM-493) может оказаться более перспективным. Исходя из последних данных можно предположить, что он способен эффективно увеличить основной обмен у взрослых с ожирением (Чен и соавт., 2015).
Гипоталамус и ствол мозга являются ключевыми регуляторами аппетита, объединяющими различные гормональные сигналы от адипоцитов (лептин), поджелудочной железы (инсулин) и желудочно-кишечного тракта [глюкагоноподобный пептид 1 (ГПП-1), пептид YY (PYY), оксинтомодулин, холецистокинин, грелин] с целью регуляции энергетического баланса. И инсулин, и секретируемый адипоцитами гормон лептин снижают потребление пищи посредством действия на аркуатное ядро гипоталамуса, стимулируя проопиомеланокортин-нейроны и ингибируя агутиподобные пептид-нейроны (АгПП), приводя к повышению сигнала рецептора меланокортина (MC3/4R). ГПП-1 и оксинтомодулин высвобождаются из L-клеток кишечника вслед за поступлением питательных веществ и ограничивают потребление пищи. ГПП-1 напрямую стимулирует проопиомеланокортин/ кокаин-амфетамин-регулируемые транскрипт-нейроны (ПОМК/КАРТ), подавляя аппетит. Пептид YY снижает аппетит путем торможения агутиподобных пептид-нейронов и стимуляции проопиомеланокортин-нейронов. Пищеварительный гормон — холецистокинин, высвобождающийся преимущественно из энтероэндокринных клеток двенадцатиперстной кишки в ответ на поступление питательных веществ и растяжение внутренних органов, стимулирует насыщение через афферентные пути блуждающего нерва, входящие в ядро солитарного тракта (ЯСТ) заднего мозга
б) Кокаин-амфетамин-регулируемый транскрипт. Экспрессия КАРТ широко представлена в мозге, особенно в гипоталамических ядрах и передней части гипофиза. В пределах аркуатного ядра ПОМК локализован в нейронах, которые также экспрессируют КАРТ. Введение КАРТ (1-100 пмоль, интрацеребровентрикулярно) приводит к дозозависимому подавлению процесса потребления пищи у крыс. Эффект появлялся в течение 20 мин и продолжался примерно 4 ч.
Уменьшение потребления пищи вследствие терапии КАРТ сопровождалось торможением эвакуации желудочного содержимого и уменьшением потребления кислорода. Аркуатные ПОМК/КАРТ-нейроны работают как нижележащие эффекторы анорексигенного действия лептина и более заметно стимулируются его интрацеребровентрикулярными инъекциями (Коули и соавт., 2001). Взаимодействие между КАРТ и системой эндогенных опиоидов, серотонинергической (Ротман и соавт., 2003) и каннабиоидной (Кота и соавт., 2003) системами обеспечивает дополнительные механизмы анорексигенных эффектов КАРТ.
в) Серотонин. Производное аминокислоты 5-гидрокситриптамин (серотонин) обладает активным нейротрансмиттерным действием на многочисленные мишени центральной нервной системы (ЦНС) (Бланделл, 1984). Рецептор 5-гидрокситриптамина широко представлен в областях, включающих лимбическую систему, ядро шва мозга и гипоталамус. Активация рецепторов 5-гидрокситрипта-мина (в особенности подтипа 2) связана с торможением процесса потребления пищи. Похожий анорексигенный эффект наблюдается при накоплении запасов серотонина через ингибирование его захвата.
Напротив, исследования на грызунах показали, что делеция гена рецептора 5-гидрокситриптамина подтипа 2 приводит к выраженному перееданию (Текотт и соавт., 1995). К сожалению, клинический опыт использования селективных ингибиторов обратного захвата серотонина свидетельствует о незначительном и противоречивом влиянии их на массу тела, что указывает на преобладание более мощных орексигенных импульсов над серотонинергическим путем в нормальных физиологических условиях.
Тем не менее сибутрамин, селективный агонист серотонинового 2С-рецептора является эффективным лекарственным препаратом для снижения массы тела (сибутрамин* не используется с 2010 г. по причине увеличения риска сердечно-сосудистых событий).
P.S. * Сибутрамин отозван в США и Европе, в РФ он зарегистрирован и используется в качестве средства лечения ожирения (входит в клинические рекомендации).
В то время как серотонинергические эффекты на прием пищи когда-то считались опосредованными, в первую очередь центральными путями 5-гидрокситриптамина, в последних исследованиях с использованием генетических моделей мышей подчеркнули важность системы меланокортина в управлении анорексигенным эффектом 5-гидрокситриптамина. Было показано, что серотонин влияет на насыщение путем торможения активности АгПП-нейронов и уменьшения подавляющего влияния ПОМК-нейронов через активацию 1В-рецептора серотонина (Хейслер и соавт., 2006).
Показано также, что 2С-рецепторы серотонина на ПОМК-нейронах играют роль в управлении способностью серотонина подавлять процесс потребления пищи (Сюй и соавт., 2008). Лоркасерин, агонист 2С-рецептора серотонина, был одобрен Управлением по контролю качества пищевых продуктов и лекарственных средств (Food and Drug Administration — FDA) для лечения ожирения в 2012 г.
г) Нейротрофический фактор головного мозга. Нейротрофический фактор головного мозга (brain-derived neurotrophic factor — BDNF) относится к семейству секретируемых пептидов нейротрофинов, действующих на рецептор тирозинкиназы В, который активирует фосфорилазу С с γ-каталитической субъединицей, митогенактивируемую протеинкиназу и фосфатидилинозитол-3-киназу через внутриклеточные сигнальные пути (Рейхардт, 2006). В то время как нейротрофины являются наиболее изученными в рамках их влияния на жизнеспособность и дифференцировку нейронов (Чао, 2003), существуют данные в пользу важной роли BDNF в энергетическом гомеостазе.
При центральном введении BDNF наблюдали уменьшение массы тела у грызунов (Лапчак и Хэфти, 1992), а уменьшение уровня BDNF у гетерозиготных по гену BDNF мышей было ассоциировано с увеличением потребления пищи и ожирением (Лайонс и соавт., 1999). Подобным образом уменьшение сигнала BDNF вследствие утраты функционального аллеля BDNF (Грэй и соавт., 2006) или de novo мутации в гене рецептора тирозинкиназы В (Йео и соавт., 2004) ассоциировано с перееданием и ожирением у людей. Более того, крупномасштабные полногеномные ассоциативные исследования однонуклеотидных полиморфизмов в гене BDNF были связаны с ожирением (Хотта и соавт., 2009; Торлейфсон и соавт., 2009).
Роль BDNF как анорексигенного фактора подкрепляется исследованиями на грызунах, демонстрирующими уменьшение экспрессии BDNF гипоталамусом при голодании и увеличение экспрессии гена BDNF после введения глюкозы или агонистов меланокортина (Сюй и соавт., 2003; Унгер и соавт., 2007). Продолжающиеся исследования, призванные осветить роль BDNF в энергетическом балансе, могут привести к пониманию механизмов, которые могут быть использованы для разработки новых стратегий лечения ожирения в будущем. Ниже приведен список орексигенных и анорексигенных центральных нейропептидов.