Гипоталамические нейропептиды в ЦНС, стимулирующие потребление пищи - по руководству США
Регуляция энергетического обмена важна для выживания любого вида. В связи с этим развивались сложные поведенческие, метаболические и нейроэндокринные механизмы, чтобы объединить поглощение и рассеивание энергии. Требуется тонкий баланс между поглощением и расходованием энергии, чтобы поддерживать здоровый вес.
Возможно, по телеологическим причинам механизмы, которые регулируют энергетический гомеостаз, более склонны к поддержанию положительного энергетического баланса и направлены в большей степени на защиту от потери массы тела, чем на предотвращение ожирения, поэтому спонтанная потеря веса в отсутствие заболевания происходит редко, а опыт прогрессирующего набора массы тела у людей является распространенным.
Адаптационные способности, которые защищают от потери массы тела, в конце концов становятся неадаптивными, когда появляется ожирение и связанные с ним метаболические и сердечно-сосудистые осложнения, как это происходит в наше время (Брэй, 1996; Флегал и соавт., 2002). По сути, ожирение означает хронический дисбаланс между потреблением пищи и энергетическими затратами.
Общий расход энергии включает основной обмен, или расход энергии в покое, термический эффект пищи, необходимую физическую активность повседневной жизни и произвольную физическую активность или тренировки (Макдональд, 1998). Вклад термического эффекта пищи и активности повседневной жизни в общий расход энергии довольно незначительный, а уровень произвольной физической активности является низким повсеместно среди человечества, поэтому большинство людей расходует энергию за счет основного обмена.
Основной обмен снижается с возрастом, что объясняет тенденцию к положительному энергетическому балансу и ожирению у пожилых людей. Общий расход энергии также положительно коррелирует с площадью поверхности тела и выше при ожирении, чем у стройных людей. Однако компенсация основного обмена при ожирении неэффективна в плане стимулирования снижения массы тела или восстановления нормальной массы тела.
Таким образом, основной обмен, главный компонент расхода энергии для большинства малоподвижных людей, на практике оказывается немодифицируемым фактором энергетического гомеостаза, а ограничение употребления пищи и произвольные физические упражнения являются основной стратегией эффективного контроля массы тела.
а) Аппетит и насыщение. «Приносящей» ветвью петли энергетического гомеостаза является потребление пищи. Прием пищи запускается аппетитом и ограничивается насыщением. Голод — это физиологический ответ на аппетит, в то время как прекращение приема пищи происходит в ответ на сигналы насыщения. Точные механизмы контроля первичных инстинктов аппетита и голода остаются до конца не понятными.
Известно, однако, что множество поведенческих, средовых, когнитивных и ситуационных факторов могут изменять ответ на голод. Так, аппетит пробуждает голод, но позже может быть скорректирован или подавлен, чтобы отсрочить прием пищи до более подходящего времени. Схожим образом некоторые органические или психические расстройства ассоциированы с изменением аппетита. В настоящем обзоре внимание сосредоточено на нейрогуморальной регуляции питания, а также предпринята попытка объединить перспективные экспериментальные открытия, сделанные при проведении исследований на грызунах, с настоящими и будущими направлениями исследований метаболизма человека и разработки медикаментов для лечения ожирения.
б) Локализация пищевого центра в центральной нервной системе (ЦНС). Для регулирования энергетического гомеостаза гипоталамус объединяет различные сигналы, включая нейротрансмиттеры головного мозга, периферические нейрогуморальные сигналы, сигналы, поступающие от адипоцитов, гастроинтестинальные пептиды и др. Медиальная область гипоталамуса, которая включает вентромедиальное и аркуатное ядра, играет решающую роль в регуляции энергетического баланса.
Аркуатное ядро, расположенное в основании гипоталамуса, вмещает в себя две хорошо описанные нейрональные популяции, включая нейроны с проопиомеланокортином (ПОМК) и нейропептидом Y/агутиподобным пептидом (АгПП), которые важны для регуляции питания. Эти нейроны экспрессируют рецепторы гормонов и нейропептидов и отвечают на периферические изменения энергетического баланса (Шварц и соавт., 2000). Паравентрикулярное ядро в передней части гипоталамуса, главная зона секреции кортикотропин-рилизинг-гормона и тиреотропин-рилизинг-гормона, получает большое количество проекций от аркуатного ядра.
Паравентрикулярное ядро включено в объединение паракринных и эндокринных метаболических сигналов с классическими нейроэндокринными путями, опосредуемыми щитовидной и гипоталамо-гипофизарно-надпочечниковой осями. В дополнение к этим ядрам ствол головного мозга также играет роль в регуляции аппетита, обработке сигналов насыщения, которые появляются вследствие приема пищи, афферентными волокнами блуждающего нерва, которые преобразуются в ядре солитарного тракта в области заднего мозга (Уильямс и соавт., 2001). Нервные волокна, идущие от ядра солитарного тракта в паравентрикулярное ядро и латеральную область гипоталамуса, связывают ствол мозга с гипоталамусом (Грилл и Хэйс, 2012).
Однако исследования на децеребрированных крысах, у которых связь между задним и передним мозгом была прервана, продемонстрировали, что ствол мозга может независимо контролировать размер порции в ответ на такие сигналы насыщения, как холецистокинин (ХЦК), показывая, что задний и передний мозг оба могут вносить вклад в энергетический баланс (Грилл и Смит, 1988).
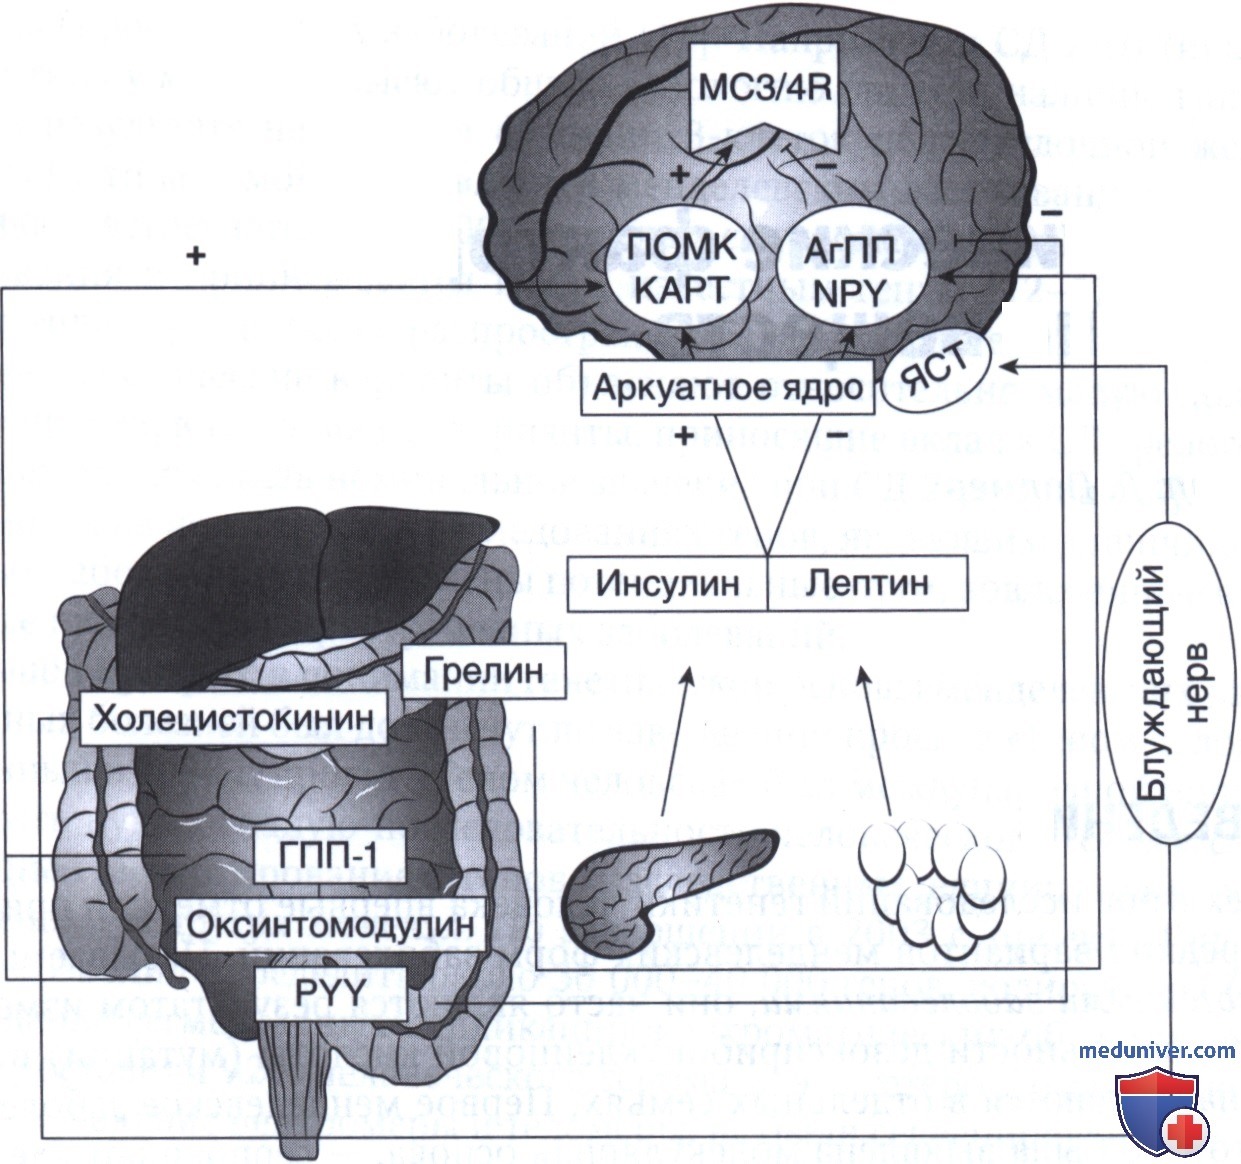
Гипоталамус и ствол мозга являются ключевыми регуляторами аппетита, объединяющими различные гормональные сигналы от адипоцитов (лептин), поджелудочной железы (инсулин) и желудочно-кишечного тракта [глюкагоноподобный пептид 1 (ГПП-1), пептид YY (PYY), оксинтомодулин, холецистокинин, грелин] с целью регуляции энергетического баланса. И инсулин, и секретируемый адипоцитами гормон лептин снижают потребление пищи посредством действия на аркуатное ядро гипоталамуса, стимулируя проопиомеланокортин-нейроны и ингибируя агутиподобные пептид-нейроны (АгПП), приводя к повышению сигнала рецептора меланокортина (MC3/4R). ГПП-1 и оксинтомодулин высвобождаются из L-клеток кишечника вслед за поступлением питательных веществ и ограничивают потребление пищи. ГПП-1 напрямую стимулирует проопиомеланокортин/ кокаин-амфетамин-регулируемые транскрипт-нейроны (ПОМК/КАРТ), подавляя аппетит. Пептид YY снижает аппетит путем торможения агутиподобных пептид-нейронов и стимуляции проопиомеланокортин-нейронов. Пищеварительный гормон — холецистокинин, высвобождающийся преимущественно из энтероэндокринных клеток двенадцатиперстной кишки в ответ на поступление питательных веществ и растяжение внутренних органов, стимулирует насыщение через афферентные пути блуждающего нерва, входящие в ядро солитарного тракта (ЯСТ) заднего мозга
в) Гипоталамические нейропептиды, стимулиющие пищевую активность. Гипоталамические сигналы, вызывающие аппетит, включают NPY, АгПП и гипокретины/орексины.
1. Нейропептид Y. NPY — полипептид, состоящий из 36 аминокислот, который мгновенно стимулирует прием пищи при интрацеребровентрикулярном введении у грызунов. Эффекты стимуляции аппетита NPY приводят к стабильному перееданию и набору массы тела у мышей, постоянно получающих такие интрацеребровентрикулярные инъекции. Специфичность эффекта NPY была доказана в исследованиях, в которых одновременно вводили антагонисты NPY или антитела к нему, оба из которых сдерживали прием пищи у крыс (Карла и соавт., 1999).
Роль NPY как центрального физиологического триггера приема пищи предполагается исследованиями, демонстрирующими стремительный рост экспрессии гипоталамического NPY в паравентрикулярное ядро до приема пищи и наличием экспрессии гена NPY на протяжении периода поддержания чувства голода. Стимулирующее аппетит действие NPY опосредуется взаимодействием с Y1- и Y5-рецепторами (Генри и соавт., 2005). NPY также оказывает разнообразные эффекты, которые увеличивают активность гипоталамо-гипофизарно-надпочечниковой системы, усиливая стрессовый ответ, и меняют порог судорожной активности (Бэк, 2006), что, очевидно, является ограничивающим фактором прямого применения NPY для лечения кахексии и пищевых расстройств.
Интересно, что экспрессия NPY в аркуатном ядре является потенциальным антагонистом анорексигенного гормона лептина, как и инсулина. Более того, активация рецептора подтипа Y2 на нейронах NPY запускает ингибирующие пресинаптические сигналы, вследствие чего центральное введение пептида YY (peptide YY — PYY3-36, агонист рецептора Y2, секретируемого эндокринными L-клетками тонкого кишечника) в аркуатное ядро вызывает заметное торможение приема пищи. Кроме того, нокаутные по гену рецептора Y2 мыши теряют способность реагировать на анорексигенный эффект PYY3-36 (Баттерхам и соавт., 2002). Многолетний интерес к терапевтическому потенциалу антагонизма NPY был возрожден с открытием агонистов рецепторов Y2R и Y4R и антагонистов Y5R.
На сегодняшний день при проведении клинических исследований на людях воздействие этой маленькой молекулы ограничено по причине побочных эффектов или недостаточной эффективности (Бразерс и Вахлестедт, 2010).
2. Агутиподобный пептид. АгПП экспрессируется исключительно в аркуатном ядре гипоталамуса и локализован в тех же нейронах, которые секретируют NPY (Гольдстоун и соавт., 2002). Несколькими докладами было подтверждено, что введение АгПП эффективно усиливает аппетит у грызунов, центральное введение АгПП приводит к увеличению потребления пищи до 7 дней (Росси и соавт., 1998). В противоположность мощному, но относительно кратковременному эффекту NPY продолжительное введение АгПП приводит к постоянному перееданию и ожирению (Смолл и соавт., 2001).
АгПП стимулирует аппетит путем антагонизма эффекту пептида а-меланоцитстимулирующего гормона, предшественником которого является ПОМК, на рецепторы меланокортина 3 и 4, увеличивая потребление пищи и снижая расход энергии.
Аркуатные нейроны, которые секретируют NPY и АгПП, стимулируются голоданием и эффективно подавляются лептином и инсулином (Брин и соавт., 2005). Было обнаружено несколько других важных регуляторов экспрессии АгПП. Глюкокортикоиды влияют на экспрессию АгПП, что было показано в ходе исследований на грызунах, продемонстрировавших снижение экспрессии АгПП после адреналэктомии и восстановление экспрессии при заместительной терапии глюкокортикоидами (Савонтос и соавт., 2002). Было показано, что кишечный гормон грелин стимулирует экспрессию гена АгПП в акруатном ядре, а орексигенный эффект грелина частично опосредован NPY/АгПП (Чен и соавт., 2004).
3. Гипокретины/орексины. Гипоталамические пептиды гипокретин-1 или гипокретин-2 были открыты в 1998 г. при помощи субтрактивной полимеразной цепной реакции (Де Леча и соавт., 1998). В этом же году Сакурай и соавт. (1998) открыли гомологичные гипоталамические пептиды, названные орексином 1 и 2, и было показано их мощное стимулирующее влияние на прием пищи у крыс (Сакурай и соавт., 1998). Гипокретины/орексины стимулируют потребление пищи у грызунов, этот эффект блокируется путем нейтрализации антител к эндогенным гипокретинам (Уилли и соавт., 2001).
В дополнение к прямой стимуляции приема пищи гипокретины/орексины могут также влиять на энергетический гомеостаз другими путями. Например, уровень гипокретина растет в ответ на физическую нагрузку, нейрогликопению и вынужденное бодрствование (Нишино, 2003). Гипокретин-секретирующие нейроны локализованы исключительно в латеральном гипоталамусе, области головного мозга, которая, как давно известно, объединяет пищевые сигналы. Несмотря на интригующую роль в качестве модуляторов пищевого поведения, интерес к гипокретинам/орексинам сместился в сторону их влияния на регуляцию сна, когда гены гипокретинов/орексинов были найдены в локусах нарколепсии (Чемелли и соавт., 1999; Лин и соавт., 1999).
Зафиксированные мутации в человеческих генах гипокретинов/орексинов встречаются редко среди пациентов с расстройствами сна, однако около 90% пациентов с нарколепсией-катаплексией имеют субнормальный уровень гипокретина в цереброспинальной жидкости (Нишино и соавт., 2001).
Последняя находка не согласуется с первичной орексигенной ролью гипокретинов/орексинов как механизма увеличения распространенности ожирения, инсулинорезистентности и сахарного диабета (СД) 2-го типа среди пациентов с нарколепсией (Нишино и соавт., 2001). Эти метаболические расстройства в большей степени являются результатом гиподинамии, связанной с нарколепсией.
Однако следует отметить, что система «гипокретин-орексин» обладает центральным действием в качестве главного интегратора возбуждающих импульсов от моноаминергических (дофамин, норэпинефрин, серотонин, гистамин) и холинергических волокон, которые поддерживают состояние бодрствования, в том числе активного (Тахери и соавт., 2002). Таким образом, помимо прямой стимуляции аппетита, гипокретины/орексины могут оказывать метаболические эффекты через регуляцию центральных проводящих путей вегетативной нервной системы.
Однако гипокретины/орексины являются менее привлекательными кандидатами для разработки лекарственных средств, поскольку их влияние на пищевое поведение не такое мощное и последовательное по сравнению с орексигенными эффектами NPY.