Адипоцитокины и лептин как регуляторы потребления пищи (пищевого поведения) - по руководству США
а) Сигналы, опосредуемые адипоцитами. Появляется все больше и больше литературных источников о роли нескольких продуктов секреции адипоцитов [включая свободные жирные кислоты (СЖК), адипоцитокины и лептин] в регуляции экономии субстратов метаболизма, энергетического баланса, обмена глюкозы, потребления пищи и массы тела. Такие продукты, как СЖК, долгое время рассматривались в качестве медиаторов ассоциированной с ожирением инсулинорезистентности и нарушений углеводного обмена (Рэндл и соавт., 1988; Паолиссо и соавт., 1998; Унгер, 1995; Лааксонен и соавт., 2002) - все это подробно разбирается в отдельной статье на сайте (просим Вас пользоваться формой поиска по сайту выше.
б) Адипоцитокины. Адипоцитокин фактор некроза опухоли (ФНО) α, также известный как кахектин из-за его связи с кахексией и похудением, является медиатором инсулинорезистентности и секретируется в больших количествах адипоцитами у пациентов с ожирением (Хотамислигил и соавт., 1993, 1994, 1996; Керн и соавт., 1995; Норман и соавт., 1995; Моллер, 2000). Другие циркулирующие и вырабатываемые жировой тканью провоспалительные цитокины также включены в патогенез ассоциированных с ожирением инсулинорезистентности и СД (Гримбл, 2002; Фриман и соавт., 2002).
С другой стороны, адипонектин секретируется огромным количеством жировых клеток у людей, чувствительных к инсулину, и находится в дефиците у людей с ожирением или инсулинорезистентностью (Стефан и соавт., 2002). Таким образом, множество продуктов секреции жировой ткани служат маркерами, сигналами или модуляторами энергетического баланса, экономии энергетического субстрата, промежуточного обмена, регуляции обмена глюкозы и других метаболических событий, которые перекликаются с приемом пищи и поддержанием массы тела.
Из этого множества продуктов секреции жировой ткани лептин, возможно, лучше всего описан в контексте его роли в регуляции пищевого поведения и связанных с ним механизмов.
в) Лептин. Позиционное клонирование гена мыши ob) и его человеческого гомолога (Чжан и соавт., 1994) представляет собой главную веху в изучении ожирения. Две отдельные мутации гена ob приводят к преждевременному появлению стоп-кодона или полному отсутствию матричной рибонуклеиновой кислоты (мРНК) ob у ob/ob мышей (Чжан и соавт., 1994). Итоговое отсутствие нормального продукта гена ob приводит к перееданию, выраженному ожирению, задержке полового созревания (Чехаб и соавт., 1996) и дефектам иммунной системы (Матарезе, 2000) у ob/ob мышей.
У человека ген ob или 1ер транскрибируется и транслируется в белок, секретируемый главным образом белой жировой тканью, но активность может также наблюдаться в бурой жировой ткани, эпителиальных клетках желудка и плаценте (Масузаки и соавт., 1997; Бадо и соавт., 1998). Уровень циркулирующего лептина повышается при кормлении, снижается в период голодания или вследствие потери массы тела и изменяется под действием множества гормональных и физиологических факторов (Кремплер и соавт., 2000; Пэйдж-Уилсон и соавт., 2017).
Наследственность, отягощенная выраженным ожирением в детском возрасте, ассоциированная с делецией нуклеотида гуанина в 133 кодоне человеческого гена lер, была первым примером врожденного дефицита лептина, идентифицированного у человека (Монтэг и соавт., 1997). В роду жителей Турции также была идентифицирована миссенс-мутация гена 1ер в 105 кодоне (Стробел и соавт., 1998).
Три пациента (две женщины, один мужчина), гомозиготных по данной мутации, имели фенотип, характеризующийся гиполептинемией, заметной гиперфагией, выраженным ожирением и гипоталамическим гипогонадизмом. Кроме этих редких случаев, связь распространенных форм ожирения людей с известными мутациями в гене 1ер не доказана (Консидайн и соавт., 1995; Маффи и соавт., 1996). Лечение рекомбинантным лептином приводит к заметному снижению потребления пищи и значительному снижению веса у ob/ob мышей (Халаас и соавт., 1995; Пэллимонтер и соавт., 1995; Кэмпфилд и соавт., 1995; Вэйгл и соавт., 1995; Чехаб и соавт., 1996; Матарезе, 2000).
Терапия лептином также необычайно эффективна в коррекции ожирения у людей с врожденным дефицитом лептина (Пэллимонтер и соавт., 1995; Фаруки и соавт., 1999, 2002; Личинио и соавт., 2004).
1. Механизм действия. Лептин оказывает свои эффекты через взаимодействие с соответствующим мембранным рецептором (1ер-г) (Тарталья и соавт., 1995). Одна полная (b-изоформа) форма и несколько форм рецептора лептина, полученных в результате альтернативного сплайсинга (а, с, d, е, f), были обнаружены в мозге и периферических тканях (Такайя и соавт., 1996; Ли и соавт., 1996). Рецептор лептина является представителем класса 1 цитокинового семейства рецепторов (Вайсс и соавт., 1996; Бауман и соавт., 1996; Ванг и соавт., 1997). Это семейство рецепторов регулирует транскрипцию гена через активацию сигнального пути jak-stat (Гиларди и Шкода, 1997). Длинная изоформа, b-изоформа рецептора лептина, экспрессируется в гипоталамусе и отвечает за центральные эффекты лептина.
Внутриклеточные сигнальные пути начинаются с активации b-изоформы рецептора лептина, что включает фосфорилирование и активацию передатчика сигнала и активатора транскрипции (STAT), регулируемую STAT3 и STAT5; SOCS3-управляемое торможение по принципу обратной связи и путь киназы, регулируемой внеклеточными сигналами (ERK-путь) (Бьобэк и соавт., 1999; Робертсон и соавт., 2008). Короткие изоформы рецептора лептина расположены в цитоплазматическом домене, но могут связываться с лептином и, вероятно, регулировать некоторые периферические его функции (Такайя и соавт., 1996; Ли и соавт., 1996; Киффер и соавт., 1996).
Активация рецептора лептина приводит к снижению экспрессии NPY, тем самым ингибируя мощный орексигенный эффект NPY (Гиларди и Шкода, 1997). Функция подавления приема пищи лептином опосредуется сложными нейронными сетями, которые включают подавление орексигенных импульсов (NPY, АгПП, меланоцитстимулирующий гормон, гипоректины 1 и 2/орексины a и b) и активацию анорексигенных (а-меланоцитстимулирующий гормон, меланокортин 4, кортикотропин-рилизинг-гормона, КАРТ) нейронных путей (Шварц и соавт., 2000). Мутации гена рецептора лептина приводят к развитию ожирения и резистентности к лептину у ob/ob мышей (Чен и соавт., 1996) и fa/fa крыс (Филлипс и соавт., 1996) соответственно.
Мутации гена рецептора лептина у человека, связанные с морбидным ожирением, описаны у французских детей (Клемент и соавт., 1998). У людей с ожирением уровни мРНК гена 1ер в жировой ткани (Лонквист и соавт., 1995; Гамильтон и соавт., 1995) и циркулирующего лептина (Консидайн и соавт., 1996; Дагого-Джек и соавт., 1996) повышены, что предполагает аномальный ответ на действия лептина, предназначенные для регулирования массы тела, у людей с ожирением. Основа лептинрезистентности неясна, но может быть связана с повреждением циркулирующих лептинсвязывающих белков (Лу и соавт., 2010), что снижает доставку лептина из крови в мозг (Шварц и соавт., 1996), или с дефектами действия рецептора лептина (Тарталья и соавт., 1995; Бьобэк и соавт., 1999; Озкан и соавт., 2009; Майерс и соавт., 2012).
2. Действие лептина и инсулина. Заместительные дозы рекомбинантного лептина, вводимые систематически, нормализуют уровни глюкозы и инсулина в плазме у ob/ob мышей с гипергликемией и гиперинсулинемией (Халаас и соавт., 1995; Вэйгл и соавт., 2005) и у субъектов с дефицитом лептина, СД и инсулинорезистентностью (Личинио и соавт., 2004). Низкие дозы лептина, вводимые внутривенно или в желудочки мозга, увеличивают утилизацию глюкозы и уменьшают запасы гликогена в печени у дикого типа мышей (Камохара и соавт., 1997). Более того, терапия лептином способствует избирательному уменьшению запасов висцерального жира и улучшает чувствительность к инсулину у крыс (Барзилай и Гупта, 1999).
Эти открытия показывают, что лептин может быть натуральным средством для повышения чувствительности к инсулину. Действительно, добавление лептина в культуру человеческих гепатоцитов стимулирует сигнал по фосфатинозитол-З’-киназному пути, одному из регуляторов действия инсулина (Кохен и соавт., 1996).
Другим механизмом повышения чувствительности к инсулину с помощью лептина может быть влияние на липотоксичность (Бай и соавт., 1996; Шимабукуро и соавт., 1997). Имеет место заметная вариабельность уровня лептина в плазме (даже среди людей, сопоставимых по степени ожирения), что может частично обусловливать различие в чувствительности к инсулину (Дагого-Джек и соавт., 1997; Аскари и соавт., 2010).
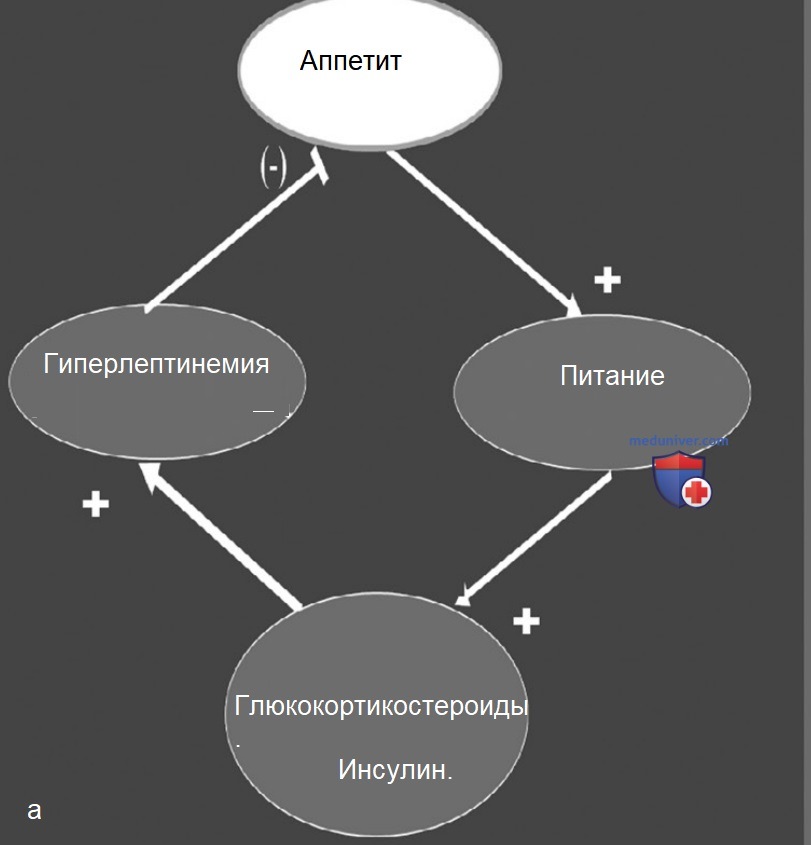
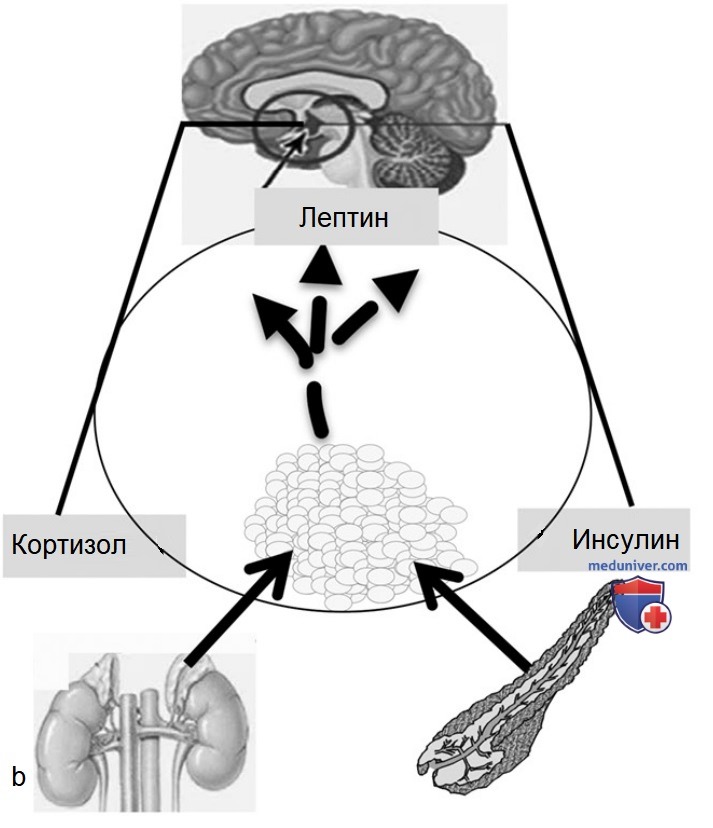
Базальный (тощаковый) уровень лептина в плазме одинаков в группах пациентов, сопоставимых по индексу массы тела (ИМТ) и полу, с СД и без него (Синха и соавт., 1996; Лю и соавт., 1999), но динамический ответ лептина на секретагоги был ослаблен у пациентов с СД (Лю и соавт., 1999; Дагого-Джек и соавт., 2000). Мы допускаем, что увеличение секреции лептина в ответ на прием пищи (как инсулина и глюкокортикоидов) представляет собой контррегуляторный процесс для ограничения переедания и набора массы тела (Дальмэн и соавт., 1993; Дагого-Джек и соавт., 1997) (рис. ниже).
Рост аппетита и последующий прием пищи способствуют увеличению уровня инсулина и кортизола в плазме в постпрандиальном периоде; a — глюкокортикоиды и инсулин стимулируют секрецию лептина адипоцитами, что индуцирует чувство насыщения и предотвращает голод между приемами пищи и во время сна; b — лептин, глюкокортикоиды и инсулин оказывают центральные эффекты на гипоталамические центры голода и насыщения (малый круг) частично путем изменения экспрессии нейропептида Y. Периферически петля обратной связи (широкий круг) включает прямое подавление секреции глюкокортикоидов и инсулина за счет лептина, обеспечивающего гомеостаз. Ослабленние инсулин- и глюкокортикоид-стимулированной секреции лептина у пациентов с диабетом может способствовать увеличению потребляемых калорий, набору массы тела, инсулинорезистентности и гипергликемии
Этот адаптационный механизм может быть физиологически уместным, поскольку кормление стимулирует секрецию инсулина и кортизола (Росмонд и соавт., 2000), которые, в свою очередь, стимулируют секрецию гормона насыщения — лептина. Теоретически дефект секреции лептина может запустить гиперфагию, способствовать набору массы тела и усилить инсулинорезистентность. Если уменьшение секреции лептина рассматривать в роли основной черты СД, такая диабетическая дислептинемия может обосновать изучение терапии лептином. Действительно, пациенты с липодистрофическим СД и дефицитом лептина особенно хорошо отвечают на заместительную терапию лептином, часто удается достичь независимости от инсулина и таблетированных сахароснижающих средств (Орэл и соавт., 2002).
3. Экзогенный лептин в терапии ожирения у человека. Назначение низких физиологических доз рекомбинантного метионил-человеческого лептина (0,01-0,04 мг/кг) приводит к впечатляющим результатам у пациентов с ожирением и дефицитом лептина (Монтэг и соавт., 1997; Фаруки и соавт., 1999, 2002; Личинио и соавт., 2004). Показано, что ежедневные подкожные инъекции рекомбинантного лептина приводят к значимой потере массы тела в течение 2 нед.
Снижение массы тела поддерживалось на уровне около 1-2 кг в месяц (в отсутствие данных о тахифилаксии) в течение 12-18 мес терапии (Фаруки и соавт., 1999; Личинио и соавт., 2004). При анализе состава тела было отмечено, что селективное уменьшение жировой ткани составило около 95% общей потери массы тела. Ежедневное употребление пищи (и поведение, направленное на поиск пищи) снижалось в течение 1 нед от начала заместительной терапии лептином, 95% от общей потери массы тела достигалось за счет селективного уменьшения количества жировой ткани (Фаруки и соавт., 1999).
Уровень расхода энергии за счет основного обмена снижался (по мере потери массы тела), но динамический расход энергии увеличивался примерно на то же количество в ходе терапии лептином, последний — за счет роста физической активности (Фаруки и соавт., 1999). Стимулирующий эффект рекомбинантного лептина по отношению к физической активности впервые был замечен у ob/ob мышей и, вероятно, обусловлен активацией симпатической нервной системы (Хейнс и соавт., 1997). Схожие, но не столь впечатляющие положительные эффекты снижения массы тела наблюдали вследствие увеличения уровня лептина в когорте мужчин и женщин (54 с нормальной массой тела и 73 с ожирением) с нормальным уровнем лептина (что определялось как базальный уровень лептина сыворотки крови >10 нг/мл) (Хеймсфилд и соавт., 1999).
Пациенты были разделены на группы с ежедневным самостоятельным введением плацебо или различных доз (0,01; 0,03; 0,10 или 0,30 мг/кг) рекомбинантного метионил-человеческого лептина. Среднее изменение массы тела на 24-й неделе варьировало от -0,7±5,4 кг при дозе 0,01 мг/кг до -7,1±8,5 кг при дозе 0,3 мг/кг.
Как и у пациентов с врожденным дефицитом лептина, снижение массы тела достигалось главным образом за счет потери жировой массы вследствие терапии лептином (Хеймсфилд и соавт., 1999). Примечательно, что были отмечены индивидуальные различия в реакции на рекомбинантный лептин среди субъектов с нормальным генотипом лептина. Последующие исследования лептина в терапии пациентов с ожирением и после шунтирования желудка по методу Py-Y не показали снижения массы тела (Зэлиссен и соавт., 2005; Корнер и соавт., 2013). Терапия лептином не оказала влияния и на массу тела у пациентов с ожирением и СД 2-го типа (Мун и соавт., 2011). Пациенты с дефицитом лептина явно более чувствительны к терапии лептином, чем пациенты с распространенными формами ожирения.
Энтузиазм по поводу терапевтического потенциала лептина в коррекции ожирения угас в связи с недостаточной постоянной эффективностью в популяции страдающих ожирением. Тем не менее возможное восстановление ответа на лептин путем его соединения с агентами, подобными эксендину-4, является стратегией, многообещающей в исследованиях на грызунах и достойной для исследования ожирения у человека (Мюллер и соавт., 2012). Следует отметить, что рекомбинантная метиловая производная человеческого лептина (метре-лептин) недавно был одобрен FDA для лечения врожденной или приобретенной генерализованной липодистрофии. Известные в настоящее время метаболические и поведенческие эффекты лептина приведены ниже.
Поведенческие и метаболические эффекты лептина:
1. Поведенческие:
- Подавление потребления пищи
- Стимуляция физической активности
2. Состав тела:
- Индукция потери жировой массы
- Сохранение мышечной массы
- Сохранение костной массы
3. Обмен глюкозы и жиров:
- Улучшение чувствительности к инсулину
- Улучшение толерантности к глюкозе
- Распределение триглицеридов в адипоциты
- Увеличение окисления жиров
- Снижение стеатоза печени