Гастроинтестинальные пептиды как регуляторы потребления пищи (пищевого поведения) - по руководству США
а) Грелин. Полипептид грелин был впервые описан и охарактеризован как эндогенный лиганд рецептора секретагога гормона роста в 1999 г. (Коджима и соавт., 1999). Молекула грелина состоит из 28 аминокислот и ацильного радикала, второй имеет значение для биологического действия. Посттрансляционное ацилирование грелина регулируется ферментом желудочной О-ацилтрансферазой (Янг и соавт., 2008). Грелин синтезируется и секретируется в желудке, с циркулирующей кровью достигает передней доли гипофиза и стимулирует секрецию гормона роста соматотрофами.
Пищевые эффекты грелина стали очевидными, когда было показано, что центральное (интрацеребровентрикулярное) введение довольно сильно повышает потребление пищи у грызунов (Врен и соавт., 2000). Похожий эффект на потребление пищи наблюдался в ответ на периферическую (внутривенную) инъекцию грелина у крыс (Врен и соавт., 2000). У людей внутривенное введение грелина стимулировало потребление пищи примерно на 30% (Врен и соавт., 2001).
Интересно, что грелин является единственным обнаруженным до настоящего времени метаботропным пептидом, стимулирующим потребление пищи напрямую при периферическом введении.
Физиологические исследования показали, что грелин выступает в качестве периферической сигнальной молекулы голода и начала приема пищи; пиковый уровень его в крови отмечается прямо перед началом приема пищи и стремительно падает вслед за поступлением еды (Каммингс и соавт., 2001). Длительное введение грелина у грызунов приводит к хроническому перееданию и набору веса, хотя субъекты, страдающие ожирением, демонстрируют высокий уровень лептина и низкий уровень грелина в плазме (Чоп и соавт., 2001), с пиковыми уровнями утром и наиболее низкими ночью.
Механизм действия грелина включает стимуляцию гипоталамических нейронов (Наказато и соавт., 2001) и подавление афферентных сигналов желудка (Дэйт и соавт., 2002). На основании сказанного выше вполне вероятно, что грелин или его аналоги могут быть кандидатами для будущей терапии первичной анорексии, а также анорексии и кахексии, часто наблюдаемой у пациентов с вирусом иммунодефицита человека (ВИЧ) — синдромом приобретенного иммунодефицита (СПИД), системными расстройствами и злокачественными заболеваниями.
В противоположность этому антагонизм грелина является привлекательной идеей для разработки лекарственного средства для терапии ожирения и гиперфагических расстройств. Грелин О-ацетилтрансфераза — другая потенциальная терапевтическая мишень при условии, что ингибирование его ферментативной активности может снизить циркулирующие концентрации активного ацилгрелина и снизить чувство голода (Гэрдинер и Блум, 2008).
б) Пептид YY (PYY). Вырабатываемый кишечником PYY является членом семейства NPY, которое включает панкреатический полипептид и NPY (Лархаммер, 1996; Уин и соавт., 2004). PYY синтезируется эндокринными L-клетками слизистой оболочки тонкой и толстой кишки. PYY3-36 является главной изоформой, секретируемой в циркулирующую кровь (Грандт и соавт., 1994). Прием пищи — главный стимул для высвобождения PYY, который затем служит как анорексигенный сигнал/сигнал насыщения, от клеток тонкого кишечника. В исследованиях на грызунах при прямом введении PYY3-36 в аркуатное ядро был продемонстрирован мощный анорексигенный эффект PYY3-36 (Баттерхэм и соавт., 2002).
Подобным образом при периферическом введении PYY3-36 уменьшает аппетит и потребление пищи как у людей с нормальной массой тела, так и у людей с ожирением, снижая количество потребляемой пищи примерно на 30% по сравнению с плацебо (Баттерхэм и соавт., 2003а).
PYY3-36 оказывает анорексигенный эффект через согласование процессов торможения орексигенных NPY-нейронов и стимулирования ПОМК-нейронов аркуатного ядра. Эти молекулярные изменения наблюдаются после периферического введения PYY3-36 (Баттерхэм и соавт., 2002). Считается, что PYY3-36 оказывает свои эффекты через взаимодействие с высокоаффинными Y2-рецепторами гипоталамуса, получая прямой доступ к ним через проницаемый гематоэнцефалический барьер в области срединного возвышения. Активация подтипа рецепторов Y2 на NPY-нейронах способствует торможению пресинаптических сигналов.
Согласно данному механизму, нокаутные по Y2-рецептору мыши утрачивают способность к ответной реакции на анорексигенный эффект PYY3-36 (Баттерхэм и соавт., 2002). Таким образом, циркулирующий PYY3-36 способен оказывать анорексигенный эффект путем прямого торможения орексигенных NPY-нейронов в аркуатном ядре. Примечательно, что NPY-нейроны в аркуатном ядре являются центральными интегрирующими областями для множества периферических сигналов (включая лептин, инсулин, PYY3-36 и грелин), которые регулируют потребление пищи. Исследования показывают, что PYY3-36 эффективно подавляет аппетит в краткосрочной перспективе у людей с нормальной массой тела и ожирением (Баттерхэм и соавт., 2003а; Слот и соавт., 2007) и изменяют активность мозга в гипоталамическом центре аппетита при внутривенном введении (Баттерхэм и соавт., 2007).
Однако появление тошноты ограничивает дозу при внутривенном, интраназальном и пероральном введении (Слот и соавт., 2007; Ганц и соавт., 2007; Ле Ру и соавт., 2008; Беглингер и соавт. 2008). Тем не менее анорексигенный эффект PYY3-36 заслуживает внимания, этот пептид и его аналогиостаются представляющими интерес кандидатами для разработки лекарства от ожирения.
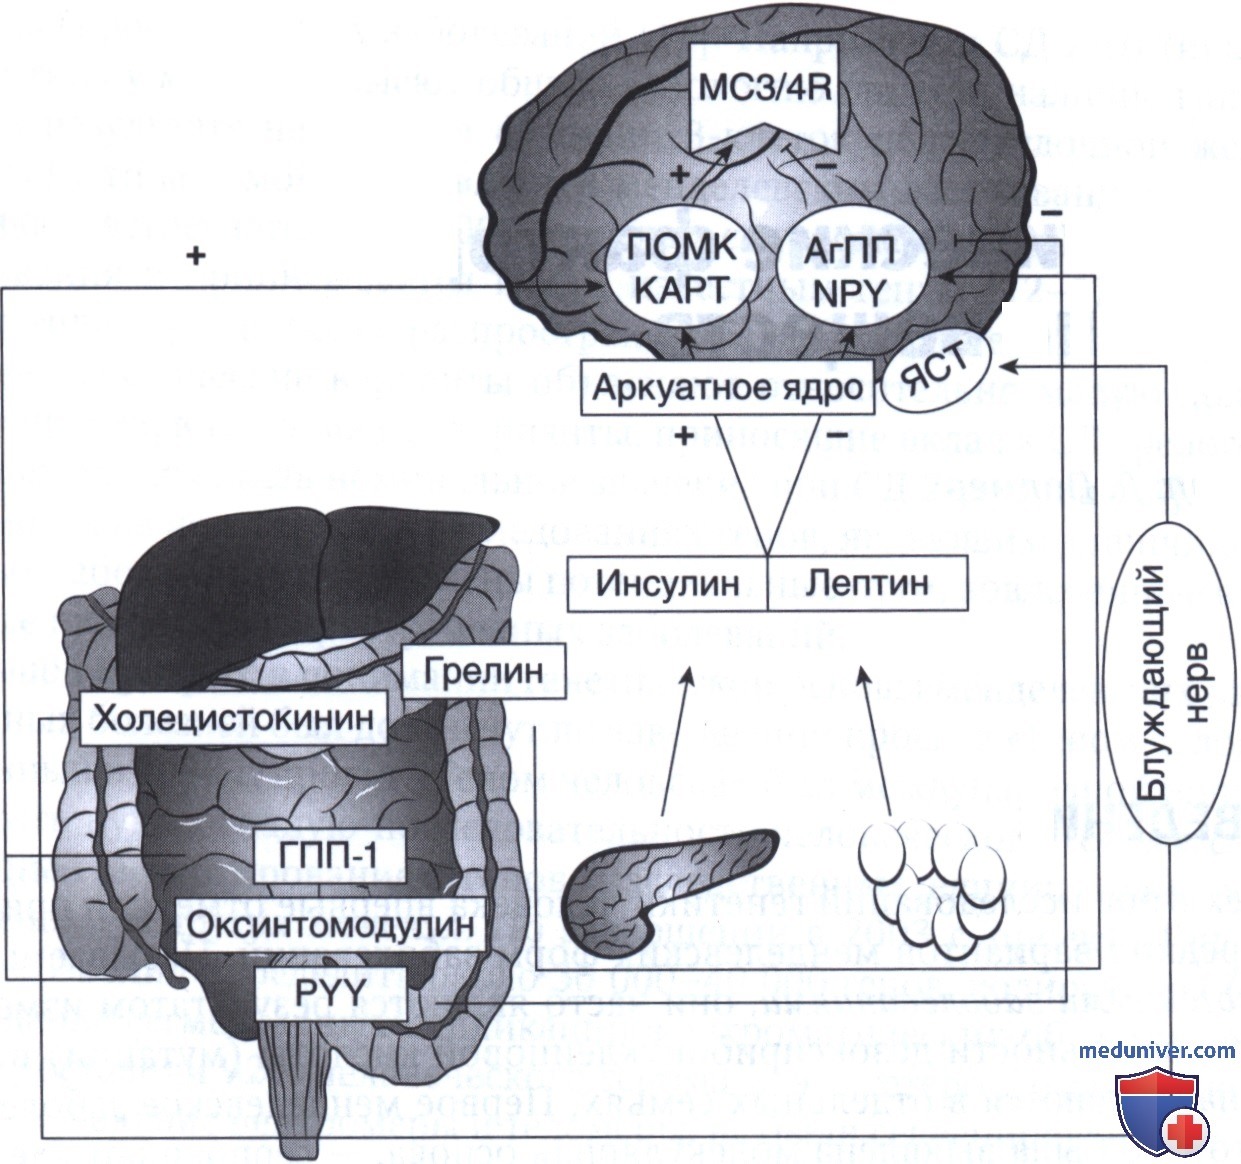
Гипоталамус и ствол мозга являются ключевыми регуляторами аппетита, объединяющими различные гормональные сигналы от адипоцитов (лептин), поджелудочной железы (инсулин) и желудочно-кишечного тракта [глюкагоноподобный пептид 1 (ГПП-1), пептид YY (PYY), оксинтомодулин, холецистокинин, грелин] с целью регуляции энергетического баланса. И инсулин, и секретируемый адипоцитами гормон лептин снижают потребление пищи посредством действия на аркуатное ядро гипоталамуса, стимулируя проопиомеланокортин-нейроны и ингибируя агутиподобные пептид-нейроны (АгПП), приводя к повышению сигнала рецептора меланокортина (MC3/4R). ГПП-1 и оксинтомодулин высвобождаются из L-клеток кишечника вслед за поступлением питательных веществ и ограничивают потребление пищи. ГПП-1 напрямую стимулирует проопиомеланокортин/ кокаин-амфетамин-регулируемые транскрипт-нейроны (ПОМК/КАРТ), подавляя аппетит. Пептид YY снижает аппетит путем торможения агутиподобных пептид-нейронов и стимуляции проопиомеланокортин-нейронов. Пищеварительный гормон — холецистокинин, высвобождающийся преимущественно из энтероэндокринных клеток двенадцатиперстной кишки в ответ на поступление питательных веществ и растяжение внутренних органов, стимулирует насыщение через афферентные пути блуждающего нерва, входящие в ядро солитарного тракта (ЯСТ) заднего мозга
в) Глюкагоноподобный пептид 1 (ГПП-1). ГПП-1 образуется из молекулы-предшественника препроглюкагона. Сайт-специфичное расщепление препроглюкагона в поджелудочной железе приводит к образованию глюкагона, в то время как в эндокринных L-клетках тонкого кишечника это приводит к образованию ГПП-1. И ГПП-1, и PYY секретируются вместе L-клетками тонкого кишечника в ответ на поступление питательных веществ в кишечник. Как и PYY, ГПП-1 также служит в качестве сигнала насыщения от кишечника. В то время как ГПП-1 имеет короткое время полураспада и стремительно расщепляется ферментом дипептидилпептидазой-4, центральное и периферическое введение ГПП-1 приводит к заметному торможению приема пищи у грызунов (Туртон и соавт., 1996; Эбботт и соавт., 2005).
ГПП-1 часто описывается как инкретин по причине его стимулирующего эффекта на постпрандиальную секрецию инсулина. Дополнительные эффекты ГПП-1 на регуляцию обмена глюкозы включают подавление секреции глюкагона и удлинение времени эвакуации содержимого желудка (Крейманн и соавт., 1987). ГПП-1 может вызывать незначительную потерю массы тела путем задержки эвакуации желудочного содержимого, активации чувства насыщения и торможения приема пищи; последний эффект преимущественно осуществляется через прямую стимуляцию ГПП-1 ПОМК-/КАРТ-клеток аркуатного ядра (Вердич и соавт., 2001; Сэчер и соавт., 2014). Соответственно гликемические и анорексигенные свойства ГПП-1 могут быть использованы в терапевтических целях.
Синтезированные агонисты рецептора ГПП-1, резистентные к распаду под действием фермента дипептидилпептидазы-4, показали эффективное улучшение гликемического контроля при СД 2-го типа (Шяндан и соавт., 2011). Применение эксенатида, длительно действующего агониста рецептора ГПП-1, который одобрен для лечения СД 2-го типа у пациентов с неадекватным контролем гликемии на фоне приема пероральных препаратов, связано с дозозависимым снижением массы тела (Колтерман и соавт., 2003; Де Фронзо и соавт., 2005).
Двойное слепое 20-недельное рандомизированное плацебо-контролируемое исследование лираглутида, другого длительно действующего аналога ГПП-1, в сравнении с орлистатом продемонстрировало снижение массы тела более чем на 5% от исходной веса у 61% пациентов, получающих лираглутид, по сравнению с 29,6% пациентов, получающих плацебо, и 44,2% пациентов, получающих орлистат (Аструп и соавт., 2009). Хотя побочные эффекты со стороны желудочно-кишечного тракта (ЖКТ) характеры для лираглутида во всем спектре его доз, лекарственный препарат был одобрен FDA для лечения ожирения в 2014 г.
В опорном 56-недельном рандомизированном, контролируемом исследовании терапия 3,0 мг лираглутида приводила к среднему снижению массы тела на 8,4 кг, по сравнению с 2,8 кг в группе плацебо, у пациентов с ИМТ 30 кг/м2 и более или 27 кг/м2 или более, с дислипидемией и/или гипертензией (Пи-Суньер и соавт., 2015).
Избыточное количество эндогенного ГПП-1 может быть уменьшено посредством ингибирующего действия дипептидилпептидазы-4. Пероральные ингибиторы дипептидилпептидазы-4 также показали улучшение контроля гликемии и были одобрены для лечения СД 2-го типа, влияние их на массу тела нейтрально (Амори и соавт., 2007; Дикер, 2011). В последнее время были приложены усилия для создания сочетанных агонистов рецепторов ГПП-1 и глюкагона для лечения ожирения. Эти соединения обладают липолитическим и термогенным эффектами глюкагона, одновременно противодействуя глюкагон-индуцируемой гипергликемии путем сочетанного введения ГПП-1 (Санчез-Гарридо и соавт., 2017).
В связи с многообещающими, полученными у животных данными, которые показали, что коагонизм пегилированного ГПП-1 и рецептора глюкагона приводит к потере массы тела и улучшает переносимость глюкозы у мышей с индуцированным диетой ожирением (Дэй и соавт., 2009; Клемменсен и соавт., 2014), в настоящее время начаты исследования у людей (Санчес-Гарридо и соавт., 2017).
г) Оксинтомодулин (ОКМ). ОКМ вырабатывается из препроглюкагона главным образом в эндокринных L-клетках кишечника и секретируется совместно с ГПП-1 после поступления питательных веществ (Дракер, 2005). Этот пептидный гормон состоит из 37 аминокислот с последовательностью, гомологичной ГПП-1 и глюкагону (Холст, 1983). ОКМ характеризуется аффинитетом к рецепторам ГПП-1 и глюкагона (Грос и соавт., 1993; Холст, 1997), и в дополнение к выраженному торможению эвакуации содержимого желудка и желудочной и панкреатической экзокринной функции было показано, что ОКМ ингибирует прием пищи и повышает расходование энергии как у грызунов, так и у людей (Шольдагер и соавт., 1988; Дэкин и соавт., 2001; Уинн и соавт., 2005, 2006; Бэджер и соавт., 2015).
В рандомизированном контролируемом исследовании у субъектов с избыточной массой тела и ожирением, получавших лечение ОКМ в течение 4 нед, наблюдалась средняя потеря массы тела 2,3 кг, по сравнению с потерей массы тела 0,5 кг в группе плацебо. Кроме того, было показано, что введение ОКМ улучшает метаболизм глюкозы при СД 2-го типа (Шанкар, 2013). В настоящее время внимание нацелено на терапевтические возможности стимуляции секреции эндогенного ОКМ или синтезирования аналогов в связи с терапевтическим потенциалом нативного ОКМ приводить к потере массы тела и контролю глюкозы (Покай, 2014).
д) Холецистокинин (ХЦК). ХЦК более известен благодаря своей роли в переваривании пищи, а именно стимуляции секреции ферментов поджелудочной железы и сокращения желчного пузыря. Однако ХЦК признан мощным фактором насыщения на протяжении более чем трех десятилетий (Гиббс и соавт., 1973). Периферические и центральные механизмы предположительно управляют анорексигенным эффектом/эффектом насыщения ХЦК. Периферически — активация А-рецепторов ХЦК на окончаниях блуждающего нерва и в пилорическом сфинктере уменьшает потребление пищи.
Централизованно взаимодействия между путями ХЦК и лептина вызывают синергетические анорексигенные эффекты (Мэтсон и соавт., 1997). Дополнительный механизм действия ХЦК может также включать активацию нейронов ствола мозга, которые отвечают за регулирование размера порции. Эффект периферического введения ХЦК временный и больше связан с регуляцией насыщения/прекращения приема пищи, чем с первичным торможением начала приема пищи (Вест и соавт., 1987; Морэн, 2000). Для индуцирования продолжительного торможения процесса приема пищи были испробованы высокие дозы и пролонгированное введение ХЦК, но успех был ограничен из-за очень быстрого развития толерантности (Кроули и Бейнфелд, 1983).
е) Резюме. Сложная сеть центральных и периферических нейрогуморальных сигналов (рис. выше) вовлечена в регуляцию процесса потребления пищи, одного из первоочередных действий, необходимых для выживания и самосохранения. Несмотря на десятилетия исследований животных и человека, полный объем процессов и гуморальных сред, вовлеченных в регуляцию приема пищи, остается до конца не освещенным. Современная наука утверждает, что энергетический гомеостаз в здоровом организме основан на балансе между орексигенными и анорексигенными факторами, как центральными, так и периферическими.
Фактически все периферические сигналы (например, инсулин, PYY, лептин, ХЦК), активируемые поступлением пищи и ослабляемые натощак или при голодании, указывают на существование системы реагирования, которая приспособлена к насыщению и прекращению приема пищи. Грелин, единственный сигнал, который активируется перед едой, является уникальным в своей роли периферического сигнала голода и начала приема пищи.
Механизм возникновения периферических гормональных сигналов, которые провоцируют прием пищи, еще недостаточно изучен. Однако наиболее правдоподобным объяснением является то, что аппетит и голод находятся под преимущественно центральным контролем и управляются нервными окончаниями, выходящими из различных мозговых центров в аркуатные нейроны, экспрессирующие ПОМК и АгПП/NPY. Центральный контроль питания собран в объединенную нейроэндокринную систему, которая стимулирует и ингибирует потребление пищи.
Орексигенные (например, NPY, АгПП) и анорексигенные (например, меланокортин) компоненты этой системы получают афферентные нейроэндокринные и метаболические сигналы из периферии, но могут также быть субъектами локальных и паракринных воздействий, а также исходящих из высших мозговых центров. Координирование управления этими разнообразными и противоречивыми механизмами приводит к поддержанию энергетического гомеостаза, который физиологически отклонен в сторону положительного баланса. Увеличивающееся понимание этих механизмов является предпосылкой к открытию медикаментозных вмешательств, которые могут надежно управлять потреблением пищи и предотвращать или лечить ожирение.