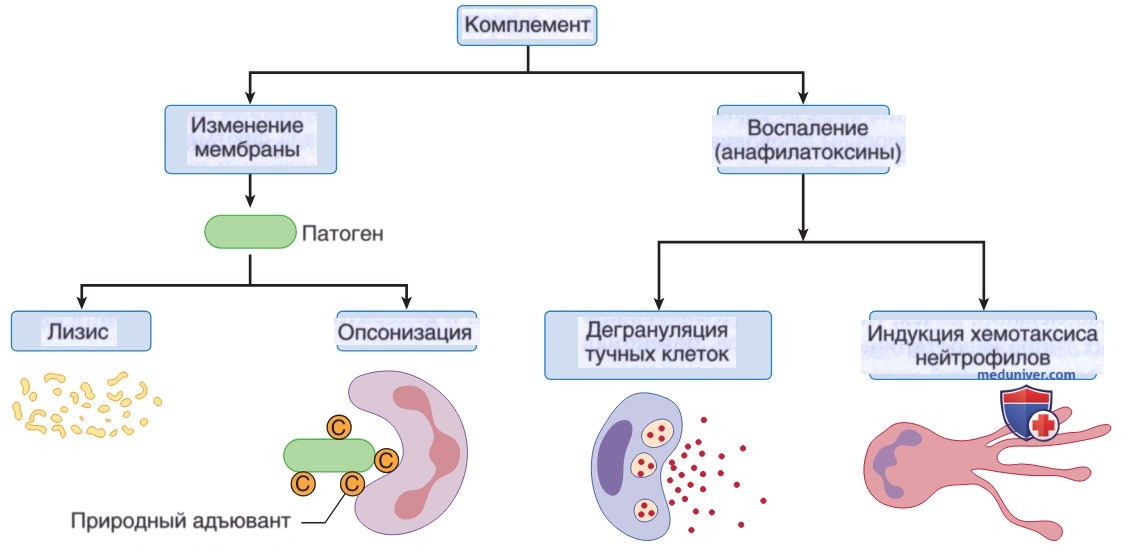
Система комплемента состоит из белков плазмы, принимающих участие в иммунной защите против инфекционных агентов, а также для удаления обломков разрушенных клеток и структур внеклеточного матрикса. Установлена роль системы комплемента в развитии многих аутоиммунных и воспалительных заболеваний (рис. 1).
Рисунок 1. Функция системы комплемента. Наиболее важной функцией системы комплемента является опсонизация патогенов. Фагоцитоз патогенов осуществляется в результате связывания С4b- и С3b-опсонинами на поверхности микроорганизмов с соответствующими рецепторами на клетках организма. Разрушение активирующих бактерий и оболочечных вирусов обычно происходит с помощью конечных продуктов активации системы комплемента — мембраноатакующего комплекса, разрушающего мембраны патогенов, что приводит к их лизису. Еще одной важной функцией комплемента является активация клеток, участвующих в воспалительных и иммунных ответах. С3а и С5а фрагменты системы комплемента, известные как анафилатоксины, стимулируют дегрануляцию многих типов клеток, например тучных клеток, а также стимулируют хемотаксис фагоцитов в очаги воспаления. Благодаря способности к опсонизации патогенов и активации клеток воспаления система комплемента играет роль природного адъюванта. Поскольку активация комплемента происходит в течение нескольких секунд, эта древняя система врожденного иммунитета в первую очередь способствует элиминации большинства патогенов, особенно при их диссеминации в периферической крови. К важнейшим функциям системы комплемента также относится своевременное выведение из организма иммунных комплексов и предотвращение аутоиммунных реакций
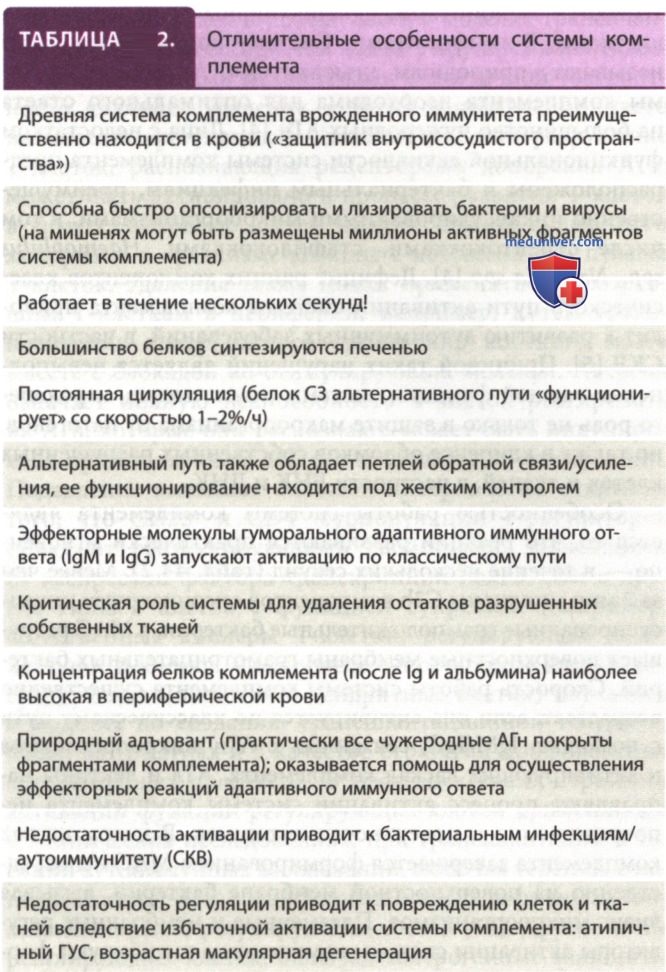
Комплемент незаменим для эффективной работы врожденного иммунитета и служит мощным эффекторным механизмом для решения задач адаптивного гуморального иммунного ответа. Система комплемента первой отвечает на бактерии и вирусы, проникшие в кровоток (табл. 1).
Система комплемента способствует поддержанию стерильности крови («защитник внутрисосудистого пространства»), ее мгновенная активация в течение нескольких секунд приводит к связыванию патогенов опсонинами и формированию МАС, повреждающего поверхностные структуры патогенов.
Еще одной важной задачей системы комплемента является запуск воспалительного ответа с помощью механизмов образования растворимых фрагментов (анафилатоксинов). Такие мелкие фрагменты взаимодействуют с рецепторами на поверхностных мембранах клеток организма, это приводит к клеточной активации, синтезу хемокинов и хемотаксису фагоцитов к местам скопления инфекционных агентов. Таким образом, с помощью системы комплемента усиливается защита организма от инфекционных агентов.
Более того, связывание ряда фрагментов системы комплемента с иммунными комплексами предотвращает их осаждение на эндотелии, поддерживает их в растворимом состоянии, способствует адгезии к эритроцитам. Передвижение эритроцитов, нагруженных иммунными комплексами, с током крови в конечном итоге приводит к передаче их моноцитам и дендритным клеткам в печени и селезенке.
Связывание компонентов системы комплемента с АГн приводит к тому, что патогены более эффективно захватываются моноцитами, фолликулярными дендритными клетками, В-лимфоцитами. Систему комплемента часто называют «природным адъювантом». Активация системы комплемента необходима для оптимального ответа на большинство чужеродных АГн.
Лица с недостатком функциональной активности системы комплемента предрасположены к бактериальным инфекциям, преимущественно инкапсулированными микроорганизмами, в том числе стрептококками, стафилококками, Haemophilus spp., Neisseria spp. Дефицит ранних компонентов классического пути активации системы комплемента приводит к развитию аутоиммунных заболеваний, в частности СКВ.
Причиной таких нарушений является невыполнение важной функции системы комплемента, играющего роль не только в защите макроорганизма от патогенов, но также в клиренсе обломков собственных разрушенных клеток и тканей, в частности РНК и ДНК.
Особенностью работы системы комплемента является то, что реакции развиваются практически мгновенно — в течение нескольких секунд (табл. 2). Менее чем за 2 мин миллионы С3b компонентов опсонизируют инкапсулированные грамположительные бактерии, а МАС разрушает поверхностные мембраны грамотрицательных бактерий.
Скорость работы системы комплемента существенно возрастает, если она активируется по классическому пути с помощью IgM/IgG, связанных с АГн микроорганизмов и активирующих каскад комплемента. АТл и лектины направляют процесс активации системы комплемента непосредственно к поверхности патогенов. В целом каскад комплемента завершается формированием МАС непосредственно на поверхностной мембране бактерии, вызывая лизис микроорганизмов.
Плазменные и мембранные регуляторы активации системы комплемента ингибируют формирование нормальных «собственных» клеток.
Большинство заболеваний, вызванных дисфункциями в работе системы комплемента, опосредуются нарушением регуляции функционирования петли усиления альтернативного пути. Такая петля усиления обратной связи является ключевой в запуске ранней фазы активации в иммунном ответе; однако она должна жестко регулироваться для предотвращения действия системы в отношении нормальных клеток, а также для предотвращения избыточного действия по отношению к разрушенным собственным клеткам и тканям.
Около 50% белков системы комплемента участвуют в контроле активации и эффекторных функций системы, особенно в процессе регуляции активации петли усиления альтернативного пути.
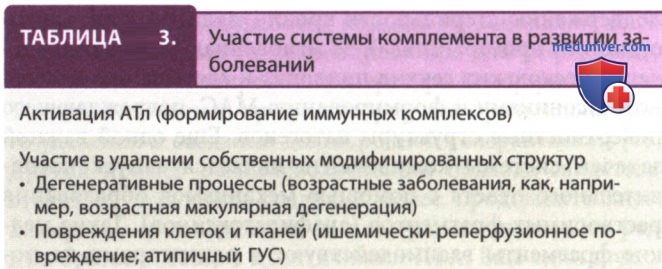
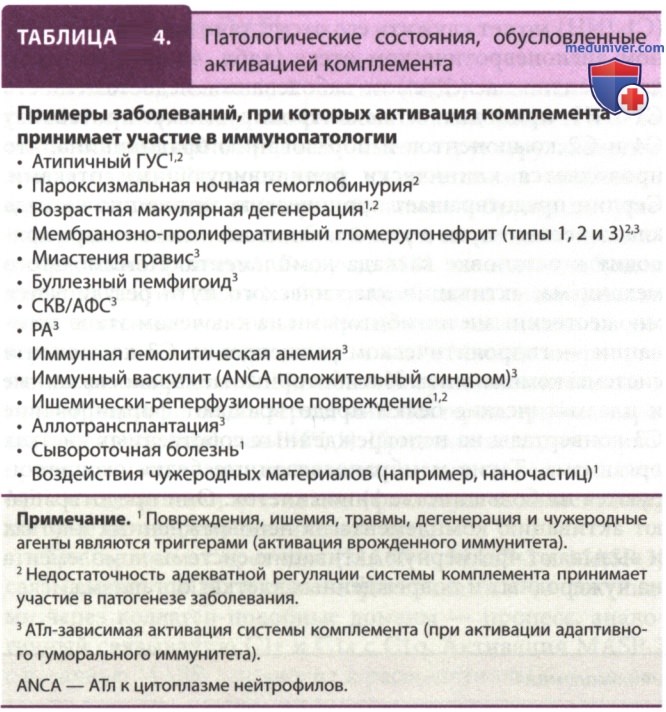
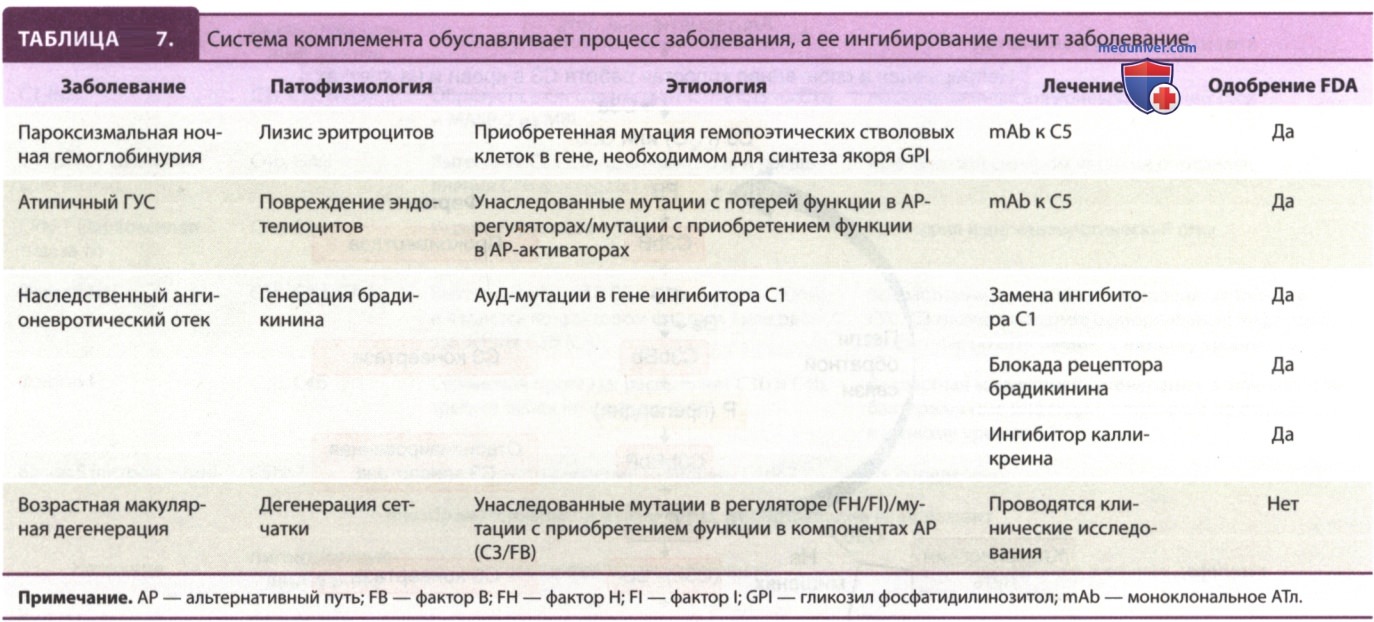
Система комплемента участвует в развитии патологических состояний: 1) в патогенезе наследственных заболеваний, обусловленных повышенной восприимчивостью к бактериальным инфекциям и аутоиммунным реакциям; 2) в патогенезе иммунокомплексных заболеваний, сопровождающихся повреждением тканей; 3) в процессах гиперактивации системы комплемента в очагах повреждения тканей в результате дисрегуляции функционирования системы (табл. 3 и 4).
Изучение активации и регуляции работы системы комплемента способствует разработке ЛП, например анти-С5 моноклональных АТл для лечения ряда комплемент-зависимых гемолитических патологий.
а) Активация комплемента:
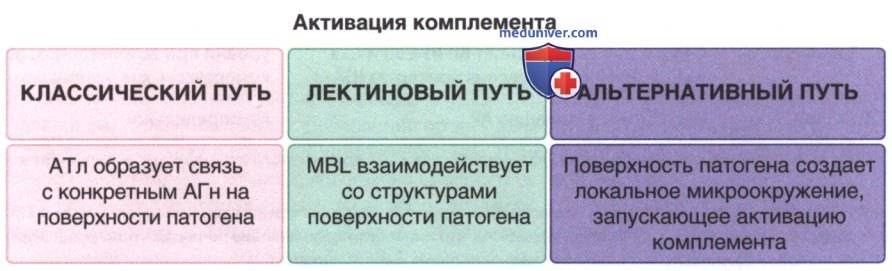
1. Классический путь. Взаимодействие IgM/IgG с АГн запускает мощный и быстрый путь активации для уничтожения микроорганизмов (рис. 2 и 3). Каскад реакции классического пути направлен на опсонизацию и нарушение целостности поверхностных мембран микроорганизмов. Такой высокоэффективный классический путь способен также активировать ауто-АТл. Процесс активации системы комплемента, обусловленный иммунными комплексами, способен приводить к повреждению клеток и тканей.
Рисунок 2. Три пути активации комплемента. Наиболее эффективно система комплемента функционирует на поверхностных мембранах. Однако возможна также активация комплемента в жидкой фазе, например, при сывороточной болезни. Помимо этого, альтернативный путь в жидкой фазе постоянно активируется на низком уровне (рис. 3)
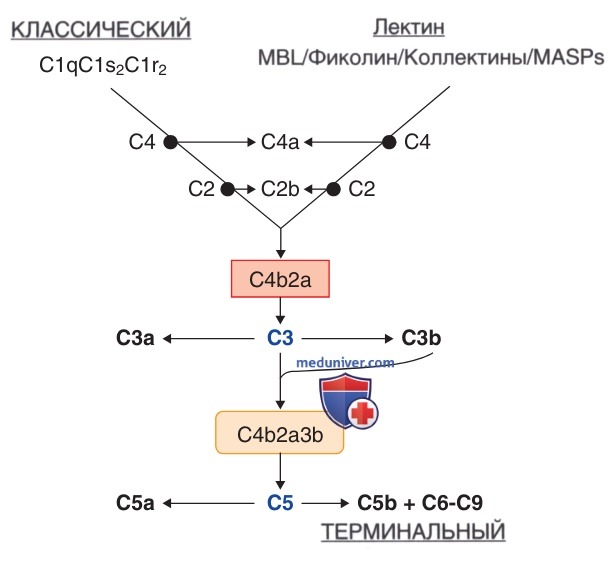
Рисунок 3. Активация классического и пектинового пути
Примерами заболеваний, обусловленных активацией комплемента ауто-АТл, являются гемолитическая анемия, миастения гравис и буллезный пемфигоид. Основной причиной патологического эффекта при таких заболеваниях является формирование ауто-АТл вследствие нарушения механизмов иммунологической толерантности. В таких патологических условиях система комплемента работает по указанию ауто-АТл, связывающихся с собственными структурами.
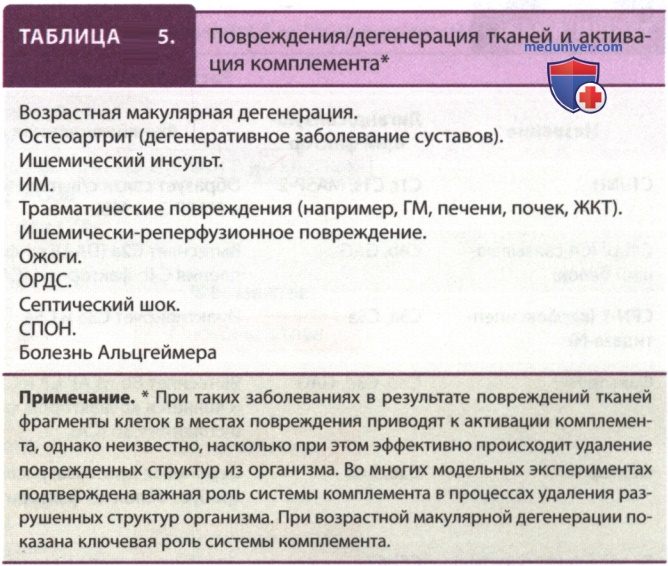
Классический путь активируется не только с помощью формирования IgM-/IgG-содержащих иммунных комплексов. β-Амилоид в бляшках пациентов с болезнью Альцгеймера непосредственно принимает участие в активации классического пути через взаимодействие с C1q (табл. 5). Аналогичным образом СРВ и сывороточный амилоид Р образуют связь с хроматином и другими нуклеопротеиновыми комплексами апоптозных клеток, что способствует активации комплемента по классическому пути.
Классический путь играет ключевую роль в опсонизации и удалении разрушенных ядерных структур клеток. У 80% пациентов с генетически детерминированным отсутствием C1q/C4 развивается СКВ. Отложения СРВ и активация С1 обнаружены в тканях, подвергающихся ишемии, например при ИМ. Эти наблюдения свидетельствуют о том, что активация классического пути с помощью АТл-независимых механизмов необходима для предотвращения аутоиммунных процессов с помощью своевременного удаления разрушенных клеток.
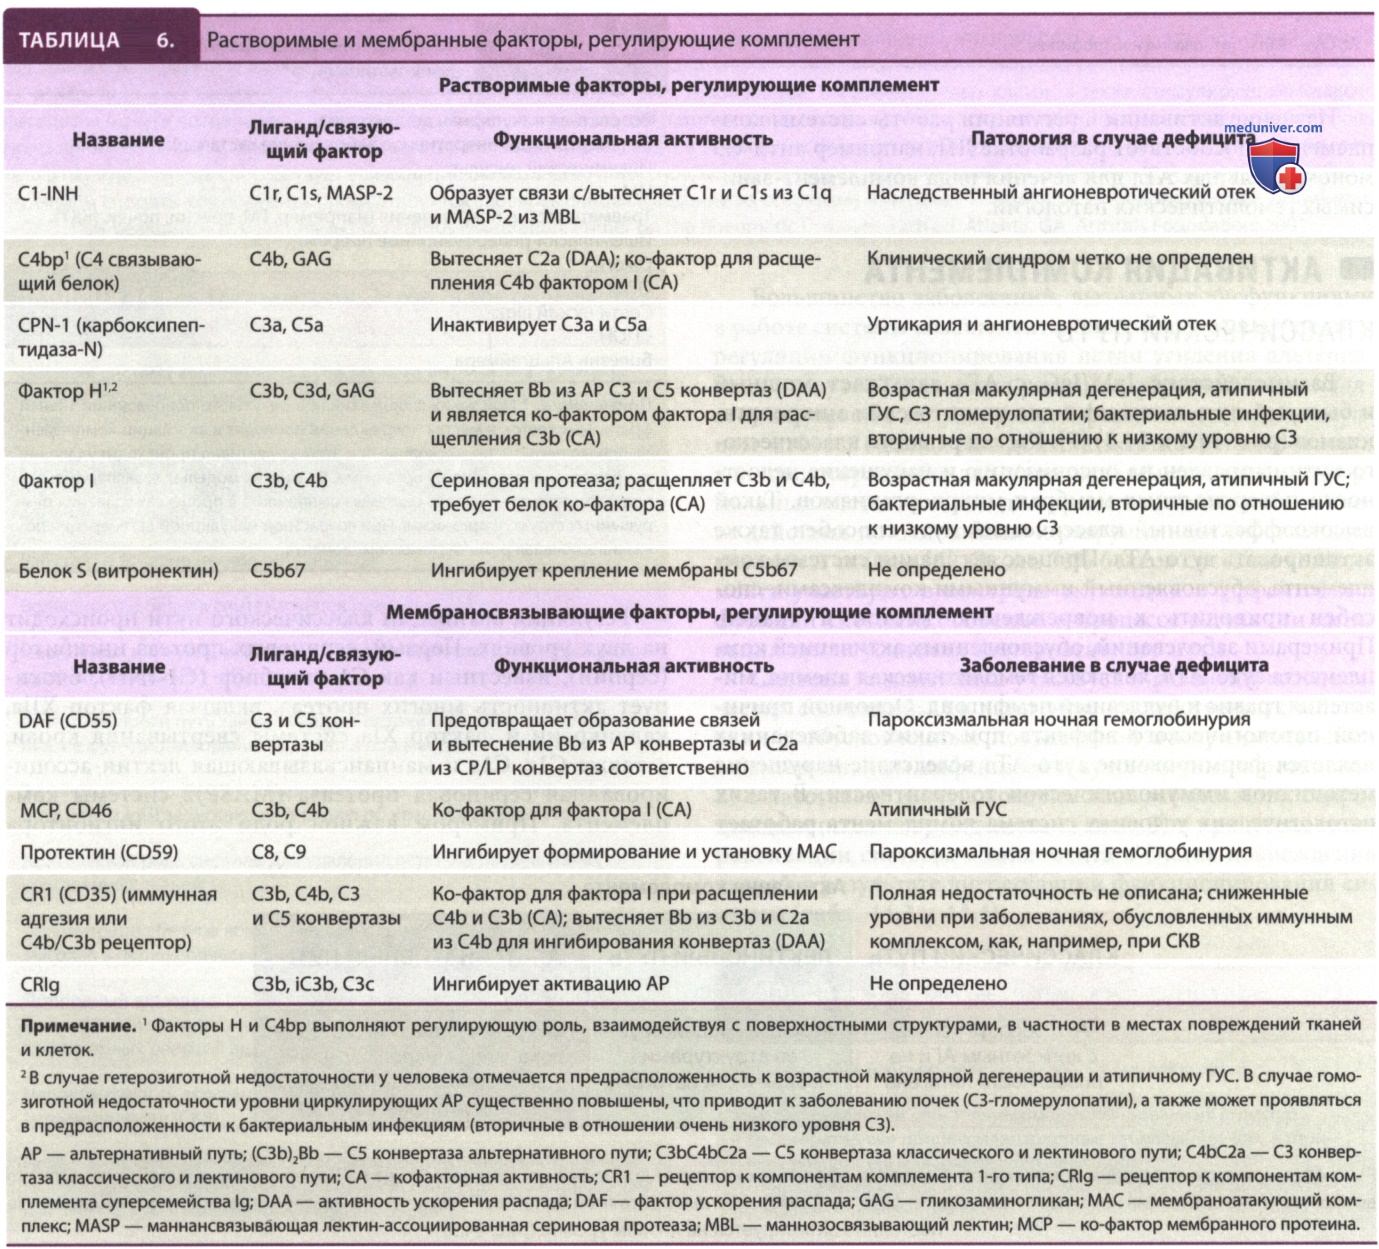
Регуляция активации классического пути происходит на двух уровнях. Первый, сериновых протеаз ингибитор (серпин), известный как С1-ингибиор (C1-INH), блокирует активность многих протеаз, включая фактор ХIIа, калликреин и фактор ХIа системы свертывания крови, а также C1r, C1s и маннансвязывающая лектин-ассоциированная сериновая протеаза (MASP)2 системы комплемента. Примером важной роли этого ингибитора (C1-INH) может служить его отсутствие при наследственном ангионевротическом отеке (табл. 6).
При таком доминантно-наследуемом заболевании недостаточность C1-INH приводит к неконтролируемому протеолизу С4 и С2 компонентов и образованию брадикинина, что проявляется клинически рецидивирующими отеками. Серпин предотвращает хроническую активацию каскада классического пути и уже в течение несколько минут приводит к остановке каскада комплемента. Помимо этого механизма, активация классического пути регулируется множественными ингибиторами на ключевом этапе активации — гидролитическом расщеплении С3 компонента системы комплемента.
Ингибиторные мембраносвязанные и плазматические белки предотвращают формирование С3 конвертазы на неповрежденных собственных клетках организма. Такие мембраносвязанные белки экспрессируются на большинстве типов клеток. Они предотвращают активацию комплемента на неповрежденных клетках и вызывают чрезмерную активацию системы комплемента на чужеродных и поврежденных клетках организма.
2. Лектиновый путь. Маннозосвязывающий лектин (MBL) является членом семейства коллектина, включающего также белки А и D легочного сурфактанта. MBL имеет структуру, аналогичную в части C1q, состоящей из нескольких подблоков; а именно головной домен распознания глобулина для углеводородов и коллаген-подобный хвост, взаимодействующий с сериновой протеазой. В случае MBL доменом глобулина является лектин (белок), образующий связи с повторяющимися остатками маннозы и N-ацетилглюкозамина на поверхности патогенов (рис. 2 и 3).
Многие микроорганизмы распознаются MBL, включая грамположительные и грамотрицательные бактерии, микобактерии, грибки, паразиты и вирусы (включая ВИЧ-1). Предполагается, что гликопротеины и гликолипиды млекопитающих не распознаются MBL и связанными лектинами (фиколины и коллектины), которые активируют лектиновый путь.
Три сериновых протеазы (MASP-1, MASP-2 и MASP-3) связываются с MBL, а также с фиколинами и коллективами через коллаген-подобные домены — процесс, аналогичный связыванию С1r и C1s с C1q. Активация MASP-2 с помощью MASP-1 приводит к расщеплению С2 и С4, что приводит к формированию С3 конвертазы классического или лектинового пути (С4b2а).
Генетические особенности структурных и регуляторных областей гена MBL приводят к большим различиям сывороточных уровней. Низкий уровень MBL обуславливает рецидивирующую инфекцию у детей и взрослых и представляет собой фактор риска для развития СКВ. Более примечательной является связь низких уровней MBL с инфекциями в процессе лечения СКВ. Например, гетерозиготная недостаточность MBL связана с четырехкратным увеличением риска развития бактериальной пневмонии, а гомозиготная недостаточность — с >100-кратным его увеличением.
3. Альтернативный путь. Альтернативный путь имеет преимущество в том, что С3 проходит через спонтанную, хроническую, низкодифференцированную активацию (рис. 4; также см. рис. 2 и 3). С3b может ковалентно образовывать связи с любыми клетками; однако на нормальных собственных клетках усиление каскада блокируется ингибиторами. В отличие от неповрежденных клеток организма, отложение С3b на полисахаридах бактериальных мембран и на других структурах, например на эндотоксинах или поверхности вирус-трансформированных клеток, приводит к быстрой активации альтернативного пути.
Рисунок 4. Пути активации комплемента. В данном каскаде реакции СЗb/СЗ(Н2О) образует связь с проферментным фактором В, а затем СЗbB/ СЗ(Н2О)В комплекс расщепляется фактором протеазы D. Добавление пропердина (Р) к ферментным комплексам увеличивает период полувыведения ферментного комплекса в ~10 раз. Хотя источник СЗb может быть из спонтанной циркуляции или через активацию лектинового и классического пути, петля обратной связи альтернативного пути обычно способствует образованию большего количества С3b, взаимодействующих с мишенями. Альтернативный путь работает непрерывно. Если активированные С3b/С3(Н2О) остаются в жидкой фазе, они быстро ингибируются фактором Н и фактором I регуляторов плазмы. Если активированный С3b образует связь с нормальными или здоровыми собственными клетками, образование конвертазы предотвращается с помощью повсеместно экспрессируемого ко-фактора мембранного протеина (CD46), фактора ускорения распада (CD55) (не показано). Фактор ускорения распада предотвращает образование связей между В и С3b и «выбивает» каталитический домен Bb (временная остановка), но ко-фактор мембранного протеина необратимо останавливается, так как после образования связи С3b протеолитически расщепляется до неактивного С3b (iC3b) с помощью фактора сериновой протеазы. Петля обратной связи является мощной усиливающей системой. Одна бактерия Escherichia coli в крови может быть покрыта несколькими миллионами С3b за пару минут
Быстрая и интенсивная активация системы комплемента по альтернативному пути, аналогично активации комплемента иммунными комплексами, может происходить на поверхностях практически любых биоматериалов, где отсутствуют ингибиторы, например, при экстракорпоральном кровообращении — на мембранах гемодиализа, наночастицах и т.д.
Во время спонтанной активации, называемой холостой работой, постоянно образуется небольшое количество активированных С3 (скорость превращения С3 в крови — 1-2%/ч). Это может провоцировать активацию петли обратной связи и расщеплять большее количество С3 до С3b. Компоненты С3b также могут быть получены при активации классического или лектинового пути. Поэтому активация комплемента одним из трех путей потенциально может быть быстро усилена.
С3 конвертаза альтернативного пути отрицательно контролируется (для поддержания гомеостаза) в жидкой фазе и на клетках хозяина двумя доминирующими белками плазмы и двумя экспрессированными белками на поверхностных мембранах клеток организма.
Центральная роль альтернативного пути как усилителя активации комплемента подтверждается клиническими наблюдениями при развитии патологии по причине недостаточной регуляции системы комплемента (см. табл. 6 и табл. 7). Например, множественные формы мембранозно-пролиферативного гломерулонефрита вызваны избыточным отложением фрагмента С3 в почках из-за присутствия АТл (С3/С4 нефритовые факторы), которые стабилизируют С3 конвертазы или генетически обусловленной недостаточностью регулирующего белка комплемента (фактор Н/фактор I).
Другим примером может служить атипичный ГУС (не связанный с предшествующей энтеропатической инфекцией с шига-подобным токсином), возникает у людей со скрытыми гетерозиготными миссенс-мутациями в факторе Н, МСР и факторе I либо с мутациями в факторе В/С3. Исследования геномной связи и секвенирование позволяют установить связь между возрастной макулярной дегенерацией и мутациями функционального кодирования в факторе Н и факторе I и реже в факторе В и С3.
И наконец, роль нарушений регуляции альтернативного пути активации системы комплемента показана в экспериментах на животных — при создании моделей РА, СКВ и васкулитов с положительным АТл к цитоплазме нейтрофилов (ANCA).
4. С3 и С5 конвертазы. На компоненте С3 сходятся все три пути активации системы комплемента. Примечательным свойством С3 является наличие тиоэфирной связи. Внутри трехмерной структуры белка С3 находится γ-карбоксигруппа остатков глютаминовой кислоты, связанная с цистеином во «внутреннем тиоэфире». После расщепления в течение нескольких микросекунд может возникнуть ковалентная связь через эфирную или амидную связь с любой расположенной рядом гидроксил-/аминогруппой.
Большинство связей расщепленного тиоэфира гидролизуются водой для образования С3 [известен как С3(Н2О)]; однако возможно также образование амидной или эфирной связи с аминогруппами или углеводородами, вследствие этого происходит ковалентное прикрепление С3b к поверхности. Также, помимо присоединения С3b к С4b2а (С3 конвертаза классического или лектинового пути)/С3bBb (С3конвертаза альтернативного пути), формируется конвертаза для С5 (С3bВbС3b для альтернативного пути и С4bС2аС3b для классического или лектинового пути).
5. Регуляторы активации комплемента на этапах С3 и С5. Регуляторы активации комплемента (см. табл. 2) ограничивают выработку С3b в основном с помощью С3 конвертаз альтернативного пути. Из-за того что добавление С3b к С3 конвертазе превращает ее в С5 конвертазу, регуляция двух ферментных комплексов представляет собой взаимосвязанный процесс. Модуляция активности конвертаз на клетках хозяина ограничивает процесс разрушения тканей и выработку провоспалительных медиаторов.
Белки, регулирующие активацию комплемента, осуществляют контроль активации с помощью двух основных механизмов. Активность ускорения распада — это процесс образования ингибитором временных связей с C3b/C4b в конвертазе, тем самым провоцируется разрыв связи с другими членами комплекса, и фактор остается в неактивном состоянии (проферментом), поскольку удален каталитический домен протеазы.
Вторым механизмом, позволяющим регулировать активацию комплемента, служит контроль за активностью ко-факторов, то есть за процессом взаимодействия C3b/C4b компонентов с ко-факторами плазменного белка. После такого взаимодействия протеаза фактор I расщепляет C3b/C4b.
Расщепление С3b фактором I оставляет конвертазу необратимо неактивной (образует iC3b, который не может принимать участие в формировании конвертазы).
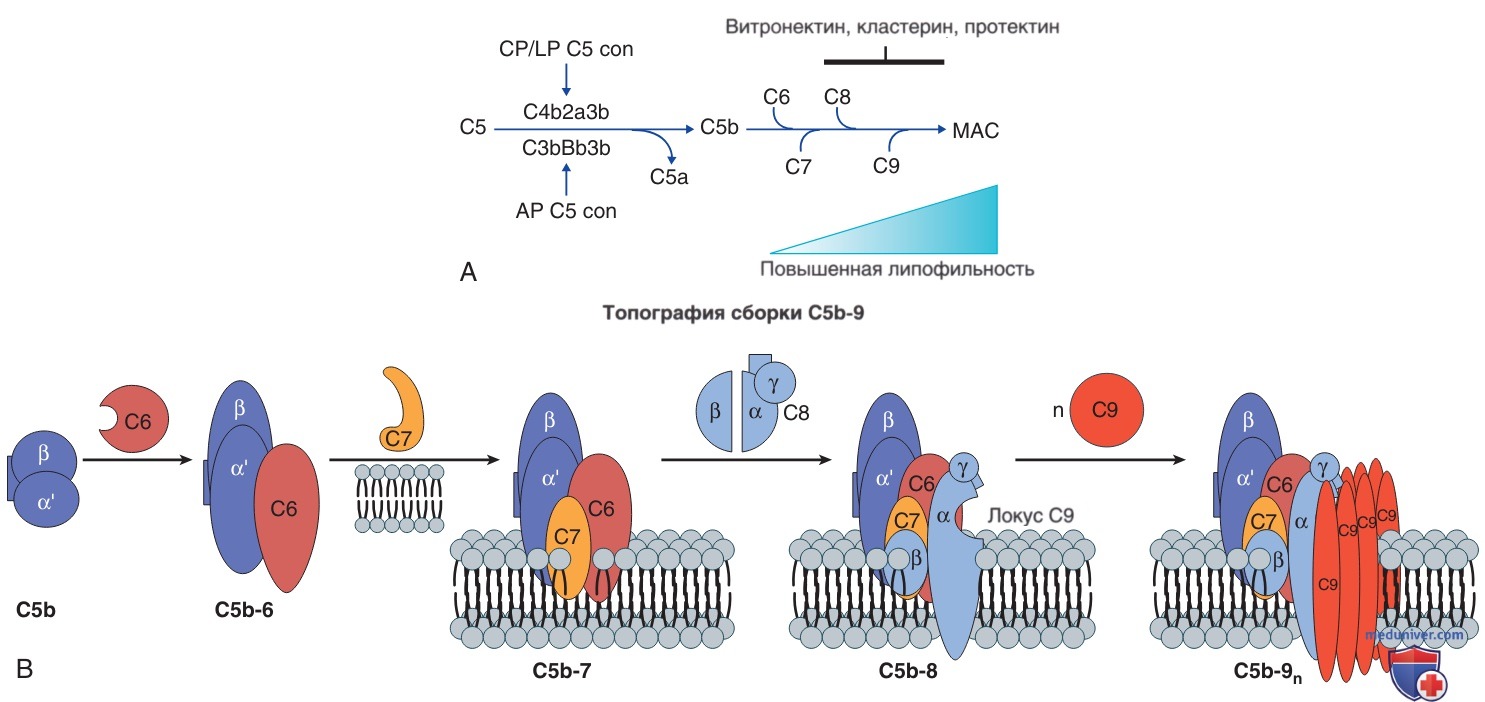
6. Мембраноатакующий комплекс. При расщеплении С5 образуется С5а, наиболее мощный анафилатоксин системы комплемента, и C5b. С5b связывается с С6 и С7, создается липофильный тример — начальный этап формирования МАС (рис. ниже). C5b67 тример внедряется в билипидный слой поверхностной мембраны клеток и служит местом образования связей с С8 и С9. С9 самостоятельно поляризуется, что приводит к образованию 12-18 молекул С9, образующих структуру кольца, завершающего формирование МАС. МАС напоминает пончик с 10-нм отверстием в центре. Такая пора позволяет воде и ионам попадать в клетки, вызывая осмотический лизис.
Активация С5 и мембраноатакующего комплекса. А. С5 конвертазы (con) являются такими же, как и С3 конвертазы, за исключением того, что С3b прикреплен к С4bС2а/второму С3b в случае С5 конвертазы альтернативного пути. B. Схематическое представление сборки мембраноатакующего комплекса на клеточной мембране. С5b (состоит из двух цепей) образует связь с С6, а затем с С7. Комплекс С5b-7 может быть внедрен в мембрану, а затем связан с С8 (состоит из трех цепей) и множественными С9 для образования поры или канала в мембране. Полное отсутствие С5, С6, С7, С8 и С9 вызывает предрасположенность к инфекциям, вызванным Neisseria, и менингококковым инфекциям, но не к другим инфекционным агентам или иммуноопосредованным заболеваниям. Не показано (см. рис. 4), что пропердин стабилизирует обе конвертазы С5 и обычно является необходимым для достаточной активности конвертазы С3 и С5
Многие грамположительные бактерии имеют капсулу, позволяющую им проявлять устойчивость к лизису под действием МАС системы комплемента, в связи с чем основным средством элиминации таких патогенов является их опсонизация с последующим фагоцитозом.
МАС считается незаменимым только для выведения Neisseria spp. Люди с полным отсутствием С5, С6, С7, С8 и С9 находятся в группе повышенного риска только для менингококковых и гонококковых инфекций. Недостаточность С9 является распространенным иммунодефицитом в Японии с гетерозиготной частотой встречаемости 3-5%. Поэтому гетерозиготная недостаточность не считается опасной для популяции в целом.
Мощная активация комплемента во время воспалительного ответа может привести к образованию большого числа МАС и лизису собственных клеток. Однако собственные клетки имеют механизмы для сопротивления осмотическим изменениям, вызванным МАС, и блокирования сборки МАС после его формирования (белок известен как протектин/CD59). Более вероятно, что в патологии принимают участие нелетальные эффекты отложения МАС. В большинстве клеток это происходит с помощью механизмов общей активации множественных внутриклеточных сигнальный путей.
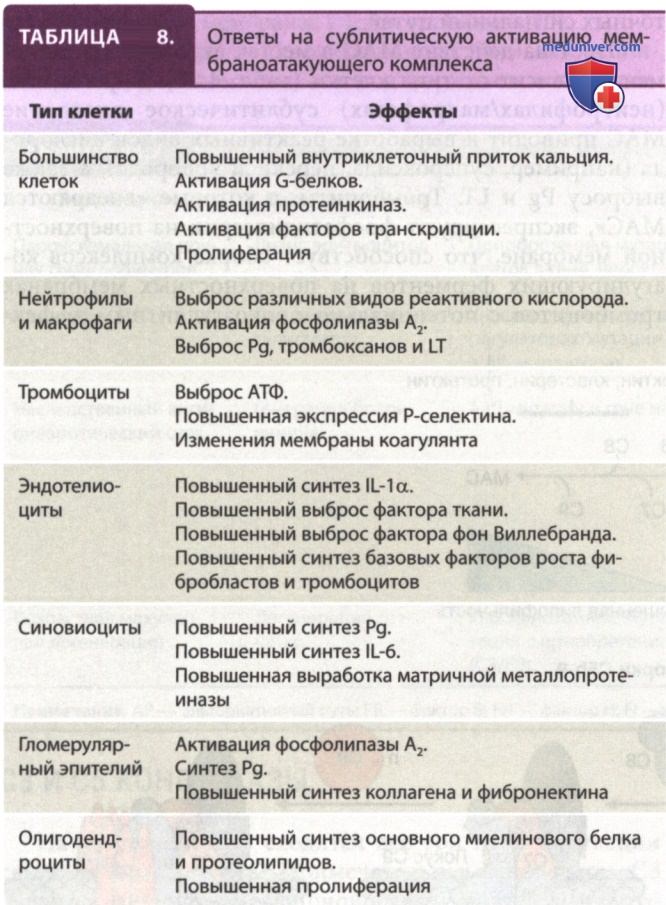
Ответ на действие МАС в местах активации комплемента зависит от типа клетки (табл. 8). В фагоцитах (нейтрофилах/макрофагах) сублитическое внедрение МАС приводит к выработке реактивных видов кислорода (например, супероксида, перекиси водорода), а также выбросу Pg и LT. Тромбоциты, в которые «внедряются МАС», экспрессируют фосфатидилсерин на поверхностной мембране, что способствует сборке комплексов коагулирующих ферментов на поверхностных мембранах тромбоцитов с потенциально прокоагулянтным эффектом.
Отложения МАС на эндотелиоцитах индуцируют синтез IL-la, что приводит к дальнейшей аутокринной и паракринной активации эндотелиоцитов. Эти процессы стимулируют прокоагулянтное состояние с помощью: 1) изменения состава фосфолипидов эндотелиальной мембраны; 2) индуцирования синтеза тканевых факторов и повышенной регуляции синтеза ингибитора активатора плазминогена; 3) повышенной регуляции экспрессии адгезионных молекул, включая внутриклеточную адгезионную молекулу 1 и Е-селектин; 4) стимулирования пролиферации эндотелиоцитов с помощью выработки фактора роста.
Таким образом, образование на поверхности клеток сублитических уровней МАС приводит к потенциально опасной ситуации — развитию воспаления, нарушению процессов коагуляции и к пролиферации клеток.
Такой ответ необходим в местах травм для удаления патогенов и остатков разрушенных клеток организма и для заживления ран. Небольшая длительность активации системы комплемента под контролем ингибиторов помогает поддерживать равновесие в этой системе.
Регулирование интенсивности формирования МАС является клинически важным процессом (рис. 5). Два белка плазмы, кластерин и S-белок (витронектин), образуют связь с комплексом С5b-7 и предотвращают его связывание с билипидными слоями мембран. С8 и множественные молекулы С9 присоединяются к этому растворимому и практически неактивному комплексу, называемому растворимый C5b-9. CD59 (протектин) служит в качестве мембраносвязывающего ингибитора МАС. Этот небольшой гликопротеин крепится к клеточной мембране через хвостовую часть молекулы — гликозил фосфатидилинозитол (GPI-якорь).
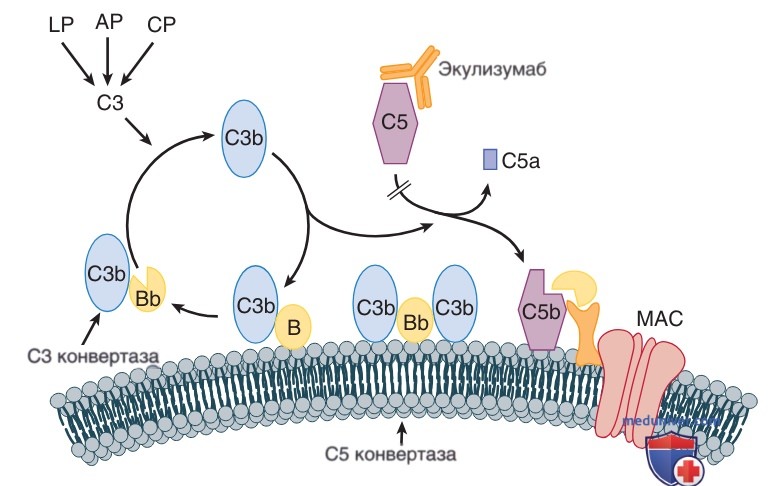
Рисунок 5. Активация комплемента и механизм действия экулизумаба [моноклональное антитело (mAb) к С5]. Альтернативный путь постоянно «работает вхолостую», но также может быть праймирован классическим путем и лектиновым путем. Сформированный СЗb взаимодействует с фактором В, который затем расщепляется фактором D для формирования конвертазы С3 (СЗBb). С увеличением количества образованного С3b часть образует связи с конвертазой С3 для формирования конвертазы С5. Моноклональное антитело к С5 (экулизумаб) предотвращает расщепление компонента С5 конвертазой С5. Не показано, что пропердин образует связи с конвертазами С3 и С5 для увеличения их периода полувыведения в 5-10 раз (с 30 с до нескольких мин)
Он образует связь с С5b-8, внедренным в клеточную мембрану, для предотвращения образования связей с С9 и их дальнейшей полимеризации. У пациентов с пароксизмальной ночной гемоглобинурией нарушена экспрессия CD59 из-за отсутствия синтеза якорного GPI, используемого этим и многими другими мембранными белками (включая фактор ускорения распада DAF) для внедрения в клетку. Клиническими проявлениями пароксизмальной ночной гемоглобинурии в основном являются хронический гемолиз и временный тромбоз.
Причиной гемолиза является активация комплемента на эритроцитах из-за недостатка DAF и в частности CD59. Вероятно, тромбоз является последствием внутрисосудистой активации комплемента, приводящей к активации эндотелиоцитов, а генетически детерминированной причиной может служить мутация в гемопоэтических стволовых клетках, в гене на Х-хромосоме, ответственном за кодирование первого фермента в пути, — для синтеза якорного GPI-белка.
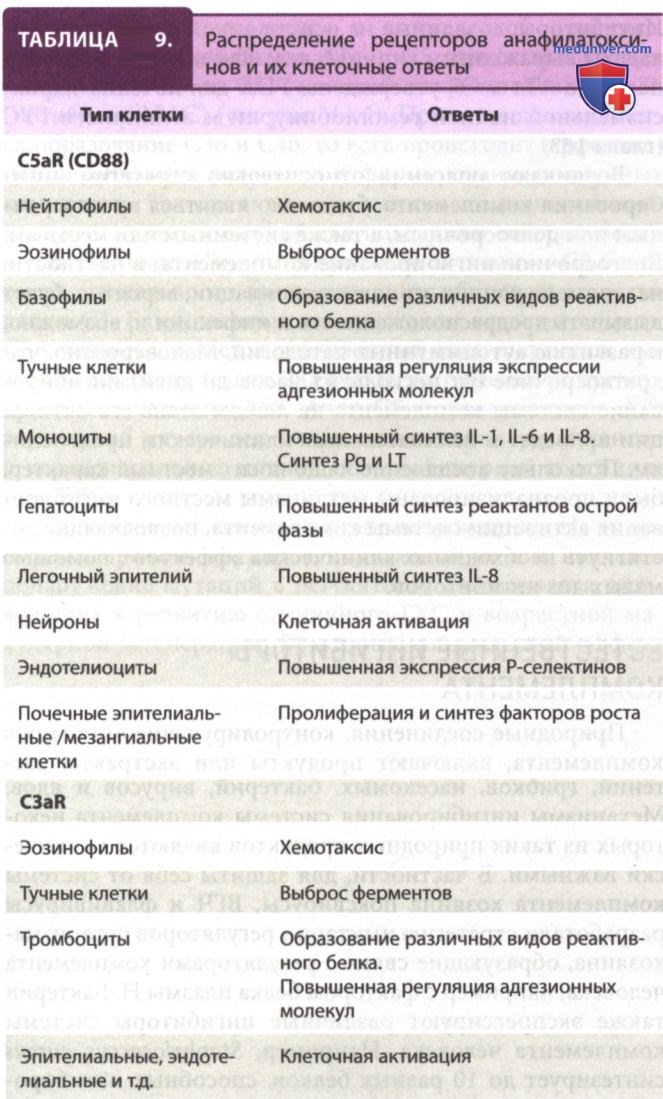
7. Анафилатоксины. Анафилатоксины играют ключевую роль на раннем этапе запуска местного воспалительного ответа, так как они активируют клетки к взаимодействию с патогенами или травматическими воздействиями (табл. 9). Аналогично МАС анафилатоксины — это еще один основной источник потенциального патологического повреждения собственных тканей вследствие активации комплемента. Такие пептиды, как С3а и С5а, образуются путем расщепления их соответствующих белков во время активации комплемента.
Это 77 (С3а) и 74 (С5а) аминокислоты, содержащие ключевой карбокси-(С)-терминальный аргинин. Они взаимодействуют с рецепторами анафилатоксинов. В плазме С-терминальный аргинин выводится с помощью карбоксипептидазы-N из анафилатоксинов, не связанных с рецепторами. В зависимости от силы ответа такое удаление полностью инактивирует анафилатоксины или снижает их активность в 100 раз.
Рецептор С5а [C5aR (CD88)] — это 7-спиральный трансмембранный белок, соединяющий лиганды и образующий связь с G-белками. Экспрессированные на миелоидных клетках, в частности на нейтрофилах и эозинофилах, C5aR (CD88) обуславливают активацию хемоаттракции. Передача сигналов через CD88 приводит к быстрой дегрануляции клеток, освобождению из гранул клеток ферментов — липазы и протеазы, а также лактоферрина из гранул нейтрофилов, пероксидазы, главного основного белка и катионных белков из эозинофилов.
С5а также индуцирует синтез цитокинов, например ФНО, IL-1, IL-6, IL-8, и адгезионных молекул, что способствует запуску и поддержанию воспалительного ответа.
C5aR экспрессируются клетками многих тканей, включая гепатоциты, бронхиальный и альвеолярный эпителий, эндотелий сосудов, почечные мезангиальные или трубчатые эпителиальные клетки, а также нейроны ГМ. Такие клетки активируются с помощью С5а, что приводит к выработке и освобождению цитокинов, хемокинов и Pg, а также к клеточной пролиферации.
Рецептор С3а также является 7-спиральным трансмембранным белком. Он экспрессируется практически на всех миелоидных клетках, включая тучные клетки, его активация приводит к освобождению медиаторов аллергии. C3aR обнаружены на клетках многих тканей организма, включая ЦНС и легкие.
Анафилатоксины обладают многими биологическими свойствами. Они способны вызывать сокращение гладкой мускулатуры, служить хемоаттрактантами для гранулоцитов, моноцитов и тучных клеток. В этом смысле анафилатоксины могут принимать участие в патофизиологии любого воспалительного процесса. В модельных экспериментах показано, что С3а и С5а играют роль в таких заболеваниях, как ОРДС, СПОН, септический шок, миокардиальное ишемически-реперфузионное повреждение, БА, РА, СКВ и ВЗК.
Пептиды анафилатоксина также отвечают за постгемодиализный синдром, наблюдаемый у пациентов после сердечно-легочного шунтирования или гемодиализа, поскольку к активации системы комплемента может приводить взаимодействие крови с поверхностями диализных мембран. В течение нескольких минут после начала шунтирования происходит резкое повышение уровней С3а и С5а в экстракорпоральном контуре с последующим возвратом крови в организм пациента. Увеличение уровней С3а и С5а может наблюдаться при ДН, легочной гипертензии и отеке легких.
Показано, что продолжительность времени, в течение которого пациент остается на ИВЛ после шунтирования, соответствует уровню С3а, достигнутому во время реперфузии.
Компоненты С3а и С5а участвуют на начальных этапах формирования и пролонгирования ОРДС и СПОН. Уровни С3а повышаются после тяжелых травм, что предполагает активацию всего пула циркулирующих С3. Такая активация приводит к бронхостенозу, повышенной сосудистой проницаемости, гипотензии и закупорке сосудов лейкоцитами. Активация лейкоцитов крови способствует формированию повторных циклов повреждения тканей и дальнейшей активации комплемента. Постоянное повышение С3а при шоке или ОРДС является признаком плохого прогноза. Также считается, что С3а и С5а играют основную роль в патогенезе БА.
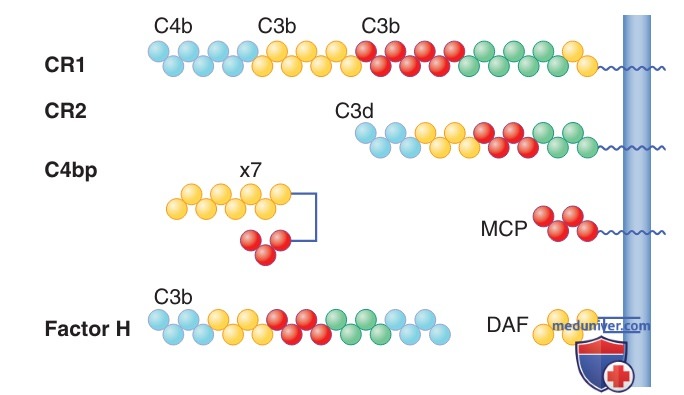
8. Рецепторы комплемента. Опсонизация патогенов с помощью С4b и С3b компонентов является эффективным механизмом предотвращения инфекций, так как эти два фрагмента комплемента (и дальнейшее расщепление продуктов в случае С3b) служат лигандами для рецепторов к компонентам комплемента (рис. 6). После ковалентного связывания С4b и С3b с поверхностью микроорганизма и клетками иммунной системы, в основном нейтрофилами, моноцитами и макрофагами, образуется адгезивная связь клеток с патогеном.
Рисунок 6. Модель регуляторов комплемента, необходимых для ингибирования активации системы комплемента на собственных клетках на этапах расщепления С3 и С5. Кругами отмечены отдельные дупликации контроля за комплементом (~60 аминокислот каждая), а затемненной областью отмечены более высокоорганизованные блоки, состоящие из нескольких дупликаций. Указаны приблизительные места для образования связей фрагментов С3b и С4b. Фактор Н и С4Ьр являются белками плазмы. С4bp — С4-связывающий белок; CR — рецепторы к компонентам комплемента; DAF — фактор ускорения распада; МСР — ко-фактор мембранного протеина
Опсонины комплемента являются высокоэффективными медиаторами иммунной адгезии с дальнейшим поглощением опсонизированного патогена фагоцитами. С4b и С3b связываются с иммунными комплексами и с поверхностью эритроцитов, передвижение таких «нагруженных» эритроцитов по кровяному руслу способствует дальнейшему выведению иммунных комплексов из организма на этапе передачи С4b/С3b-связанных иммунных комплексов моноцитам и макрофагам в печени и селезенке. CR1 является особо эффективным в иммунной адгезии.
Протеолитическая модификация С3b приводит к образованию iС3b, который является лигандом для CR3 и CR4 на фагоцитах. Дальнейший распад iC3b до C3d приводит к взаимодействию с CR2 и способствует снижению порога активации В-лимфоцитов. В целом этот процесс способствует: 1) разрушению микроорганизмов и их элиминации с помощью фагоцитоза и 2) покрытию АГн микроорганизмов для дальнейшей активации адаптивного иммунного ответа. Например, фолликулярные дендритные клетки и В-лимфоциты экспрессируют CR1, CR2, CR3 и CR4, облегчающие связывание, интернализацию и представление комплементом покрытых АГн другим иммунным клеткам.
CR3 и CR4 способствуют фагоцитозу, a CR2 на фолликулярных дендритных клетках способствует формированию иммунологической памяти.
б) Ингибиторы комплемента. При ряде заболеваний, в патогенезе которых гиперактивация системы комплемента играет важную роль, ЛП ингибиторов комплемента в качестве таргетных стратегий проходят доклинические и клинические исследования (см. табл. 2 и рис. 6). Такие ингибиторы имеют несколько форм. Некоторые из них являются вариантами физиологических ингибиторов, другие — продуктами создания новых соединений на основе результатов молекулярных исследований.
Важно учитывать, в каком моменте активации комплемента должен действовать ингибитор. Ингибирование путей активации ограничивает выработку биологически активных пептидов. Ингибирование активации С3 не только предотвращает образование С3а анафилатоксина, но также приводит к более выраженной восприимчивости пациентов к инфекциям путем ограничения отложения С3b на поверхности микроорганизмов в качестве опсонина. Ингибирование отложения С3b снизит интенсивность процесса выведения иммунных комплексов из организма, что потенциально может способствовать повреждению кровеносных сосудов почек и легких. Также это может способствовать формированию АТл к собственным АГн.
Ингибирование конвертаз С5 может служить целью развития новых таргетных подходов по предотвращению образования анафилатоксина С5а и МАС (см. рис. 5). Такая стратегия приведет к ингибированию каскада комплемента, не ограничивая при этом отложение С3b. Ингибиторы, созданные на основе такой концепции, обладают выраженным клиническим эффектом — моноклональные АТл к С5 утверждены FDA для лечения пароксизмальной ночной гемоглобинурии и атипичного ГУС.
Возникают опасения относительно стратегии ингибирования комплемента: будет оно являться краткосрочным или долгосрочным, а также системным или местным. Долгосрочное ингибирование комплемента, в частности, на одном из ранних этапов его активации, вероятно, будет вызывать предрасположенность к инфекции и, возможно, к развитию аутоиммунных патологий. Маловероятно, что краткосрочное (от нескольких часов до дней) ингибирование системы комплемента на любом этапе его активации приведет к нежелательным клиническим проявлениям. Поскольку воспаление чаще носит местный характер, были проанализированы механизмы местного ингибирования активации системы комплемента, позволяющие достигнуть необходимых клинических эффектов с помощью малых доз ингибиторов.
1. Естественные ингибиторы комплемента. Природные соединения, контролирующие активацию комплемента, включают продукты или экстракты растений, грибков, насекомых, бактерий, вирусов и ядов. Механизмы ингибирования системы комплемента некоторых из таких природных продуктов являются клинически важными. В частности, для защиты себя от системы комплемента хозяина поксвирусы, ВГЧ и флавивирусы разработали стратегию имитации регуляторов организма-хозяина, образующие связи с регуляторами комплемента человека, например с фактором белка плазмы Н. Бактерии также экспрессируют различные ингибиторы системы комплемента человека.
Например, Staphylococcus aureus синтезирует до 10 разных белков, способных ингибировать практически каждый ключевой этап каскада комплемента. Фактор яда кобры — измененная форма С3b, секретируемого ядовитыми железами в ее ротовой полости. Это 144 000-далтон гликопротеин, который формирует конвертазу альтернативного пути, связанную с фактором В хозяина. После введения фактора яда кобры происходит активация альтернативного пути, что приводит к шоку и повреждению микрососудов легких у экспериментальных животных. Фактор яда кобры является устойчивым ко всем ингибиторам организма хозяина.
Возможно, наиболее распространенным природным ингибитором активации комплемента является гепарин. Он снижает интенсивность активации классического и альтернативного пути. В клинической практике антикомплементарный эффект гепарина используется для предотвращения активации комплемента во время сердечно-легочного шунтирования. Измерение продуктов активации комплемента, например СЗа/растворимого С5b-9, после шунтирования показывает снижение интенсивности активации комплемента на 35-70% у взрослых и детей при использовании покрытого гепарином экстракорпорального контура; в настоящее время проводятся исследования по оценке клинического эффекта снижения интенсивности активации комплемента и клинических исходов.
2. Анти-С5. Наиболее известным ингибитором активации комплемента, использующимся в клинической практике, является моноклональное АТл к С5, предотвращающее расщепление С5 до С5а (мощный анафилатоксин) и C5b (ингибитор МАС) (см. рис. 5). При этом не отменяется образование С3b и С4b, то есть происходит эффективная опсонизация патогенов и формирование иммунных комплексов. Так как активация ранних компонентов комплемента является важной для поддержки толерантности к собственным АГн, ингибирование активации С5 более предпочтительно по сравнению с ингибированием активации C3.
Единственным последствием недостаточности С5 у человека является повышенный риск инфекций, вызванных Neisseria, которые могут предотвращаться вакцинацией. Анти-С5 моноклональное АТл экулизумаб утвержден для использования у пациентов с пароксизмальной ночной гемоглобинурией и атипичным ГУС.
Система комплемента на этапе возрождения. На то несколько причин, но, вероятно, главной из них является обнаружение мутаций в регуляторах комплемента, приводящих к развитию атипичного ГУС и возрастной макулярной дегенерации. Во-вторых, клинический эффект применения моноклональных АТл к С5 при лечении атипичного ГУС и пароксизмальной ночной гемоглобинурии. В-третьих, успешность стратегии введения очищенного C1-INH, ингибиторов калликреина и антагониста рецептора брадикинина для предотвращения и лечения отеков при наследственном ангионевротическом отеке.
И наконец, получены данные, свидетельствующие о роли системы комплемента в патофизиологии многих заболеваний, включая возрастную макулярную дегенерацию, ишемически-реперфузионное повреждение, патологическую регенерацию органов, развитие патологий ГМ, ожирение, БА, феномен активации Т-клеток, связанный с аллергическими и ревматическими заболеваниями, и ряд других.
Видео №1: схема классического пути активации комплемента
Видео №2: схема альтернативного пути активации комплемента