а) Определение. В клинической практике производятся трансплантации различных органов и тканей, например островков Лангерганса, содержащих инсулин-продуцирующие β-клетки, при этом необходимо преодолеть РТПХ для предотвращения отторжения. Производят также трансплантацию кроветворных клеток (НСТ, hematopoietic cell transplantation), при которой необходимо справиться не только с РТПХ, но также с иммунной РХПТ.
Поскольку костный мозг или мобилизованные стволовые клетки периферической крови (mPBSC, mobilized peripheral blood stem cells) содержат зрелые Т-лимфоциты, их введение ИКП связано с риском развития РТПХ. К числу трансплантируемых органов и тканей относят роговицу, почки, печень, сердце, легкие, тонкую кишку, ПЖЖ, руки и лицо. Трансплантаты, полученные от того же самого вида животных, называются аллотрансплантатами, а трансплантаты от других видов животных называются ксенотрансплантатами.
Полагают, что в будущем возможно использование в клинической практике ксенотрансплантации органов и тканей. Аутогенные трансплантации — это трансплантации тканей или клеток, полученных от реципиента с помощью процессирования клеток из собственного органа реципиента (например, островки Лангерганса после панкреатэктомии при хроническом панкреатите) или популяций клеток (например, CD34+ гемопоэтических клеток-предшественников и стволовых клеток, собранных при проведении лейкафереза либо после мобилизации их из костного мозга до высокодозированного облучения или XT при лечении рака).
В будущем для решения разнообразных клинических задач планируют проведение трансплантаций аутогенных клеток, полученных из стволовых клеток.
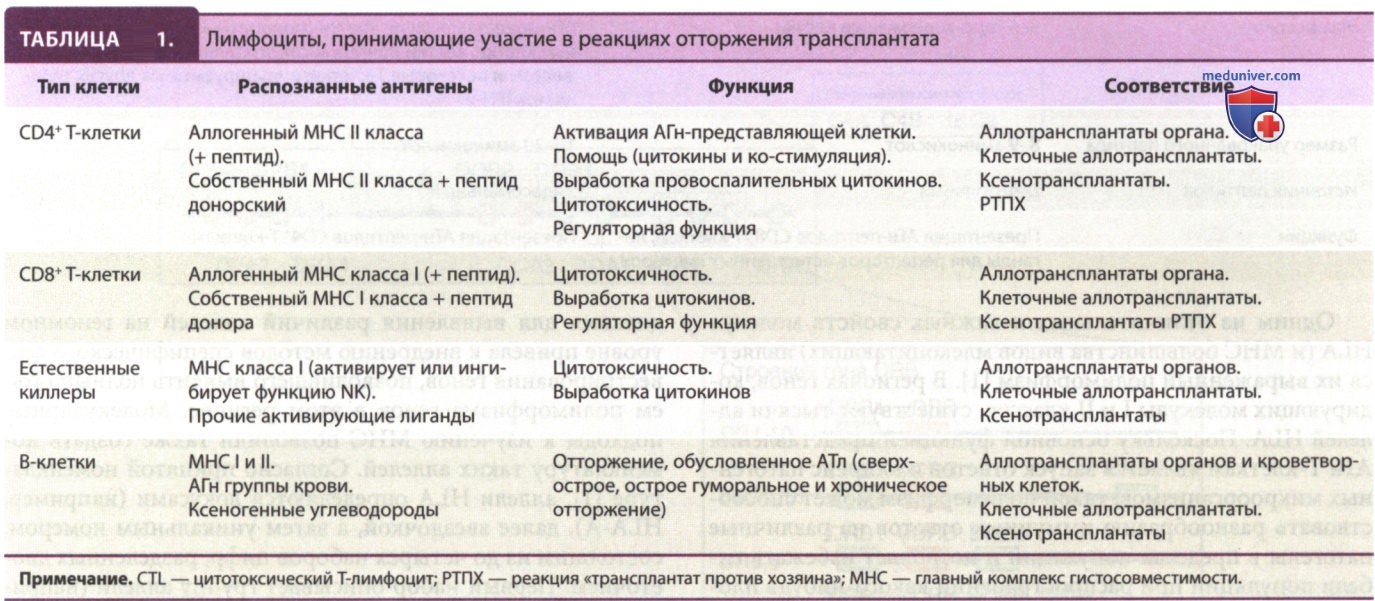
Основные АГн, распознаваемые иммунной системой реципиента при отторжении трансплантата, и типы клеток, распознающих такие АГн, кратко представлены в табл. 1.
б) Основные антигены гистосовместимости. МНС и HLA у всех людей контролируют адаптивные и в некоторой степени врожденные иммунные ответы и играют важную роль в патогенезе многих иммуноопосредованных заболеваний. МНС также представляет собой самое большое иммунологическое препятствие для всех типов аллотрансплантаций. Молекулы HLA включают две основные изоформы, называющиеся молекулами I и II класса, и кодируются большим семейством генов, локализованных на коротком плече VI хромосомы.
Хотя все молекулы HLA имеют общую структуру, молекулы класса I и II класса характеризуются разными типами экспрессии: МНС I класса экспрессируются на большинстве клеток организма, а АГн II класса в основном экспрессируются на АГн-представляющих клетках, например дендритных клетках, макрофагах и В-лимфоцитах, а также эпителиальных клетках тимуса, принимающих участие в селекции Т-лимфоцитов. МНС II класса также могут экпрессироваться эндотелиоцитами и активированными Т-лимфоцитами.
Функцией двух классов молекул МНС является представление пептидных АГн Т-клеточным рецепторам — процесс, обеспечивающий запуск реакций адаптивного иммунитета. Обычно в молекулах I класса презентируются 8- и 9-аминокислотные пептиды чужеродных, например вирусных цитозольных, белков. Такие пептиды переносятся из цитоплазмы вирус-трансформированной клеткой в эндоплазматический ретикулум, упаковываются в молекулы I класса и экспрессируются на поверхности клетки. CD8 молекулы взаимодействуют с α3 доменом тяжелой цепи МНС I молекулы.
В молекулах МНС II класса представляются пептиды, состоящие из 10-20 аминокислотных остатков, полученных из экзогенных белков (например, фагоцитированных бактерий). Процессинг экзогенных АГн производится с помощью эндосомального пути, комплекс МНС II АГн-пептид распознается Т-клеточными рецепторами CD4+ Т-лимфоцитов, при этом молекулы CD4 усиливают общее взаимодействие Т-клеток и АГн-представляющих клеток. Презентацию вирусных белков в молекулах МНС I класса осуществляют практически все клетки организма.
Механизм МНС I — презентации антигенов играет основную роль в элиминации клеток, инфицированных вирусами. В молекулах МНС I класса возможно также представление пептидов, полученных из экзогенных АГн. Такой феномен называется кросс-презентацией и приводит к перекрестному праймированию CD4+ Т-лимфоцитов. МНС II презентация экзогенных АГн производится в основном профессиональными АГн-представляющими клетками CD4+ Т-лимфоцитам и приводит к запуску иммунных ответов.
АГн-представляющие клетки способны также представлять пептиды экзогенных патогенов в молекулах МНС I класса, обеспечивая «помощь» CD8+ цитотоксическим Т-лимфоцитам (CTL). В-лимфоциты распознают АГн-пептиды поверхностными Ig-рецепторами. Интернализация АГн-пептидов, процессинг в эндосомах и экспрессия в молекулах МНС II класса на поверхности В-лимфоцита приводит к взаимодействию В-клетки и CD4+ Т-лимфоцита, распознающего этот же АГн. Такое взаимодействие В- и Т-лимфоцитов, распознающих одинаковые аллоАГн, необходимо для развития гуморального ответа.
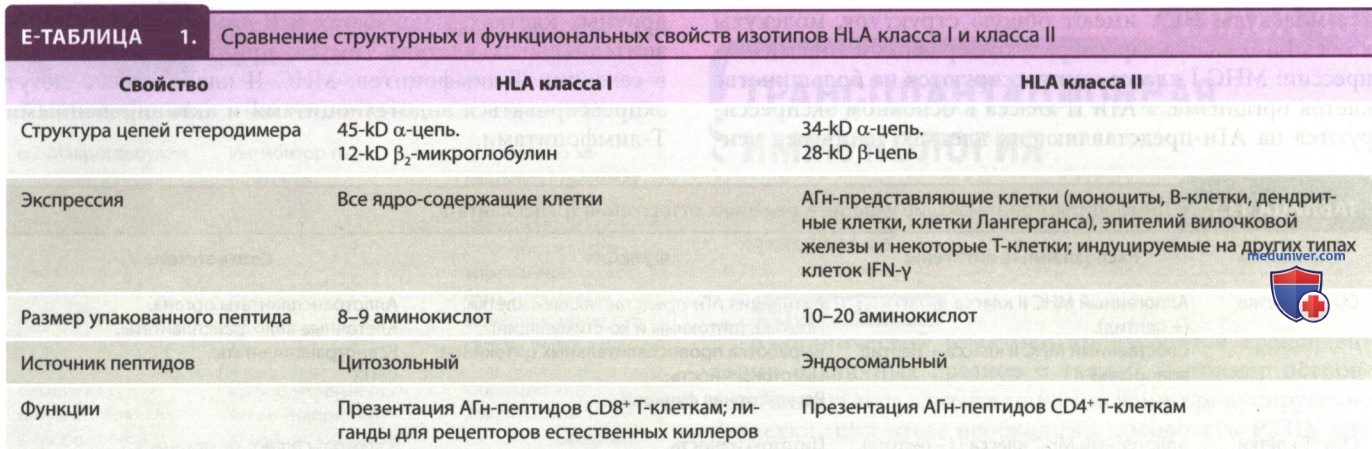
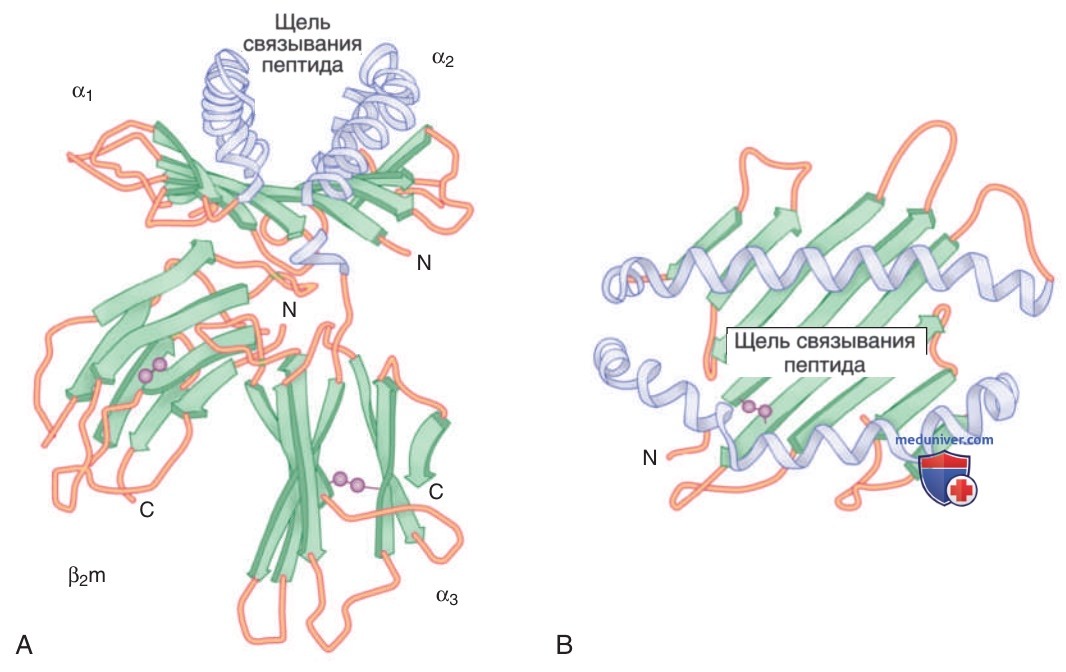
Различия в структуре молекул МНС I и II классов приведены в Е-табл. 1. Для изучения структуры проводили кристаллизацию либо самих молекул МНС, либо совместно с Т-клеточным рецептором, распознавшим комплекс МНС-АГн-пептид. Структура полостей в молекулах МНС I и II для упаковки АГн является гомологичной для всех типов взаимодействий с Т-клеточным рецептором. АГн-пептиды упаковываются в специальную щель, образованную 0-складками и двумя α-завитками, образующими боковые стенки щели (Е-рис. 1). Т-клеточные рецепторы взаимодействуют с α-завитками молекул МНС и боковыми цепями пептида, связанными в пары, то есть происходит тримолекулярное взаимодействие МНС, пептида и Т-клеточных рецепторов (см. Е-рис. 1).
Рисунок 1. Два вида молекулы HLA класса I. А. Ленточная диаграмма, на которой представлена рентгеновская кристаллографическая структура молекулы HLA класса I (вид сбоку). Структуры β-цепей указаны толстыми зелеными стрелками (в направлении от амино- до карбоксигрупп), а соединительные петли показаны тонкими линиями. α-Завитки показаны фланкирующими, щель связывания пептидов — в верхней части (дистальная часть мембраны) молекулы. Основание (проксимальная часть мембраны) молекулы образовано с помощью нековалентной связи между α3 доменом α-цепи МНС I и β2-микроглобулином (β2m). Б. Вид сверху молекулы: основание щели связывания пептидов состоит из β-складок, фланкированных структурами а-завитков. С = С конец; N = N конец
«Гипервариабельная» часть Т-клеточных рецепторов, образованная в результате V-D (для Т-клеточных рецепторов-β)-J соматических перестроек генов и добавления N в Т-клеточные рецепторы α- и β-цепи, образует АГн-связывающий участок 3 (CDR3), распознающий комплекс МНС и АГн-пептида.
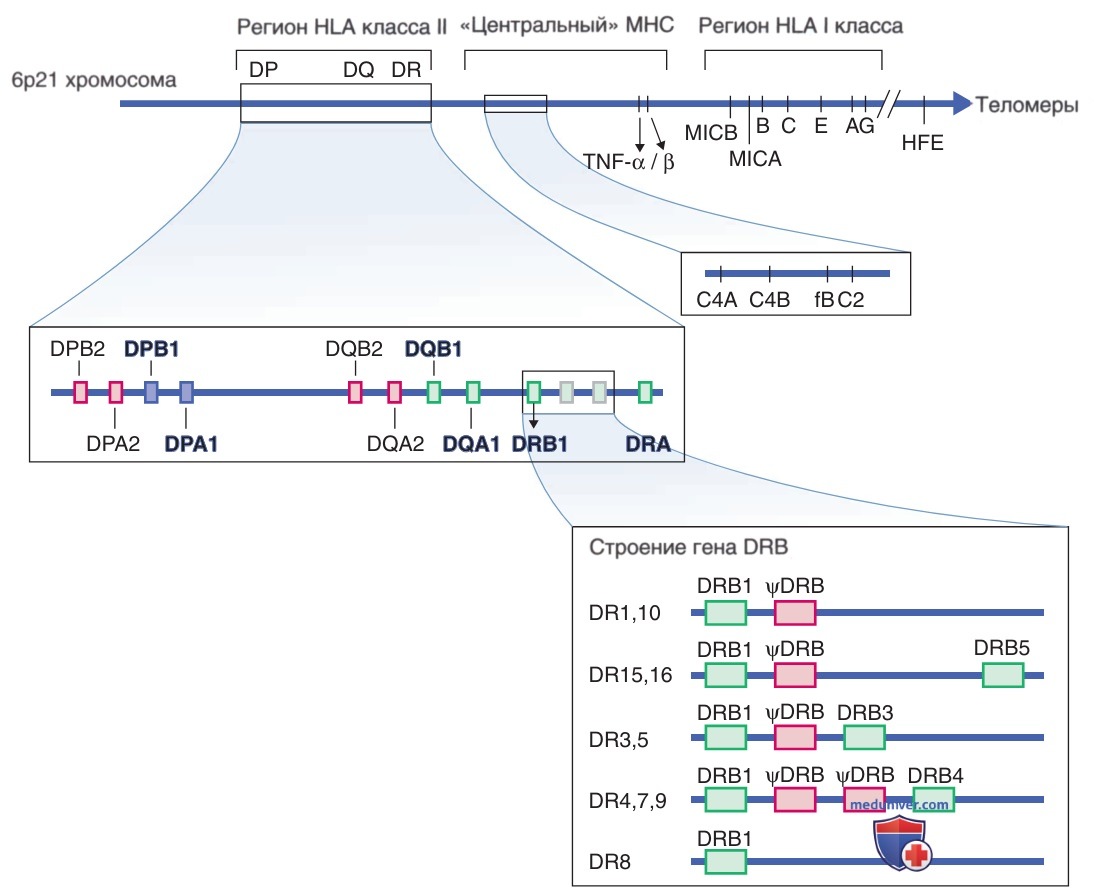
Все молекулы HLA кодируются >200 генами в регионе, содержащем 3,6 млн пар оснований, включая гены комплемента и ФНО, и другие гены, продукты которых, помимо молекул МНС, участвуют в выполнении иммунологических функций. Строение HLA представлено на Е-рис. 2. Регион II класса содержит два гена, кодирующих α- и β-цепи, причем только один из них является функциональным, для каждого HLA-DQ и DP. DR-локус содержит разное количество генов β-цепей для разных аллелей HLA. Некоторые из таких генов DR β-цепей являются псевдогенами. Различные аллели HLA-DR содержат один или два функциональных гена β-цепи.
Рисунок 2. Картирование главного комплекса гистосовместимости (МНС) человека, состоящего - из 3,5 млн пар оснований на коротком плече 6-й хромосомы. Молекулы лейкоцитарных антигенов человека (HLA) I и II классов закодированы в определенных регионах МНС. Регион HLA II класса содержит три подрегиона: DR, DQ и DP. Каждый из этих подрегионов содержит разное количество генов а- и p-цепи. Локусы HLA II класса с известными функциональными продуктами указаны жирным шрифтом. В случае DR в гаплотипах присутствует разное количество генов DRB, некоторые из них являются нефункционирующими псевдогенами (φ). Краткое описание наиболее общих из них показано в окне. Каждый из подрегионов DQ и DP содержит одну пару функциональных генов α- и β-цепи. Регион HLA I класса содержит три «классических» гена молекул I класса — HLA-A, HLA-В и HLA-С, а также гены «неклассических» молекул I класса, например цепь А, связанная с МНС I класса (MICA), цепь В, связанная с МНС I класса (MICB), HLA-Е и HLA-G. Ген семейного гемохроматоза (HFE) обнаружен телометрически в регионе генов HLA I класса, на 3 млн пар оснований удаленный от HLA-A. «Центральный» МНС также содержит ряд генов, связанных с иммунными функциями, например гены компонентов системы комплемента (С4А, С4В, С2 и фактора В), а также ФНО-α и ФНО-β. На рисунке не показано >100 дополнительных генов, многие из которых расположены в центральной части МНС.
Одним из отличительных и важных свойств молекул HLA (и МНС большинства видов млекопитающих) является их выраженный полиморфизм. В регионах генов, кодирующих молекулы I и II классов, существуют тысячи аллелей HLA. Поскольку основной функцией представления АГн Т-клеткам является запуск ответов и клиренс патогенных микроорганизмов, такой полиморфизм может способствовать разнообразию иммунных ответов на различные патогены в пределах популяции и позволяет избежать гибели популяций при распространении какого-нибудь плохо контролируемого иммунной системой человечества патогена.
HLA-аллели определяли ранее только с помощью так называемых иммунных сывороток крови, содержащих множество разнообразных АТл. Однако такой метод не дает информацию о различиях между аллелями, играющими важную роль при связывании АГн и распознавании его Т-клетками. Разработка молекулярных методов исследования для выявления различий аллелей на геномном уровне привела к внедрению методов специфического секвестрирования генов, позволившего выявить полный объем полиморфизма генов в этом регионе. Молекулярные подходы к изучению МНС позволили также создать номенклатуру таких аллелей.
Согласно принятой номенклатуре, аллели HLA определяются локусами (например, HLA-A), далее звездочкой, а затем уникальным номером, состоящим из до четырех наборов цифр, разделенных двоеточием. Первый набор описывает группу аллели (например, HLA-A*02), которая обычно соответствует серологически определенному АГн, а второй набор указывает на специфичную аллель (например, HLA-A*02:101). Третий и четвертый наборы цифр не играют большой роли в трансплантологии, поскольку они определяют молчаливые нуклеотидные замещения в разных аллелях и вариации в нетранслируемых регионах генов соответственно.
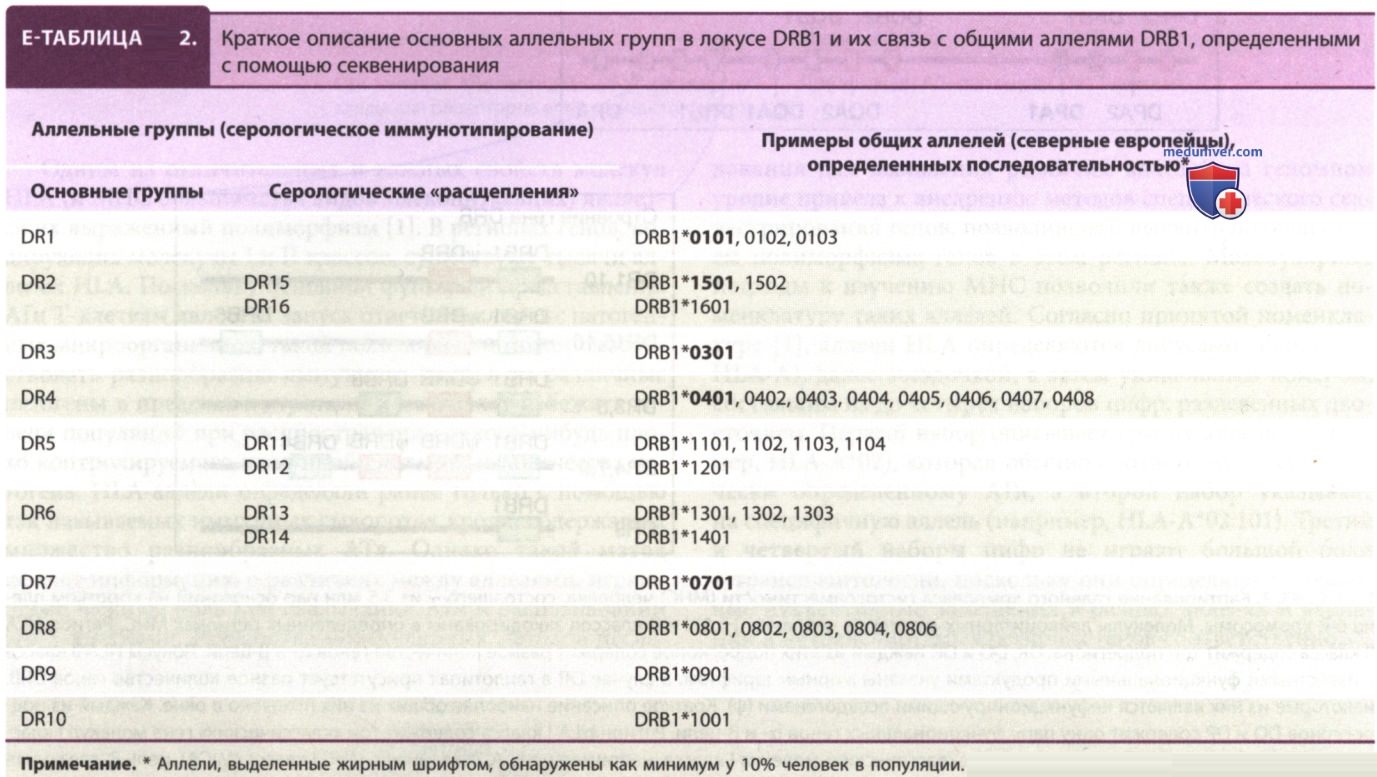
В рамках определенной популяции степень различия в группах аллелей может быть достаточно ограниченной из-за общего генетического происхождения аллели. Например, для изначально серологически определенной группы аллели HLA-DR3 различие среди северных европейцев незначительное, большинство из них несут аллель DRB1*0301. Поэтому для этой популяции необходимо определение серологического типа HLA-DR3 для этой аллели. Существуют аллели, доминирующие в различных расовых группах. Например, среди северных европейцев доминируют всего пять аллелей DRB1, и каждая аллель представлена у 10-30% представителей такой популяции. В Е-табл. 2 кратко представлены основные группы аллелей DRB1, изначально определенные с помощью серологических методов, а позже — с помощью секвенирования генов.
Большинство трансплантаций органов проводятся в отсутствие идентичности HLA реципиента и донора. Разработаны специальные схемы иммуносупрессивной терапии, предотвращающей развитие реакций отторжения трансплантата. В отличие от Т-клеточных ответов на пептидные АГн чужеродных белков, распознающихся лишь небольшой частью наивных Т-клеток (в пределах 1 к 105), основная часть Т-лимфоцитов (по оценкам 1 к 10% Т-клеточного репертуара) распознают аллоАГн МНС. Недавно выполненное секвенирование гипервариабельных регионов Т-клеточных рецепторов Т-клеток, пролиферирующих в ответ на распознавание аллогенных молекул МНС, свидетельствует о большом числе Т-клеточных клонов, принимающих участие в этом ответе.
Выраженная иммуногенность аллогенных молекул МНС связана с отбором Т-клеток в тимусе, при котором развивающиеся тимоциты, слабо распознающие представленные им стромальными клетками тимуса собственные MHC/комплексы пептидов, погибают. Этот процесс называется положительной селекцией. Тимоциты, рецепторы которых имеют высокую аффинность связи с собственны-ми/МНС комплексами, также удаляются апоптозом, это приводит к тому, что аутореактивные Т-клетки редко попадают в кровоток. Аллогенные АГн не являются частью такого процесса отрицательной селекции. Результатом двух этапов отбора и наследственной перекрестной реактивности Т-клеточных рецепторов является то, что «репертуар» Т-клеток распознает аллогенные молекулы МНС, обеспечивая преграду для трансплантации органов и кроветворных клеток.
Долгосрочная фармакотерапия иммуносупрессивными ЛП для предотвращения реакций отторжения трансплантата может быть менее агрессивной при более тщательном подборе донора и реципиента по результатам HLA-типирования. Несмотря на пролонгированную холодовую ишемию тканей при трансплантациях органов от умерших доноров, у детей отмечались более успешные исходы трансплантации почки от умершего донора при более тщательном HLA-типировании по сравнению с плохо совпадающими по системе HLA-трансплантатами от живого донора. Из-за высокой частоты отторжения трансплантатов, обусловленной образованием новых анти-HLA АТл, разрабатываются подходы к более тщательному подбору донора и реципиента по системе HLA, минимизирующие процесс формирования аллоАТл у реципиента к АГн донора.
При трансплантации кроветворных клеток риски развития РТПХ и отторжения трансплантата костного мозга существенно повышены при HLA-несоответствиях. Несоответствия в высокополиморфных молекулах МНС I и II классов приводят к развитию РТПХ. Несмотря на менее выраженный полиморфизм HLA-DPB1, риск развития РТПХ существенно повышается, особенно в случаях, если вариант регуляторного региона rs9277534 является высокоэкспрессирующейся аллелью у реципиента и низкоэкспрессирующейся аллелью у донора. В случае достаточного соответствия аллельного сходства и отсутствия родственного донора обычно проводится анализ реестров миллионов добровольных неродственных доноров. Из-за чрезмерного полиморфизма сложно найти действительно МНС-идентичных, неродственных доноров среди человеческой популяции.
Для людей с общими HLA генотипами вероятность нахождения соответствующего неродственного донора значительно выше, чем для людей с редкими генотипами. В частности, такая ситуация связана с феноменом неравновесия по сцеплению, при котором аллели в соседних локусах появляются вместе на одном сегменте хромосомы или гаплотипе чаще, чем можно ожидать. Паттерн неравновесия по сцеплению различается у разных расовых групп, поэтому шансы найти действительно генотипически идентичный гаплотип выше среди таких популяций.
Последние достижения в способности проводить трансплантацию от альтернативных доноров существенно повысили доступность проведения НСТ для людей с недостаточно HLA-идентичными родственными донорами. Достижения в предотвращении развития РТПХ при трансплантации гаплоидентичных родственных донорских НСТ повысили безопасность использования HLA-несоответствующих НСТ и обеспечили благоприятные исходы при использовании клеток соответствующих неродственных доноров по сравнению с результатами трансплантации клеток соответствующих родственных доноров.
в) Минорные антигены гистосовместимости. «Минорные» АГн гистосовместимости — пептиды полиморфных белков молекул МНС. Даже у близнецов с идентичными HLA могут быть разные минорные АГн гистосовместимости. Наличие таких различий может быть достаточным для запуска реакций отторжения трансплантата в отсутствие иммуносупрессивной фармакотерапии. Реакции РТПХ с достаточной частотой (в ~30-50%) усложняют НСТ между HLA-идентичными близнецами, даже на фоне проведения фармакологической иммунопрофилактики.
г) Прочие антигены. АГн группы крови (АВ0) могут служить мишенями в процессе критического «сверхострого» отторжения, развивающегося при трансплантации органов совместно с их сосудистой ножкой. Распознание АГн группы крови на эндотелиальной поверхности трансплантата «естественными» АТл реципиента (АТл без предварительной сенсибилизации) активирует систему комплемента и каскады коагуляции, это приводит к быстрому тромбозу и ишемии трансплантата. Аналогичный исход может наблюдаться после трансплантации органов реципиенту с предварительно сформированными антидонорскими HLA АТл, в результате предварительной сенсибилизации ранее выполненными трансплантациями, трансфузиями или в результате прошлых беременностей. Наличие АТл против полиморфных АГн, например, цепи А, связанной с МНС I класса, может приводить к отторжению трансплантата.
В прошлом трансплантация могла быть успешной при наличии положительной индивидуальной совместимости АГн группы крови. Однако недавно был получен значительный успех в трансплантации АВ0-несоответствующих почек, печени и сердца (последнее только в неонатальном периоде) и трансплантации почек реципиентам с высокой степенью предварительной сенсибилизации. В случае трансплантации почек и печени к такому успеху привели начальное удаление АТл и в ряде случаев снижение количества В-клеток, а также инфузии в/в иммуноглобулинов. Неонатальные трансплантации АВО-несоответствующего сердца также были успешными, поскольку трансплантации были проведены до того, как у реципиента образовались высокие уровни АТл против АГн АВ0, а В-клетки сохраняли толерантность к АГн донорской группы крови при трансплантации.
Распознание АГн группы крови также может иметь значение при НСТ, при которой АВ0-барьеры пересекаются в двух направлениях: гемолиз эритроцитов реципиента, если отмечается несоответствие в РХПТ-направлении, такое осложнение может быть предотвращено путем промывания трансплантата. Несоответствие в направлении РХПТ может вызывать более серьезные проблемы из-за разрушения донорских эритропоэтических клеток, это приводит к истинной эритроцитарной аплазии. Однако наиболее часто эритропоэз успешно восстанавливается, а антидонорские изогемагглютинины выводятся из кровообращения. С увеличением применения НСТ с несоответствующими донорскими HLA недавно была показана роль HLA-аллоАТл в запуске реакций отторжения трансплантата, при этом для сенсибилизированных реципиентов для проведения аллотрансплантации органов необходимо выполнение процедур десенсибилизации.
АГн группы крови А и В являются следствием присутствия или отсутствия специфичных ферментов гликозилирования. Аналогичным образом АГн-специфичностью первостепенного значения при ксенотрансплантации является углеводный эпитоп, Galα1-3Galβ1-4GlcNAc (αGal), который образуется специфичной галактозилтрансфера-зой; у мартышек и человека может отмечаться недостаток функциональной активности aGal-трансферазы, вследствие этого вырабатываются высокие уровни естественных АТл против универсального αGal-эпитопа.
Поскольку у животных, необходимых в будущем в качестве источников ксенотрансплантатов (например, у свиней), на эндотелии сосудов экспрессируются высокие уровни αGal, трансплантация органов на сосудистой ножке от свиней приводит к развитию реакций сверхострого отторжения трансплантата. Поэтому генетическое выведение свиней с пораженными αGal было важным этапом, способствующим развитию стратегии ксенотрансплантаций. Недавнее распознание мишеней He-Gal-карбогидратными естественными АТл на клетках αGal-дефицитных свиней привело к дальнейшим генетическим модификациям потенциальных источников ксенотрансплантируемых органов, что будет способствовать повышению эффективности существующих техник редактирования генома.
В других типах реакций распознание трансплантата как чужеродного объекта является результатом не наличия в трансплантате каких-либо особых АГн, а следствием отсутствия экспрессии молекул МНС I реципиента. Естественные киллеры экспрессируют ряд поверхностных ингибирующих и активирующих рецепторов, их совместная активность определяет проявление цитотоксичности естественных киллеров по отношению к мишеням. Лигандами для ингибирующих рецепторов служат молекулы МНС I класса, при этом рецепторы распознают специфические группы аллелей. Естественные киллеры могут убивать аллогенные клетки, которым не хватает экспрессии собственных ингибирующих лигандов МНС I. Такой феномен может привести к быстрому отторжению костного мозга в модельных экспериментах и свидетельствует о роли НСТ при несоответствующих HLA.
Возможная роль естественных киллеров в отторжении аллотрансплантатов может быть спорной, но считается, что они являются важными при ксенотрансплантации органов. Естественные киллеры играют важную роль в отторжении ксеногенных кроветворных клеток. Эти механизмы учитывают при разработке подходов для индукции толерантности.
Видео лекция критериев донора легких - отбора и защиты донорского легкого при трансплантации