а) Определение. Поддержание плазменной концентрации [К+] в узком нормальном диапазоне ~3,5-5,0 ммоль/л важно для здоровья. Гиперкалиемия свидетельствует об увеличении [К+] плазмы, а гипокалиемия — о снижении концентрации [К+]. В организме человека во всех жидкостных средах К+ распределяется неравномерно. Приблизительно 2/3 воды в организме находится во внутриклеточном секторе, и К+ считается основным катионом. Поэтому >98% К+ находится в клетках. Избыток общих запасов К+ в организме встречается реже, чем истощение К+, если почечная функция не нарушена.
Адаптация К+ определяет изменения в регуляторных механизмах в результате избытка или дефицита К+.
б) Эпидемиология. К+ распространен в растительных и животных пищевых источниках, поэтому избежать его потребления сложно. Но нарушения баланса К+ распространены в стационарных и амбулаторных условиях. Диеты с повышенным уровнем К+ и пониженным уровнем Na+ приводят к поддержанию более низкого АД и снижают риск ССЗ, включая инсульт и ХБП. Гипокалиемия сопровождается повышенной летальностью, особенно у пациентов с ССЗ.
У пациентов с гиперкалиемией, получающих заместительную почечную терапию (диализ), отмечается более высокая смертность от ССЗ. Незначительные снижения уровня [К+] в плазме наблюдаются у здоровых, подготовленных спортсменов и во время нормальной беременности.
У пациентов с ХБП и СД-1 отмечена тенденция к развитию гиперкалиемии на фоне диеты с высоким уровнем К+ или лечения ЛП, которые влияют на РААС. Голодание, заболевания ЖКТ, диуретики и другие ЛС могут вызывать гипокалиемию. Некоторые нарушения функции почек, такие как тубулоинтерстициальные заболевания и обструкция МВП, могут сопровождаться гиперкалиемией. Другие нарушения функции почек, например синдром Фанкони, приводят к гипокалиемии. Эндокринные заболевания, в том числе надпочечниковая недостаточность, вызывают гиперкалиемию. Гипокалиемия — распространенное явление у пациентов с надпочечниковыми альдостерон-секретирующими аденомами или опухолями с эктопической секрецией АКТГ.
в) Баланс калия. Большинство клеток экспрессируют натрий-калиевую аденозинтрифосфатазу (Na+/K+-АТФазу) на плазматических мембранах клеток. Таким образом они используют метаболическую энергию в форме АТФ для развития градиентов Na+ и К+. В результате клеточная концентрация К+ может превышать внеклеточную в 35 раз. Эти постоянные электрохимические градиенты обеспечивают нормальную функцию мышц и НС, а также трансцеллюлярный транспорт растворенных веществ в кишечнике и почечном эпителии. Поступление К+ в клетки уравновешивается вытеснением К+-каналами и транспортерами регулируемым и скоординированным образом.
Общее количество К+ в организме составляет 50 ммоль/кг. У человека массой тела 70 кг в запасе 3500 ммоль К+, в основном в скелетных мышцах. Для сравнения: вся внеклеточная жидкость, которая составляет 20% МТ, или 14 л у человека массой тела 70 кг, содержит всего 50-60 ммоль К+. Потребление калия с пищей может быть таким же высоким, как и количество общего внеклеточного калия. Потребление 50-100 ммоль могло бы вызвать быстрое повышение концентрации внеклеточного калия после еды, если бы не способность калия распределяться в течение нескольких минут из внеклеточного пространства во внутриклеточное.
Внутриклеточное пространство, учитывая его большой объем и содержание калия, может вместить или буферизовать дополнительную нагрузку калием без значительных изменений концентрации в плазме или клетках. Уравнивание потребления калия с пищей с помощью почечного выведения из организма происходит в течение нескольких часов.
Несоответствие между общими запасами организма и плазменной концентрацией [К+] из-за сдвигов между внутриклеточными и внеклеточными компартментами — причина того, что общий уровень калия в организме плохо отражает концентрация калия в плазме. Избыток калия в тканях может возникать несмотря на истощение К+ плазмы, а дефицит — несмотря на избыток К+.
г) Важность калия. Калий необходим для ряда важных функций организма, включая энзиматические реакции, регулирующие синтез белка и гликогена, рост и деление клеток. Способность клеток поглощать или вытеснять калий способствует регуляции объема клеток в течение периодов осмотического стресса. Из-за относительных величин клеточных и внеклеточных концентраций происходят большие изменения концентрации внеклеточного калия. Это оказывает наибольшее влияние на электрические свойства клеточных мембран.
В возбудимых клетках, таких как кардиомиоциты и скелетные мышцы, взаимосвязь внутриклеточной и внеклеточной концентрации калия вносит вклад в мембранный потенциал покоя. Гипокалиемия гиперполяризует эти клетки и снижает проводимость калия в некоторых калиевых каналах, которым требуется реполяризация.
Повышенная проводимость калия при гиперкалиемии противодействует нормальной медленной деполяризации ткани проводящей системы сердца. Медленная деполяризация обычно сопровождается уменьшением проводимости калия. Некоторые деполяризующие миорелаксанты, такие как сукцинилхолин, могут усиливать эффекты гиперкалиемии.
Калий важен для поддержания осмолярности жидкости в организме, как и натрий. Потери калия при применении тиазидных диуретиков заменяются натрием во внутриклеточном пространстве. Это способствует развитию индуцированной диуретиками гипонатриемии. Изоосмотические потери солей калия и натрия при водянистой диарее могут привести к изотоническому истощению внеклеточного объема. Если калия хлорид добавляют к изотоническому солевому раствору, полученный гипертонический раствор заставляет калий проникать в клетки с выходом натрия. Это способствует развитию гипернатриемии.
Калий — важный локальный медиатор сосудистого тонуса в мышечных ложах. Во время ФН локальная концентрация калия в интерстициальной жидкости может увеличиваться в несколько раз. Это вызывает местное расширение сосудов, чтобы обеспечить большее кровоснабжение тренирующейся мышцы. Побочный эффект — деполяризация сарколеммы, которая вызывает мышечную усталость. Малое количество калия попадает в общую внеклеточную жидкость, поэтому при ФН не возникает тяжелой гиперкалиемии. У подготовленного спортсмена наблюдается адаптивное увеличение активности Na+/K+-АТФазы. Это позволяет обеспечить эффективное повторное поглощение калия мышечными клетками.
Опытные марафонцы знают, что их диета должна обеспечивать адекватные запасы калия, необходимые для мышечной выносливости. Перенапряжение в состоянии истощения калия может привести к рабдомиолизу.
Экскреция калия подчиняется циркадному ритму. Этот ритм включает механизм прямой связи, который коррелирует с самым высоким уровнем экскреции калия с мочой, чтобы совпасть с ожидаемым потреблением калия с пищей. Эта связь включает чувствительность к калию в ЖКТ, а также висцеральную или печеночную циркуляцию. У ЗЛ экскреция калия максимальна в дневное время и может увеличиваться в несколько раз без изменения уровня калия в крови. Прямая связь между повышением экскреции калия и натрия лежит в основе связи диет с высоким содержанием калия с более низким АД.
Повышенное содержание калия в рационе может восстановить ночное снижение АД, потенциально снижая сердечно-сосудистые риски у пациентов с ГБ. Распределение калия между внеклеточным и внутриклеточным пространствами также демонстрирует циркадные изменения. Эти изменения могут вносить вклад в суточные колебания сердечных аритмий и внезапной смерти у пациентов из групп риска.
д) Обмен калия в почках. В почках выведение калия начинается с фильтрации. Поскольку внеклеточная концентрация калия составляет ~4 ммоль/л, а концентрация натрия — 140 ммоль/л, фильтруется гораздо меньше калия, чем натрия. Почечные проксимальные канальцы реабсорбируют калий черезклеточным транспортом, в ходе реабсорбции натрия и воды. В восходящем толстом конце петли Генле калий реабсорбируется апикальным Na+-K+2-Cl--котранспортером (NKCC2), подобно кальцию и магнию, путем черезклеточной реабсорбции катиона. Последний механизм — следствие положительного электрического просвета, создаваемого рециркуляцией калия из клетки в просвет через каналы транспорта калия наружного медуллярного слоя (ROMK).
Калий, который реабсорбируется в толстой части восходящего колена петли Генле, снова попадает в канальцевую жидкость с помощью секреции в тонкую часть нисходящего колена в процессе рециркуляции калия в мозговом веществе. Высокие интерстициальные концентрации калия могут способствовать его выведению из собирательной трубочки мозгового слоя из-за ограничения обратного тока калия. Люминальный аммоний (NH4+) может заменять калий в NKCC2 толстой части петли Генле. Возникающее в результате увеличение концентрации NH4+ в медуллярной интерстициальной жидкости усиливает выведение кислоты из собирательной трубочки мозгового слоя.
При гиперкалиемических состояниях в моче появляется меньше NH4+, поскольку высокая концентрация калия в просвете конкурирует с NH4+ за реабсорбцию в толстой части восходящего колена. Метаболический ацидоз может развиваться при гиперкалиемических состояниях. Снижение повышенного уровня калия в плазме помогает скомпенсировать ацидоз.
При гипокалиемии, вызванной внутриклеточным ацидозом клеток проксимальных канальцев или другими механизмами, увеличивается количество ферментов глутаминазы и вырабатывается больше аммиака. Это приводит к увеличению концентрации аммиака в интерстициальной жидкости и к усиленному выведению кислоты. Синтез аммония при гипокалиемии можно рассматривать как адаптацию, позволяющую калию реабсорбироваться, поскольку NH4+ сопровождает анионы, экскретируемые с мочой. Увеличение выработки аммиака может негативно влиять на организм. Аммиак способствует развитию хронического тубулоинтерстициального нефрита, обусловленного хронической гипокалиемией.
Когда канальцевая жидкость достигает дистального канальца и собирательной трубочки, реабсорбируется >90% калия. При дефиците калия увеличение активности водородно-калиевой АТФазы апикальной мембраны (Н+/К+-АТФазы) вставочной клетки собирательной трубочки позволяет почти полностью удалить калий из мочи. Но реабсорбция калия редко бывает такой же полной, как реабсорбция натрия. Концентрация калия в моче <5-10 ммоль/л — редкое явление. Когда в рационе много калия, за реабсорбцией 90% отфильтрованного калия проксимальным и дистальным отделами нефрона следует чистая секреция калия.
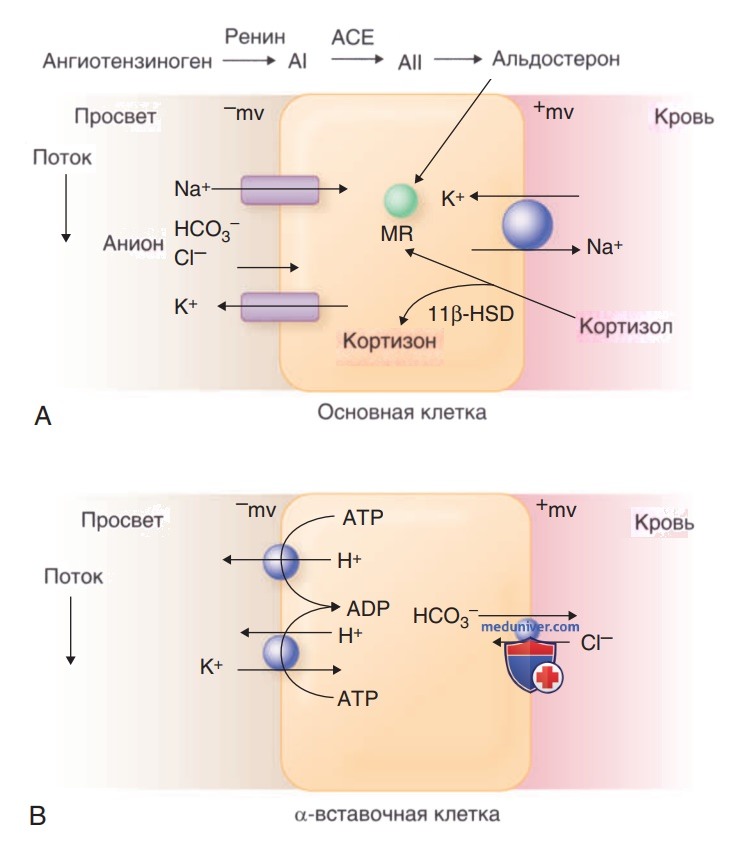
Секреция калия в кортикальной собирательной трубочке (Е-рис. ниже), которая может варьироваться в зависимости от потребностей на 400%, контролируется тремя основными механизмами. К ним относятся: 1) развитие трансэпителиальной разности потенциалов с отрицательным потенциалом, обращенным в сторону просвета, которая обеспечивает движущую силу для секреции калия в просвет, 2) регулируемые апикальные мембранные секреторные калиевые каналы и 3) зависимость от потока жидкости в канальцах. Уровень калия в моче наиболее точно отражает уровень калия, секретируемого дистальным отделом нефрона.
Два типа клеток в кортикальном собирательном канальце. А — основные клетки опосредуют реабсорбцию натрия (Na+), активируемую базолатеральным насосом Na+/K+. Вход из просвета канальца осуществляется через эпителиальный Na+-канал, который делает люминальную мембрану отрицательно заряженной (mv). Этот трансэпителиальный потенциал стимулирует секрецию калия (К+) через калиевые каналы во внешнем мозговом слое почек. Реабсорбируемые анионы, такие как хлорид (СГ), уменьшают отрицательный заряд люминальной мембраны и уменьшают секрецию К+. Бикарбонат (НСО3-) увеличивает секрецию К+. Высокая скорость потока увеличивает чистую секрецию К+ за счет активации maxi-K или big-K-каналов и предотвращения развития высоких концентраций К+ в просвете канальца. Продемонстрированы эффекты ренин-ангиотензин-альдостероновой системы: повышенная активация минералокортикоидных рецепторов (МР) увеличивает активность эпителиального Na+-канала, Na+/K+-помп и К+-каналов, увеличивая реабсорбцию Na+ и секрецию К+. Кортизол также увеличивает активность МР, но он инактивируется ферментом 11β-гидроксистероид-дегидрогеназой (11β-ГСД). AI — ангиотензин I; АII — ангиотензин II; mv — милливольт. B — вставочные клетки, богатые карбоангидразой, которые секретируют кислоту и реабсорбируют НСО3-. Н’-АТФаза секретирует Н+ способом, которому способствует отрицательно заряженный просвет канальца в сочетании с эффектом, обусловленным альдостероном. K+/H+-АТФаза — электронейтральный насос. Обменник K+/H+, реабсорбирующий К+, важен в состояниях истощения К+, когда содержание K+ в моче снижено. Вставочные клетки также содержат апикальные big-K-каналы, что указывает на их роль в секреции К+
е) Парадокс альдостерона. Традиционный взгляд на регуляцию секреции и экскреции калия сосредоточен на центральной роли альдостерона. Альдостерон — стероидный гормон, синтезируемый и секретируемый клубочковой зоной коры надпочечников. Почечные эффекты альдостерона демонстрируют перекрест функций сохранения натрия и удаления калия. Альдостерон стимулируется ангиотензином II при гиперренинемических состояниях и не зависит от пищевой нагрузки калием. Парадокс альдостерона — процесс предотвращения нежелательных потерь калия, когда для поддержания внеклеточного объема требуется задержка натрия (с помощью стимула ангиотензина II).
Нежелательное удержание натрия предотвращается, когда нагрузка калием обеспечивает стимул для секреции альдостерона. Обратная отрицательная связь, объединяющая альдостерон с сывороточным калием, считается фундаментальной для регуляции калия. Гиперальдостеронизм приводит к потере калия, а гипокалиемия снижает выработку альдостерона. Гиперкалиемия стимулирует высвобождение альдостерона, облегчая секрецию калия с мочой.
ж) Механизм реабсорбции натрия и электрохимические силы. Основное место секреции калия находится в чувствительном к альдостерону дистальном отделе нефрона. Этот отдел состоит из дистального извитого канальца, основных клеток соединительного канальца и кортикального сегмента собирательной трубочки. Альдостерон регулирует реабсорбцию натрия апикальным эпителиальным натриевым каналом (ENaC). Реабсорбция натрия зависит от низких внутриклеточных концентраций натрия — результата работы энергозатратной Na+/K+-АТФазы на базолатеральной мембране. Повышенные уровни внутриклеточного Na+ и внеклеточного К+ стимулируют Na+/K+-АТФазу.
Повышенное проникновение Na+ посредством апикального транспорта увеличивает активность Na+/K+-АТФазы, доставляя больше калия в клетки для трансэпителиальной секреции.
Для улучшения секреции калия натрий должен доставляться в больших количествах (в зависимости от скорости потока и концентрации натрия в канальцевой жидкости), чтобы вызвать реабсорбцию натрия через апикальный ENaC в клетках кортикальной собирательной трубочки. Если доставка натрия не ограничена, реабсорбция катиона натрия создает отрицательную трансэпителиальную разность потенциалов в просвете канальца. Альдостерон влияет на эту разность потенциалов несколькими способами. Функции внутриклеточного минералокортикоидного рецептора повышают активность и плотность ENaC и базолатеральных ферментов Na+/K+-АТФазы. Кортизол, который присутствует в более высоких концентрациях, чем альдостерон, имеет равное сродство к рецептору альдостерона и может приводить к увеличению активности ENaC.
Но фермент 11β-гидроксистероид-дегидрогеназа 2-го типа, содержащийся в основных клетках, превращает кортизол в неактивный кортизон.
з) Роль секреторных каналов калия и скорость потока в канальцах. Секреция калия требует адекватной работы нескольких типов секреторных калиевых каналов на люминальных мембранах клеток дистального отдела нефрона. В апикальных мембранах клеток собирательных трубочек присутствуют два основных калиевых канала. ROMK расположены на апикальной мембране основной клетки в соединительном канальце и кортикальном собирательном канале, чувствительны к альдостерону.
Они увеличивают активность за счет пищевой нагрузки калия и поддерживают постоянную секрецию К+ в обычных условиях. ROMK подвергаются новому синтезу и усиленному круговороту к апикальной мембране под контролем альдостерона. Основная клетка также опосредует вазопрессин-зависимую реабсорбцию воды. Факторы, регулирующие каналы ROMK, включают АДГ и внутриклеточный pH. Повышение активности канала ROMK в ответ на АДГ в сочетании с эффектом АДГ для увеличения активности ENaC и осмотического потока жидкости позволяет достичь максимально возможной концентрации калия в моче при низком потоке канальцевой жидкости, который сопровождает подавление образования мочи.
Когда уровень АДГ снижен, концентрация калия в просвете ниже, что способствует градиенту секреции калия. Но низкие уровни АДГ также подавляют активность ROMK. Закисление клеток подавляет секрецию калия посредством воздействия на ROMK, обеспечивая почечный механизм снижения электрогенной секреции калия, когда секреция протонов необходима во время метаболического и респираторного ацидоза. При алкалозе активность ROMK увеличивается, что способствует увеличению секреции калия, но результатом может быть значительная потеря калия.
Дополнительные калиевые каналы, известные как maxi-K- или big-K-каналы, выделяют в основных и вставочных клетках кортикального сегмента собирательной трубочки. Так, вставочная клетка играет роль в секреции калия. Big-K-каналы строго регулируются скоростью потока канальцевой жидкости. Механизм, с помощью которого скорость потока влияет на секреторный канал калия, заключается в деформации первичной реснички основной клетки. Деформация ведет к вторичному увеличению клеточного кальция, что оказывает прямые и косвенные эффекты на усиление секреции калия big-K-каналами.
и) Механизмы экскреции и нормальная функция. Чувствительный к тиазидам котранспорт NaCl не зависит от альдостерона в начальных отделах дистальных извитых канальцев, но ингибируется чувствительными областями в клетках. Это вызвано потреблением калия, механизмами желудочно-кишечной прямой связи и часовыми генами, определяющими циркадный ритм экскреции калия. Снижение реабсорбции натрия в начальных отделах дистального извитого канальца увеличивает доставку натрия и воды в нижележащий альдостерон-чувствительный дистальный нефрон. В ответ на повышенное выделение альдостерона, стимулируемое калием в плазме, увеличивается активность ENaC. Это приводит к большей секреции калия. Сеть протеинкиназ, включая киназы «без лизина» или WNK, играет центральную роль в регулируемой функции Na-котранспортера начальных отделов дистальных извитых канальцев и ENaC.
В ситуации активной реабсорбции натрия, включая гиповолемические состояния, гепаторенальный синдром и тяжелую СН, доставка натрия из более проксимальных участков может стать лимитирующим этапом секреции калия. При гиповолемии реабсорбция натрия в проксимальном канальце, в дистальных извитых канальцах и соединительном канальце увеличивается за счет ангиотензина II. Малое количество натрия доставляется к основным клеткам кортикальной собирательной трубочки. Из-за снижения доставки натрия потери калия уменьшаются, а индуцированное ангиотензином II переключение с участием киназы «без лизина» снижает активность ROMK. Хотя альдостерон по-прежнему активирует ENaC основных клеток, снижение доставки натрия и снижение секреции калия (в пользу реабсорбции хлорида) позволят увеличить реабсорбцию NaCl, ограничивая потерю калия.
Доставка натрия может быть увеличена за счет снижения уровня ангиотензина II при увеличении внеклеточного объема. Низкие уровни альдостерона ограничивают потери калия.
Когда альдостерон присутствует, а ангиотензин II отсутствует (как при нагрузке калием), не происходит более ранней стимуляции реабсорбции натрия. Поэтому доставка натрия к альдостерон-чувствительным дистальным сегментам нефрона, содержащим ROMK, котранспортер NaCl и ENaC, увеличивается. В отсутствие ангиотензина II сеть протеинкиназ «без лизина» способствует увеличению активности ROMK, а альдостерон увеличивает активность ENaC. Результат способствует секреции калия, но общая реабсорбция натрия не увеличивается: повышенная доставка NaCl из проксимальных участков компенсирует увеличение реабсорбции натрия через ENaC.
к) Внутренний баланс калия и связанные с ним нарушения. Калий сначала попадает во внеклеточную жидкость из ЖКТ. Поэтому важно, чтобы процесс клеточной буферизации был эффективным (табл. 1). Увеличение постпрандиального уровня калия в крови сводится к минимуму до момента, когда он будет выведен из организма. Основной фактор в этой регуляции после приема пищи — обратная связь с участием инсулина и калия. Повышение уровня калия в сыворотке стимулирует высвобождение инсулина из β-клеток панкреатических островков.
Инсулин увеличивает поглощение калия клетками, в первую очередь мышцами, независимо от его влияния на поглощение глюкозы. В острой ситуации захват калия — результат повышенной активности Na+/K+-АТФазы. А при хронической перегрузке наблюдается повышенное содержание этого транспортера на плазматических мембранах клеток.
Другой важный механизм регулирования распределения калия между внеклеточным и клеточным пространством включает симпатоадреналовую систему. β-Адренергическая активация, особенно через β2-рецептор, увеличивает поглощение калия мышечными и жировыми клетками. Как и в случае с инсулином, усвоение калия — следствие повышенной активности Na+/K+-АТФазы, связанной с повышенным уровнем внутриклеточного циклического АМФ. Адренергический эффект важен для регулирования концентрации калия в сыворотке крови во время упражнений и не зависит от дополнительного эффекта, который катехоламины могут оказывать на глюкозу в крови с ожидаемым увеличением инсулина. У подготовленного спортсмена хроническое повышение экспрессии Na+/K+-АТФазы на клеточных мембранах может вызывать временное снижение концентрации калия в сыворотке после нагрузки.
По тому же механизму тяжелый стресс может способствовать гипокалиемии за счет прямых β2-адренергических эффектов и действия инсулина, вторичного по отношению к повышению уровня глюкозы в крови.
Фенилэфрин, агонист α-адренорецепторов, увеличивает содержание калия в сыворотке крови. Эпинефрин (Адреналин) также оказывает α-адренергические эффекты. Это приводит к временному увеличению высвобождения калия из печени перед более длительным периодом снижения уровня калия в сыворотке, опосредованным стимуляцией β2-рецепторов.
Метаболический ацидоз повышает уровень калия больше, чем респираторный ацидоз. Метаболический алкалоз и респираторный алкалоз снижают уровень калия. Ацидоз с анионной разницей не повышает уровень калия из-за движения органического аниона (например, лактата) из клеток во внеклеточное пространство с сопутствующим протоном. Прием хлоридных солей сильнее влияет на уровень калия, поскольку концентрация хлоридов увеличивается во внеклеточном пространстве. При гиперхлоремическом ацидозе хлорид попадает в клетки через хлорид-бикарбонатный обменник и возвращается обратно во внеклеточное пространство при совместном переносе с калием. Прием чрезмерного количества хлоридных солей аргинина и лизина приводит к гиперкалиемическому ацидозу. ε-Аминокапроновая кислота также приводит к развитию гиперкалиемии. Она обменивается на клеточный калий, как и другие катионные аминокислоты.
Одно измерение pH крови может отражать смешанные нарушения КЩС. Также могут сосуществовать многие процессы, влияющие на конечную концентрацию калия. Метаболический ацидоз может быть вызван потерей калия, достаточной для развития гипокалиемии и обусловленной диареей или чрезмерным мочеиспусканием. Метаболический ацидоз при диабете также может быть вызван дефицитом инсулина и почечной дисфункцией и провоцировать развитие гиперкалиемии, несмотря на осмотические потери калия с мочой и общее уменьшение калия в организме.
Другие гормональные влияния на метаболизм калия включают действие гормонов ЩЖ и гормона роста. У пациентов с изменениями уровней этих гормонов обычно не наблюдается значительных колебаний уровня калия в крови. У некоторых пациентов с гипертиреозом может встречаться умеренная гипокалиемия, связанная с повышенной симпатической активностью. Состояния, ассоциированные с ростом, сопровождаются большей потребностью в калии. Так, при нормальной беременности концентрация калия в крови матери может падать по мере роста развивающегося плода.
Гипомагниемия часто сопровождает гипокалиемию. Магний и калий содержатся преимущественно в клетках, но Na+/K+-АТФазе для функционирования требуется магний. При дефиците магния калий больше распределяется во внеклеточной жидкости, маскируя выраженность дефицита калия. Дефицит магния приводит к увеличению активности секреторных каналов калия в почках, поэтому дефицит калия трудно скомпенсировать без восполнения уровня магния.
л) Внешний баланс калия и связанные с ним нарушения. ЖКТ обеспечивает до 10-20% общей экскреции калия, но экскреция в толстой кишке увеличивается при почечной дисфункции за счет индуцированного калием увеличения эпителиальной активности Na+/K+-АТФазы и альдостерона. При почечной недостаточности нормальные механизмы распределения калия приобретают повышенное значение.
Состояния, вызывающие наибольшую потерю калия в ЖКТ, включают толстокишечную секреторную диарею в результате инфекции или злоупотребления слабительными ЛП. Заболевания тонкой кишки, которые могут привести к выделению большого количества жидкого стула с низкой концентрацией калия, создают благоприятные градиенты для выраженной секреции калия толстой кишкой. Синдром водянистой диареи и гипокалиемии развивается при наличии нейроэндокринных опухолей. Они секретируют вазоактивный интестинальный пептид. Ректосигмоидная секреция калия может привести к особенно высоким потерям калия, и дефицит калия наблюдается у пациентов с уретеросигмоидостомией. Калий может быть утрачен при множестве других процессов, включая чрезмерное потоотделение или гиперсаливацию.
Калий также теряется при рвоте или диарее. При желудочном алкалозе происходит потеря калия с мочой. При патологии почечных канальцев потери калия с мочой могут превышать потребление. Это происходит, если с мочой выделяются чрезмерные количества осмотических или анионных молекул, или у пациентов, принимающих диуретики.
Гиперкалиемия не может быть вызвана чрезмерным потреблением калия, если у пациента нет почечной дисфункции. Но у пациентов с быстрым гемолизом, внутренним кровотечением или рабдомиолизом, особенно если развивается гемоглобинурия или миоглобинурия, приводящие к острому повреждению почек, может быстро развиться опасная для жизни гиперкалиемия. Это результат быстрого высвобождения клеточных запасов калия.