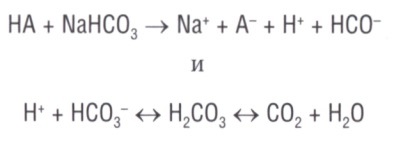а) Определение. Способность регулировать концентрацию ионов Н+/уровень pH (определяемый как отрицательный логарифм концентрации ионов водорода) имеет крайне важное значение для нормального функционирования организма. КЩС оценивается посредством измерения в артериальной/венозной крови. Если уровень pH артериальной крови <7,35, считается, что имеет место ацидемия. Если уровень pH >7,45, имеет место алкалемия. Однако несколько процессов могут одновременно повышать/понижать pH; эти процессы известны как ацидозы/алкалозы.
Поскольку возможно одновременное сосуществование алкалоза и ацидоза равной степени, отличный от нормы pH не всегда отмечается при кислотно-основных расстройствах. Кроме того, поскольку уровень pH пропорционален отношению концентрации бикарбоната в крови к рСО2, обнаружение нарушенного уровня бикарбоната само по себе не может определять наличие ацидемии/алкалемии.
б) Эпидемиология. Нарушение КЩС должно предупреждать врача о возможном наличии лежащего в его основе тяжелого состояния. Ацидозы с анионной разницей представляют собой серьезные метаболические нарушения — от сепсиса до уремии, ДКА и серьезных отравлений. Отдельные заболевания почек и диарея могут вызывать гиперхлоремический ацидоз (табл. 1). Метаболические алкалозы обычно вызваны диуретиками, нарушениями функции почечных канальцев и потерей кислоты из желудка вследствие рвоты/назогастральной эвакуации содержимого желудка (табл. 2).
Респираторный ацидоз и алкалоз обусловлены нарушением вентиляции, усиливающейся при таких состояниях, как сепсис и тревожное расстройство, и уменьшающейся при многих заболеваниях легких и угнетении ЦНС.
в) Патофизиология. Рост, деление клеток, оплодотворение, метаболизм белков и глюкозы являются примерами рН-чувствительных внутриклеточных процессов. Кислоты вырабатываются внутри клеток во время метаболизма, и каждая клетка должна поддерживать уровень pH, соответствующий ее функции. Например, сократительная способность сердца снижается, когда внутренняя среда кардиомиоцитов слишком кислая. Кости и мышцы плохо развиваются и растут в кислой среде.
Внутриклеточный уровень pH может быть ниже, чем внеклеточный, так как клетки электроотрицательны по отношению к внеклеточной жидкости, но их внутриклеточная среда не такая кислая, как если бы Н+ достиг электрохимического равновесия с внеклеточной жидкостью, это означает, что все клетки используют энергию для активного выведения кислоты. Клетки способны буферизовать кислотную нагрузку, а внутриклеточные вакуоли могут использовать Н+-АТФазы для секвестрации избыточной кислоты перед выведением из клетки. Транспортные процессы, расположенные на клеточных мембранах, могут защитить клетки от кислотных/щелочных нагрузок.
Конкретные механизмы могут отличаться от одного типа клеток к другому, но они аналогичны тем, которые используются выделительными органами, в конечном итоге выводящими чистую кислоту, производимую организмом, во внешнюю среду.
В тяжелых патологических состояниях уровень pH в артериальной крови может упасть минимально до 6,8 и подняться до 7,7. Активные упражнения с метаболической продукцией лактата могут временно, но значительно снизить уровень pH даже у ЗЛ.
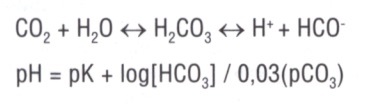
При нормальном уровне pH артериальной крови концентрация ионов водорода находится в диапазоне 40 нЭкв/л, это очень невысокое значение по сравнению с нормальной концентрацией натрия в плазме 140 мЭкв/л. Концентрация водородных ионов в жидкостях организма находится в равновесии с каждой из нескольких слабых кислот/буферов, таких как белки и фосфаты (изогидрический принцип), но КЩС в организме часто описывается и анализируется с использованием системы СО2/НСО3- и отношения концентрации протонов (следовательно, pH) к отношению НСО3- к СО2. Уравнение Гендерсона-Хассельбаха является логарифмическим выражением этой связи:
В этом уравнении рК — отрицательный логарифм константы диссоциации в реакции — равен 6,1; 0,03 (мМ/мм рт.ст.) — коэффициент растворимости СО2 в растворе. Продукт 0,03 х рСО2 представляет собой растворенный СО2; «общий СО2» в плазме — это сумма НСО3-, обычно 25 мМ, и 0,03 х рСО2, обычно 1,2 мМ. Важно подчеркнуть, что pH является функцией отношения НСО3- к рСО2. Концентрация НСО3- в числителе регулируется почками, а рСО2 — легкими.
1. Производство углекислоты и удаление углекислого газа легкими. Летучая кислота — это термин, используемый для обозначения ~20 000 ммоль/сут СО2, производимого при эквимолярном количестве воды в результате тканевого дыхания. Этот СО2 переносится из тканей в легкие, где удаляется альвеолярной вентиляцией. Устойчивый уровень артериального рСО2 обычно составляет 38-42 мм рт.ст.
Окисление углеводов, жиров и углеродного скелета аминокислот приводит к образованию воды и СО2. Чтобы поддерживать стабильное состояние, количество любой кислоты (или основания), производимой за день, должно быть эквивалентно тому, что удаляется. Если производство СО2 тканями превышает его удаление легкими, разовьется респираторный ацидоз, характеризующийся высоким рСО2. Если уровень удаляемого СО2 превышает производство, развивается респираторный алкалоз. Обратная зависимость между альвеолярной вентиляцией (клиренсом СО2) и рСО2 демонстрируется следующим образом:
Циркуляция играет ключевую роль в транспортировке тканевого СО2 в легкие. Процесс зависит не только от клеточного дыхания, но и от тканевого капиллярного потока, а также от диффузии СО2 в кровь и через мембраны эритроцитов, где он может реагировать с Hb и белками с образованием карбаминовых соединений или соединяться с водой для преобразования в Н+ и НСО3- в реакции, которая катализируется карбоангидразой. Внутриклеточный Н+ может соединяться с Hb (эффект Бора), а НСО3- обмениваться с Cl- плазмы через анионообменники эритроцитов.
Большая часть тканевого СО2 попадает в легкие в виде НСО3- в составе венозной плазмы. По сравнению с артериальной кровью венозная кровь имеет характеристики респираторного ацидоза. Уровень pH в венозной крови обычно на 0,05 единиц pH более кислый, чем pH в артериях, ее рСО2 на 5-6 мм рт.ст. выше, чем в артериальной крови, а концентрации ионов бикарбоната в ней обычно выше, чем в артериальной крови.
При патологии изменения рСО2 чаще всего вызваны изменениями альвеолярной вентиляции, а не производством СО2. Таким образом, респираторный ацидоз является следствием снижения вентиляции при заболеваниях легких, скелетных мышц и ЦНС. Однако если альвеолярная вентиляция нарушена, повышенная продукция СО2 усугубит задержку его выведения.
Точно так же респираторный алкалоз развивается из-за гипервентиляции, а не вследствие снижения выработки СО2. В любом случае, когда скорость элиминации СО2 (альвеолярная вентиляция х рСО2) вновь сравнивается со скоростью производства СО2, будет преобладать новый установившийся уровень рСО2 без явной задержки или потери угольной кислоты.
2. Производство кислот и их экскреция почками. Нелетучими/фиксированными кислотами называют некарбоновые кислоты, которые образуются в основном в результате метаболизма белков. Обычная скорость образования составляет 1-2 мгЭкв Н+/кг/сут. Большинство диет, богатых животными белками, обеспечивает избыточное количество нелетучих кислот, в первую очередь сульфатов из серосодержащих аминокислот цистеина и метионина. Другие кислоты производятся в форме фосфатов (из фосфопротеинов, фосфолипидов и фосфонуклеотидов) и неметаболизируемых органических кислот (например, мочевой кислоты) и хлоридов из солей лизина, аргинина и гистидина.
Из уравнения Гендерсона-Хассельбаха рассмотрим добавление метаболической кислоты НА (где анионом А- могут быть Cl-, лактат-, HSO4- и Н2РО4-) в кровь, содержащую Na+ и НСО3-.
СО2, образующийся в результате этого процесса, не будет повышать уровень рСО2 в крови, если нет нарушений в системе дыхания, так как вклад метаболической кислоты составляет небольшую часть ежедневного производства СО2. Следует обратить внимание, что добавление протонов к жидкостям организма этими кислотными конечными продуктами приводит к потреблению бикарбоната («потерянного бикарбоната»), который затем должен восполняться почками, поскольку они удаляют протон и А- из мочи.
Процесс выделения чистых Н+ и А- эквивалентен производству «нового» НСО3- для восстановления НСО3-, который теряется при добавлении НА, метаболической кислоты. Почки должны выводить любую нелетучую кислоту (или щелочь) для поддержания постоянной концентрации НСО3- в сыворотке крови в диапазоне 22-28 мЭкв/л.
Когда диета требует экскреции кислот, pH мочи падает до значения 5,0, и моча номинально становится свободной от бикарбоната. Для сравнения: при щелочной нагрузке почка будет выводить избыток отфильтрованного НСО3-, и уровень pH мочи может приближаться к максимальному значению 8,0-8,5. У большинства людей, особенно употребляющих животный белок или придерживающихся «ацидотической» диеты, преобладает потребность в чистой экскреции кислоты. Однако некоторые вегетарианцы могут придерживаться преимущественно «щелочной» диеты, для которой необходимо выводить чистую щелочь в соответствии с потреблением.
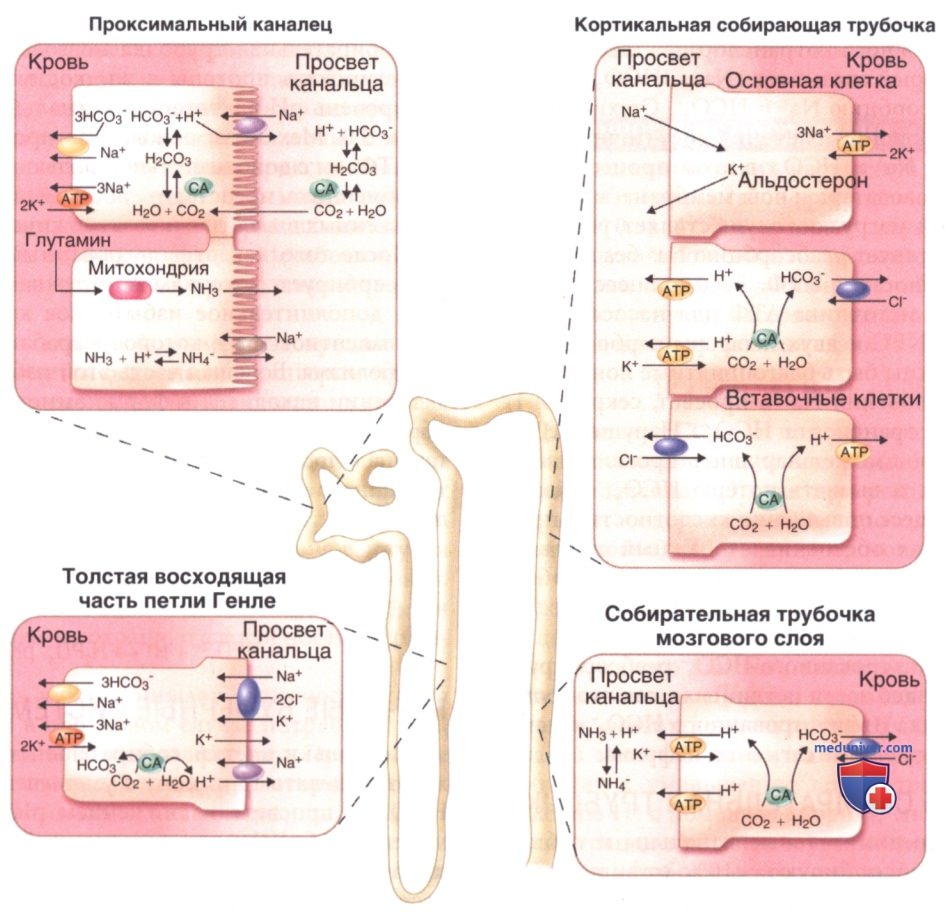
3. Бикарбонат и почки в кислотно-щелочном балансе. Первая роль почек в достижении экскреции кислоты — реабсорбция всего отфильтрованного НСО3- (рис. ниже). При нормальной СКФ (например, 180 л/сут у взрослых) и концентрации НСО3- в плазме 25 мЭкв/л 4500 мЭкв НСО3- фильтруется за 1 сут. Потеря даже небольшой части этого количества приведет к метаболическому ацидозу, если его не заменить потреблением оснований (НСО3-). Подобно тому, как реабсорбция всей отфильтрованной глюкозы не приводит к увеличению количества глюкозы в организме, реабсорбция всего отфильтрованного НСО3- будет поддерживать статус-кво, но не будет удовлетворять потребность в генерации нового НСО3-.
Механизмы закисления мочи в почках. АТР — аденозинтрифосфат, СА — карбоангидраза
Следовательно, почки должны выполнять две функции: реабсорбировать весь отфильтрованный НСО3- и устранять в достаточном количестве избыточный Н+ (производя НСО3- в процессе), чтобы восполнить потери НСО3- из кислоты, которая генерируется клеточным метаболизмом. Буферные системы для мочи необходимы, так как уровень pH мочи не может быть снижен настолько, чтобы вывести необходимое для этой цели количество кислоты.
4. Проксимальный каналец. Приблизительно 80-90% реабсорбции НСО3- осуществляется в проксимальных канальцах за счет процесса секреции протонов, который делает жидкость просвета канальца более кислой (pH ~6,5). Мембраны щеточной каймы клеток проксимальных канальцев, обращенные к просвету канальцев, содержат переносчики, известные как Na/H-обменники (NHE3), которые осуществляют наибольшую долю подкисления, и вакуолярные Н+-АТФазы, которые вносят меньший вклад. Благодаря нормальной функции Na+/К+-АТФазы базолатеральной мембраны Na+ в клетке поддерживается в низкой концентрации, так что отфильтрованный Na+ в просвете может проникать в клетку в обмен на Н+, секретируемый в просвет.
Этот Н+ быстро соединяется с отфильтрованным НСО3- с образованием Н2СО3, которая затем быстро дегидратируется в просвете с образованием СО2 и Н2О. Этому процессу в значительной степени способствуют большая площадь поверхности мембран микроворсинок и люминальная карбоангидраза (CAIV). СО2 проникает в проксимальную клетку путем диффузии через апикальные водные каналы (аквапорин 1). СО2 внутри клетки повторно образует НСО3-, это реакция, катализируемая внутриклеточной карбоангидразой (САП). Клетка, более щелочная из-за апикальной секреции Н+, способствует реакции ОН + СО2 с образованием НСО3-, катализируемой карбоангидразой.
Затем НСО3- транспортируется обратно в кровь с помощью электрогенного котранспортера бикарбоната натрия (NBCel), который связывает 1Na и 3НСО3-, тем самым завершая реабсорбцию Na+ и НСО3-. Стехиометрия NBC 1:3 необходима для обеспечения достаточной энергии для соединения Na+ и НСО3- в этом процессе реабсорбции. NBC на базолатеральной мембране защищает клетку от щелочной нагрузки, осуществляет реабсорбцию НСО, и стимулирует реабсорбцию Na+ без дальнейшей прямой потребности в АТФ. Весь процесс требует митохондриального источника АТФ для насоса Na+/K+, интактных NHE3 и NBC и двух изоформ карбоангидразы.
Кроме того, должны быть благоприятные ионные градиенты для проникновения Na+ в просвет, секреции Н+ и базолатерального транспорта НСО3-. Нарушение любого из этих факторов может нарушить проксимальную реабсорбцию НСО3- и вызвать потерю НСО3- с мочой. Также ясно, что процесс повышения кислотности в проксимальных канальцах обеспечивает важный механизм реабсорбции Na+, соответствуя тому, что реабсорбция НСО3- увеличивается ангиотензином II и СНС для поддержания внеклеточного объема.
Еще 10-15% отфильтрованного НСО3- реабсорбируется в толстой восходящей части петли Генле, так что только небольшие количества отфильтрованного НСО3- обычно попадают в более дистальные сегменты нефрона.
5. Кортикальная собирательная трубочка. Кортикальные соединительные канальцы и собирающие трубочки реабсорбируют <10% отфильтрованного НСО3-. В основных клетках Na+ реабсорбируется из просвета в клетку эпителиальным натриевым каналом (ENaC), управляемым направленным внутрь градиентом Na+ и благоприятным электрическим потенциалом. При реабсорбции Na+ просвет становится электроотрицательным, что способствует секреции как К+ через калиевые каналы, так и Н+ через вакуолярные Н+-АТФазы на просветной поверхности соседних α-вставочных клеток, которые секретируют кислоту.
Секретируемый Н+ будет объединяться с оставшимся в просвете НСО3- с образованием СО2 с последующей реабсорбцией СО2, повторным образованием клеточного НСО3- с помощью клеточной карбоангидразы (САII), а затем обменом НСО3- из клетки в кровь для поступления внеклеточного Cl- через обменники Cl-/НСО3-, аналогичные эритроцитарным анионообменникам (AEl), которые участвуют в транспорте СО2 в крови. Дистальный нефрон, которому требуется меньшая потребность в реабсорбции бикарбоната, чем проксимальному канальцу, лишен щеточной каймы и просветной карбоангидразы. Именно в этом дистальном участке pH канальцевой жидкости начинает падать до уровней <6,0.
β-Вставочные клетки включают популяцию клеток собирательной трубочки, которые имеют обратную полярность и секретируют НСО3- в просвет в обмен на проникновение Cl- в клетку. В них Н+-АТФаза обращена к кровяной стороне клетки. Повышенная внеклеточная концентрация НСО3-, наблюдаемая при щелочной диете/метаболическом алкалозе, увеличивает секрецию НСО3- этими клетками через пендрин, который является апикальным анионообменником Cl-/НСО3-.
6. Собирательная трубочка мозгового слоя. Собирательная трубочка мозгового слоя продолжает секретировать протоны в жидкость просвета канальца, где уровень pH достигает минимальных значений, близких к 5,0. Механизм основан на продолжении функции Н+-АТФазы с дополнительной ролью АТФ-зависимого К+/Н+-обменника, представителя семейства К+-Н+-АТФаз, обнаруженных в желудке и толстой кишке.
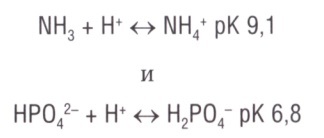
После того как отфильтрованный НСО3- полностью реабсорбируется, почкам по-прежнему требуется устранять дополнительное избыточное количество кислоты, эквивалентное тому, которое вырабатывается в процессе метаболизма. Большая часть этой избыточной кислотной экскреции находится в форме аммония (NH4+), который образуется в результате синтеза аммиака почками из глутамина в проксимальных канальцах и титрования отфильтрованного фосфата до кислого фосфата (титруемая кислотность).
7. Мочевые буферные системы. Поскольку клетки собирательных трубочек продолжают выделять Н+ в мочу с уменьшением концентрации НСО3- в просвете и снижением pH, Н+ захватывается мочевыми буферными системами. Результирующее подщелачивание клеток после секреции Н+ приводит к образованию клеточного НСО3-, готового для транспортировки в кровь. В результате этого процесса образуется «новый» НСО3-, не являющийся результатом реабсорбции отфильтрованного НСО3-.
Количество нового НСО3- соответствует количеству чистой удаленной кислоты, а также равно каждому из следующих параметров: количеству произведенной кислоты; количеству буферной системы организма, потребляемой этой кислотой; количеству фиксированных кислотных анионов, таких как сульфат, фосфат и Cl-, которые сопровождают Н+. Результат — поддержание нормального КЩС.
Способность почек снижать уровень pH мочи позволяет буферным системам захватывать протон. Чистое выведение кислоты с мочой осуществляется не просто за счет снижения pH мочи, а в основном за счет титрования этих буферных систем мочи. Например, типичный суточный объем мочи 1 л при уровне pH 5,0 содержит только 10 5 молярных ионов водорода/0,01 ммоль, незначительное количество по сравнению с количеством производимой кислоты (~1 ммоль/кг/сут). При ХБП неспособность производить необходимое количество аммония для выделения достаточного количества чистой кислоты приводит к метаболическому дисбалансу и выведению плохо забуференной, хотя и кислой, мочи.
8. Регуляция секреции кислот с мочой. Почечные механизмы закисления мочи способны к адаптации. Транспортные процессы, такие как Н+-АТФазы, обмен Na+/H+ и обмен Cl-/НСО3-, могут увели-чивать/уменьшать их способность обрабатывать кислотно-основные эквиваленты в зависимости от поставленной задачи. Почечные аммониогенные механизмы также жестко регулируются, чтобы удовлетворить кислотно-основные потребности человека. Метаболический ацидоз и респираторный ацидоз увеличивают способность реабсорбировать НСО3-, включая повышенную экспрессию транспортеров, участвующих в окислении мочи.
В то же время стимулируется захват глутамина проксимальными клетками, повышенное производство аммиака способствует экскреции кислоты, а также образованию новых НСО3- в дистальных отделах нефрона. Метаболический и респираторный алкалозы имеют противоположные эффекты.
Аммониогенез — ключевой элемент экскреции кислоты с мочой, является основным акцептором протонов. Аммиак вырабатывается преимущественно в клетках проксимальных канальцев митохондриальным ферментом глутаминазой. Производство увеличивается за счет увеличения метаболической кислотной нагрузки в организме, респираторного ацидоза и гипокалиемии. NH4+ может сохранять калий в гипокалиемическом состоянии, выступая в качестве катиона, необходимого для выделения анионов. В ответ на метаболический ацидоз почки в идеале выделяют хлорид с аммонием и сохраняют способность удерживать Na+ и К+.
В печени ацидоз также снижает активность цикла мочевины, который в противном случае потребляет NH3 и НСО3- с образованием карбамоилфосфата. При ацидозе NH3 продуцирует печеночный глутамин, который доставляется в клетку проксимальных канальцев, где митохондриальные ферменты продуцируют 2NH3, способствующий выведению чистой кислоты с мочой; связанное с этим повышение уровня α-кетоглутарата обеспечивает субстрат для глюконеогенеза в проксимальных канальцах почек.
Аммиак может секретироваться путем неионной диффузии в проксимальную канальцевую жидкость, где он улавливает протон и образует аммоний (NH4+) или может образовывать аммоний в клетке проксимальных канальцев и секретироваться посредством обмена Na+/NH4+, режима работы Na+/Н+-обменника. Аммоний может реабсорбироваться толстым восходящим канальцем Генле на транспортере Na-K-2C1, где может заменять К+.
За счет противоточного умножения NH3/NH4+ концентрируется в медуллярной интерстициальной жидкости, а не остается в жидкости восходящего канальца, достигая почечной коры с высокой перфузией, где в противном случае рассеивался бы в венозной крови. Противоточный механизм также позволяет аммиаку диффундировать в просвет собирающего протока мозгового слоя, где он будет улавливаться в виде аммония в кислой канальцевой жидкости.
Клетки собирающих протоков также секретируют NH3 посредством гликопротеинов, принадлежащих к семейству Rh-фактора, переносчиков аммиака в эритроцитах.
Регуляция осуществляется на нескольких уровнях. Гормоны, такие как ангиотензин II и катехоламины, стимулируют реабсорбцию Na+ в проксимальных канальцах за счет увеличения натрий-водородного обмена и котранспорта NaHCO3. Альдостерон увеличивает Н+-АТФазы в клетке собирающего протока и стимулирует реабсорбцию Na+, тем самым увеличивая секрецию протонов. Низкий объем внеклеточной жидкости увеличивает проксимальную реабсорбцию НСО3-, так же как и гипокалиемия и высокий рСО2.
Гиперкалиемия может ограничивать закисление мочи за счет уменьшения NH3, поступающего в противоточный умножитель в петле Генле, и уменьшения секреции Н+-АТФазы в собирающем протоке, поскольку потребность в секреции К+ преобладает.
Видео урок по анализу КЩС в норме и его расшифровка