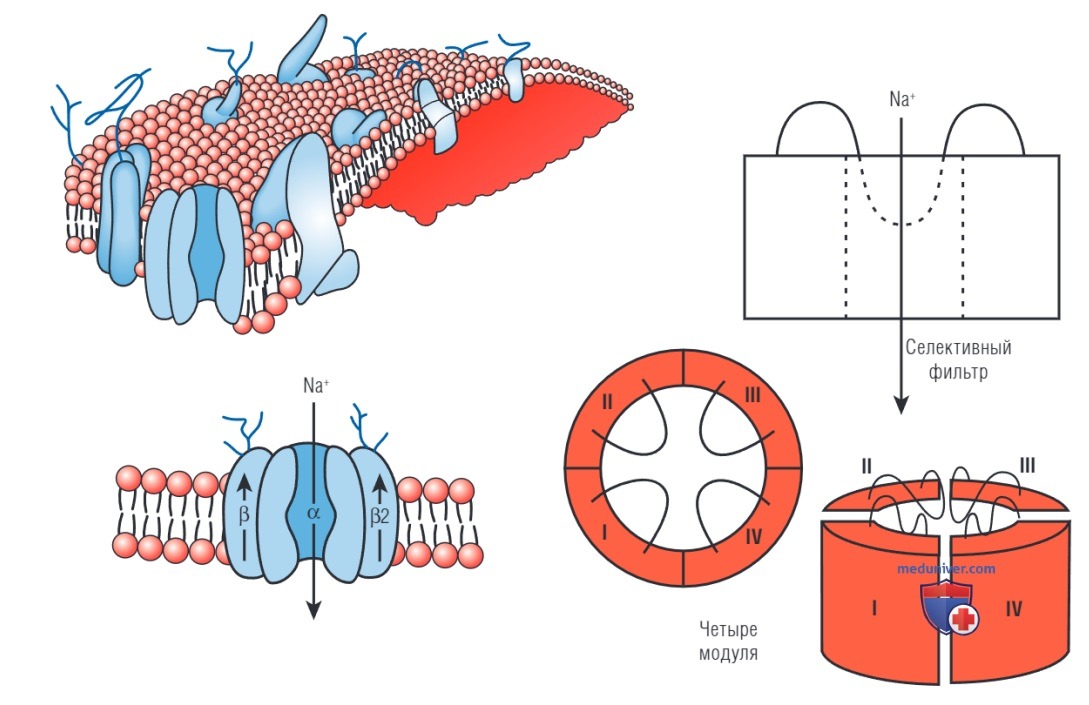
Na+-каналы сердца представляют собой комплекс, состоящий из первичной α-субъединицы и множественных вспомогательных β-субъединиц. α-Субъединица состоит из порядка 2000 аминокислот и содержит ионопроводящую пору, которая обеспечивает возможность контролировать селективность для Na+ и процесс потенциал-зависимого стробирования.
Эта субъединица содержит все выявленные на сегодняшний день области взаимодействия с лекарственными и токсичными веществами.
Всего девять генов кодируют α-субъединицу Na+-каналов в организме человека (с Nav1.1 по Nav1.9). Nav1.5 — основная сердечная изоформа. Nav1.8 и Nav1.9 в основном экспрессируются в периферических чувствительных нейронах, Nav1.4 в скелетных мышцах и Nav1.6 в центральной нервной системе.
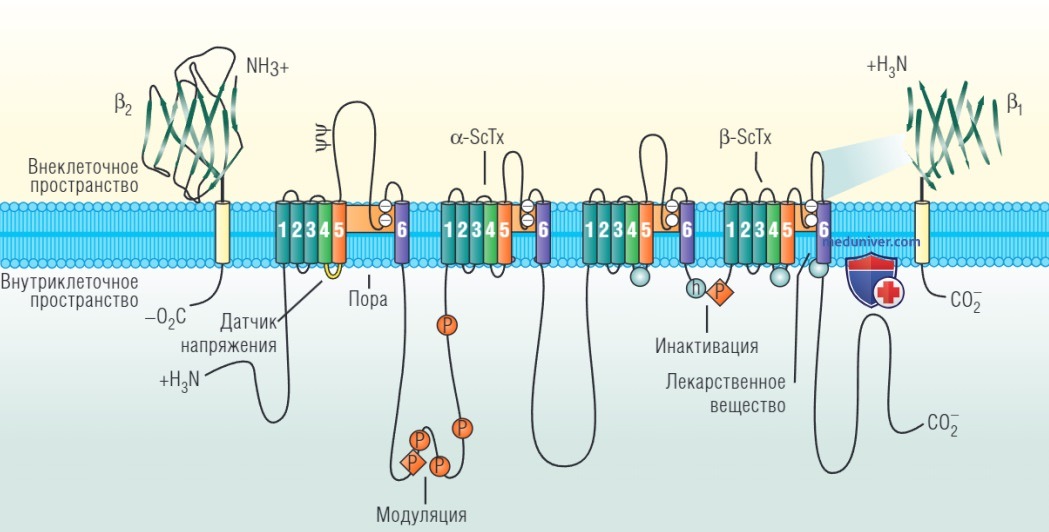
Nav1.5, кодируемый геном SCN5A, состоит из гомологичных доменов (с I по IV), которые соединены друг с другом цитоплазматическими линкерами (рис. 1). Каждый домен состоит из шести трансмембранных сегментов (S1-S6), соединенных между собой чередующимися внутриклеточными и внеклеточными пептидными петлями. Четыре домена расположены с учетом круговой четырехкратной симметрии, формируя канал.
Рисунок 1. Макромолекулярный комплекс Na+-канала
Внеклеточные петли между S5 и S6 в каждом домене (называемые сегментами Р) обладают уникальной первичной структурой белка (рис. 2). Сегменты Р изгибаются внутрь, в сторону мембраны, образуя ионопроводящую центральную пору, структурные составляющие которой определяют селективность и проводимость Na+-канала.
Рисунок 2. Трансмембранная организация субъединиц Na+-канала. Первичные структуры субъединиц потенциал-зависимых ионных каналов показаны в виде схем трансмембранного свертывания. Цилиндры представляют собой α-спиральные сегменты: от S1 до S3 (синий цвет); S4 (зеленый цвет); S5 (оранжевый цвет); S6 (фиолетовый цвет); внешняя петля поры — затемненная оранжевая область. Жирными линиями показаны полипептидные цепи каждой субъединицы, длина которых примерно пропорциональна количеству аминокислотных остатков в подтипах Na+-каналов головного мозга. Внеклеточные домены β1- и β2-субъединиц показаны в виде иммуноглобулиноподобных складок. ψ — участки вероятного N-связанного гликозилирования. Р — сайты фосфорилирования белка протеинкиназой А (оранжевые круги) и протеинкиназой С (оранжевые ромбы); h в синем круге обозначает частицу инактивации в петле ворот инактивации; пустые синие круги представляют сайты, участвующие в формировании рецептора ворот инактивации. Структура внеклеточного домена β-субъединиц показана в виде иммуноглобулиноподобной складки, основанной на гомологии аминокислотных последовательностей с белком миелина РО. Также показаны сайты связывания α- и β-токсинов скорпиона (α-ScTx, β-ScTx) и сайты взаимодействия между α- и β1-субъединицами. H3N, NH3 — аммиак
Были идентифицированы 4 вспомогательные β-субъединицы (Navβ1-Navβ4, кодируемые генами SCN1B-SCN4B соответственно); каждая из них представляет собой гликопротеин с одним трансмембранным сегментом. β-субъединицы регулируют плотность, кинетику, потенциал-зависи-мую активацию и инактивацию, а также экспрессию Na+-канала на поверхности мембраны.
Na+-каналы являются типичным примером потенциал-зависимых ионных каналов. Они переключаются между тремя функциональными состояниями: дезактивированным (закрытым), активированным (открытым) и инактивированным (закрытым), в зависимости от значения потенциала действия (ПД) мембраны. Эти состояния каналов регулируют проницаемость для Na+ в кардиомиоцитах.
Активация Na+-канала обеспечивает приток Na+ в клетку, а инактивация блокирует проникновение ионов.
При возбуждении кардиомиоцита электрическими импульсами от соседних клеток его мамбранный потенциал в покое (примерно -85 мВ) деполяризуется. Положительно заряженный сегмент S4 каждого домена α-субъединицы функционирует как датчик трансмембранного напряжения. Считается, что эти сегменты претерпевают быстрые конформационные изменения в ответ на деполяризацию мембраны.
Это приводит к открытию (активации) канала, что и обеспечивает большой и быстрый приток Na+ (входящий ток Na+, INa) во время быстрой деполяризации (фаза 0) кардиомиоцитов предсердий, желудочков и клеток волокон Пуркинье.
Обычно активация Na+-каналов носит временный характер; быстрая инактивация (закрытие поры) начинается одновременно с активацией (открытие поры). Поскольку инактивация происходит немного медленнее, чем активация, каналы остаются временно открытыми для проведения INa во время фазы 0.
Каждый Na+-канал открывается очень быстро (менее 1 мсек) во время фазы 0; в совокупности активация каналов длится несколько миллисекунд и сопровождается быстрой инактивацией.
Инактивация Na+-каналов включает некоторые конформационные состояния: быстрая, промежуточная и медленная инактивация. Быстрая инактивация частично опосредована быстрой окклюзией внутреннего устья поры цитоплазматическим линкером, располагающимся между доменами III и IV α-субъединицы.
Этот линкер имеет триплет с гидрофобными остатками, который в свою очередь, вероятно, функционирует как «шарнирная защелка», ограничивающая прохождение Na+ через поры. Карбоксильный конец (С-конец) также играет важную роль в контроле инактивации Na+-каналов и стабилизации каналов в инактивированном состоянии за счет взаимодействия с петлевыми связывающими доменами III и IV.
Следует отметить, что хотя большинство Na+-каналов открываются до инактивации, некоторые инактивируются фактически, даже не открываясь (процесс, известный как инактивация в закрытом состоянии).
После инактивации Na+-каналы больше не проводят ток и не могут быть повторно активированы (вновь открыться) до тех пор, пока не восстановятся. Восстановление Na+-канала зависит от напряжения. Инактивация канала завершается с окончанием фазы 4 потенциала действия — реполяризации.
Восстановление каналов после инактивации также зависит от времени; Na+-каналы обычно активируются в течение 0,2-0,3 мсек и полностью инактивируются в течение 2-5 мсек.
После восстановления Na+-каналы переходят в закрытое состояние, представляющее собой непроводящую белковую конформацию, которая позволяет каналам снова активироваться во время следующего потенциала действия. Доля каналов, доступных открытию, колеблется от почти 100% при мембранном потенциале -90 мВ и 50% при -75 мВ до почти 0% при +40 мВ.
Следовательно, сильно поляризованные (от -80 до -90 мВ) клеточные мембраны могут быть быстро деполяризованы, потому что больше Na+-каналов снова открывается, тогда как частично деполяризованные клетки с потенциалами, близкими к пороговым -70 МВ, генерируют гораздо более медленный восходящий импульс из-за инактивации части Na+-каналов.
Учитывая, что Na+-каналы являются основными детерминантами скорости проведения, эта скорость обычно замедляется при меньшем значении мембранного потенциала.
Активация, инактивация и восстановление Na+-каналов происходит в течение нескольких миллисекунд. В конце фазы 1 потенциала действия более 99% Na+-каналов переходят из открытого (активированного) состояния в закрытое. Однако небольшое количество Na’-каналов не инактивировано и может повторно активироваться (открыться) во время фазы 3 потенциала действия.
Небольшой ток, генерируемый этими каналами (менее 1% от пика INa), называется «оконным током». Он возникает, когда сарколемма достигает потенциала действия, достаточно деполяризованного для реактивации некоторых каналов, но недостаточного для полной инактивации. Диапазон напряжения для оконного тока в здоровом сердце очень ограничен и узок, что определяет его небольшую роль в регуляции потенциала действия сердца.
В дополнение к этим быстрым стробирующим переходам Na+-каналы также подвержены более медленной инактивации, в случае если мембрана остается деполяризованной в течение более длительного времени. Эти более медленные события могут способствовать доступности активных каналов в различных физиологических условиях.
В то время как быстро инактивированные Na+-каналы восстанавливаются (10 мсек) в течение гиперполяризованного интервала между стимулами, медленная инактивация требует гораздо большего времени для восстановления (от сотен миллисекунд до многих секунд). Движения молекул, приводящие к медленной инактивации, малоизучены. Сегменты Р, по-видимому, играют ключевую роль в медленной инактивации.
Некоторые Na+-каналы иногда демонстрируют альтернативные режимы стробирования, представляющие собой появление изолированных коротких отверстий, возникающих после переменных, длительных задержек и всплесков притока ионов, во время которых канал открывается повторно в течение сотен миллисекунд. Изолированные, короткие отверстия являются результатом неудачной инактивации.
Длительное открытие или повторное открытие некоторых Na+-каналов во время фаз 2 и 3 может привести к появлению небольшого позднего тока Na+ (INaL). Несмотря на свой незначительный вклад в регуляцию работы здорового сердца, INaL потенциально может играть важную роль при патологиях сердца.