К+-каналы сердца — это мембранные белки, которые обеспечивают пассивное движение К+ через клеточную мембрану по электрохимическому градиенту. Ионопроводящую или порообразующую субъединицу обычно называют α-субъединицей.
Кислород карбонильной группы основной цепи, вносимый трипептидной последовательностью глицин-тирозин-глицин плюс боковые атомы кислорода треонина в последовательности TXGYG (где X представляет собой переменный остаток), является общим для пор всех К+-каналов и значимым для определения селективности К+.
Стробирующий механизм управляет переключением между открытым проводящим и закрытым непроводящим состояниями каналов.
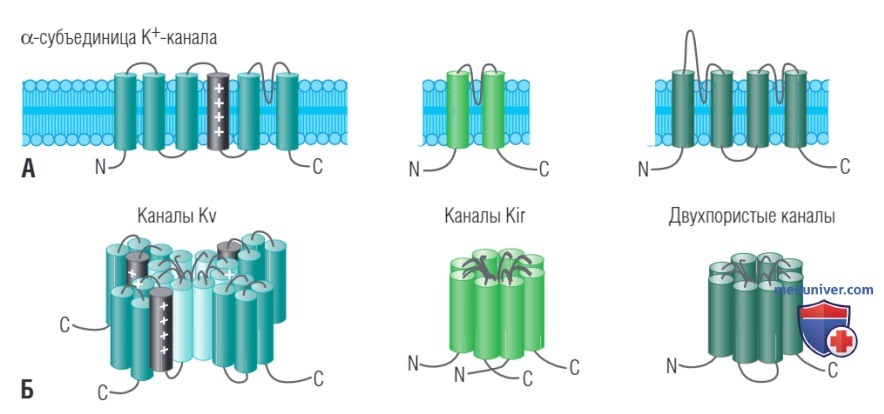
К+-каналы представляют собой самый разнообразный класс ионных каналов сердца (рис. ниже). Разнообразие токов К+ в тканях превышает количество идентифицированных генов, кодирующих К+-каналы. Существование такого разнообразия обусловливают: альтернативный сплайсинг продуктов генов, посттрансляционная модификация и гетерологичная сборка β-субъединиц в пределах одного семейства, а также сборка с дополнительными β-субъединицами, которые модулируют свойства каналов.
Молекулярное строение сердечных K+-каналов. Указаны аминоконцы (N) и карбоксильные концы (С). (А) Управляемые напряжением (Кv), внутренний выпрямитель (Kir) и двухпористые α-субъединицы представляют собой интегральные мембранные белки с шестью, двумя и четырьмя межмембранными доменами. (Б) Эти α-субъединицы собираются в виде тетрамеров или димеров с образованием К+-селективных пор
Даже небольшие различия в структуре каналов приводят к значительному разнообразию в их функционировании.
К+-каналы сердца можно разделить на каналы, управляемые напряжением (Kv), и каналы, управляемые белками-лигандами. В каналах Kv открытие пор связано с перемещением датчика напряжения в электрическом поле мембраны. Они включают быстро активирующий и инактивирующий переходный внешний ток (Ito); ультрабыстрый (IKur), быстрые (IKr) и медленные (IKs) компоненты запаздывающего выпрямительного; внутренний выпрямительный ток (IK1).
Напротив, открытие пор в лиганд-стробированных каналах обусловлено связыванием с органической молекулой, включая каналы, активируемые снижением внутриклеточной концентрации аденозинтрифосфата (КATP) или ацетилхолина (KACh). Другие классы К+-каналов реагируют на различные стимулы, включая изменения внутриклеточной концентрации Са2+ и G-белков.
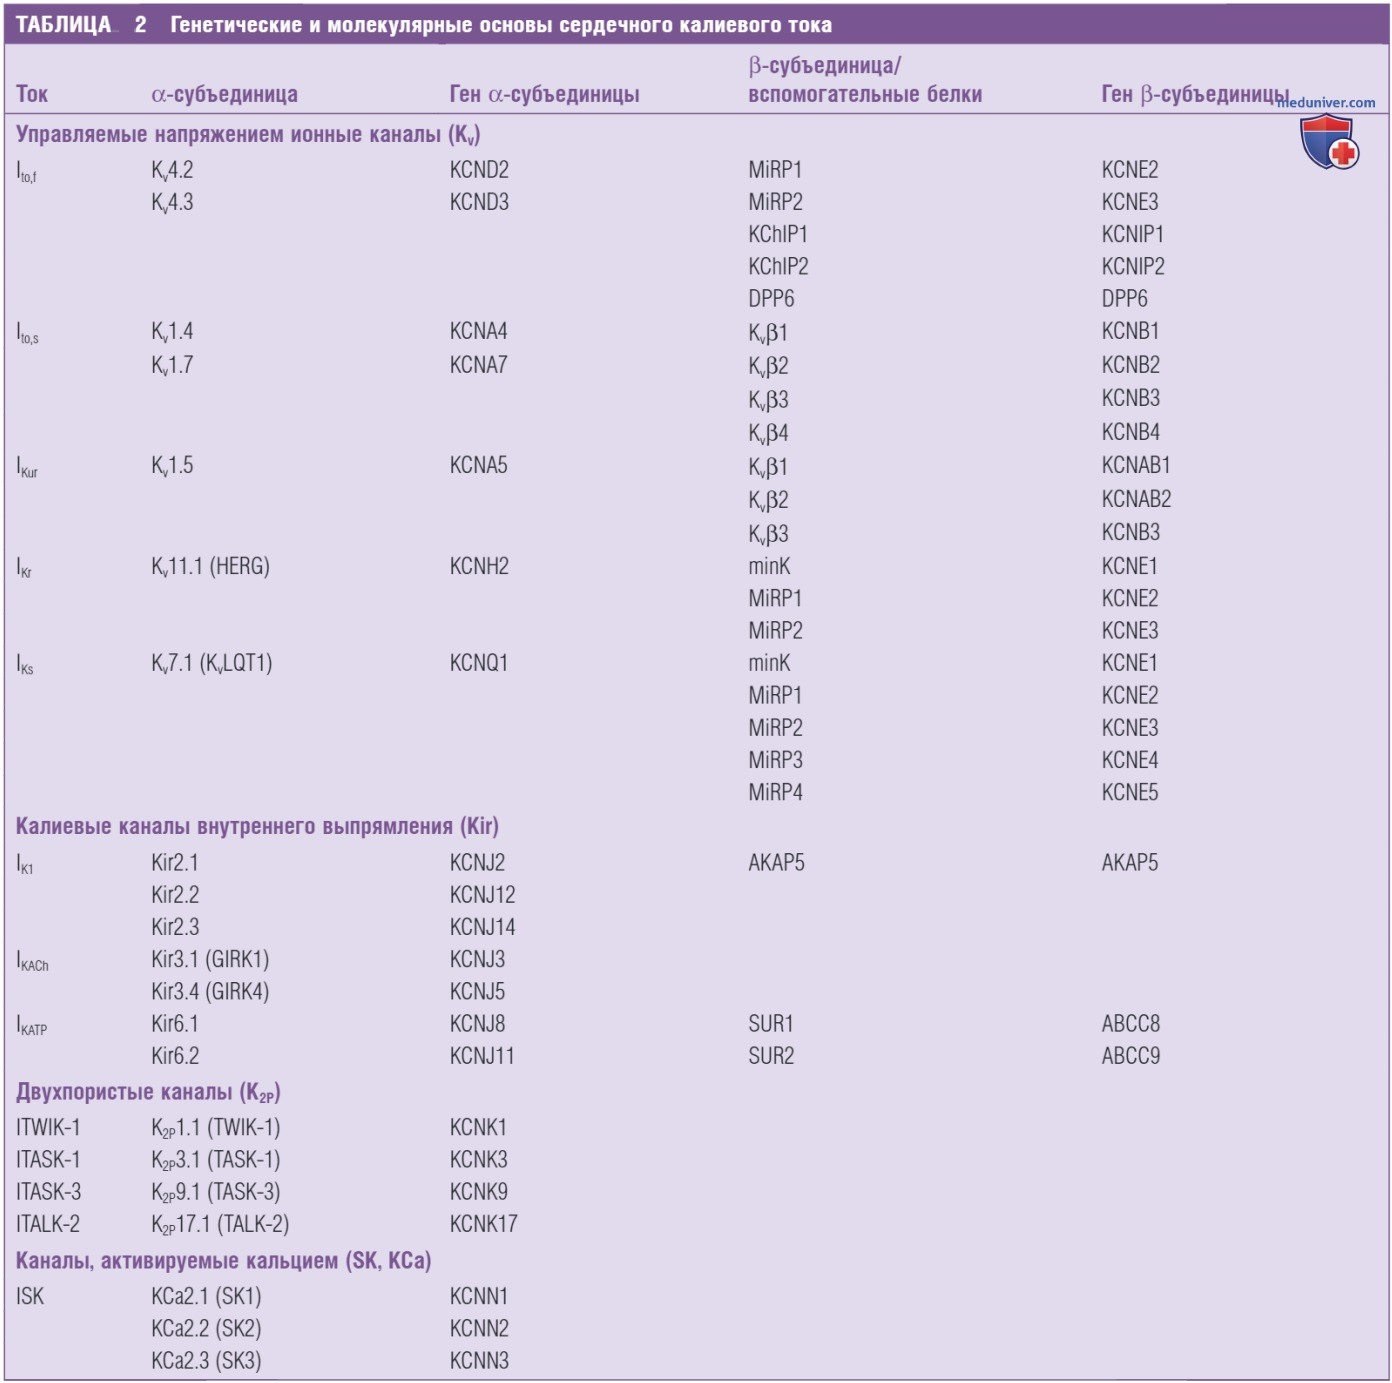
На основе первичной аминокислотной последовательности α-субъединицы К+-каналы были классифицированы на три основных семейства (табл. 2):
1. Каналы, содержащие шесть трансмембранных сегментов и одну пору. Такое строение типично для каналов Кv.
2. Каналы, содержащие два трансмембранных сегмента (Ml и М2) и одну пору. Такое строение характерно для каналов внутреннего выпрямителя К+ (Kir), а также для каналов К1, KATP и KACh.
Эти каналы проводят токи К+ преимущественно вовнутрь клетки, нежели наружу, и играют важную роль в формировании потенциала покоя, близкого к равновесному потенциалу для К+, а также важны для периода реполяризации. Каналы Kir образуют либо гомотетрамеры, либо гетеротетрамеры.
3. Каналы, содержащие четыре трансмембранных сегмента и две поры (К2P). Эти каналы существуют как гомодимеры или как гетеродимеры. Токи К2P проявляют небольшую зависимость от времени или от напряжения. Каждый К+-канал (семейство Kv) образован совокупностью четырех идентичных (гомотетрамеров) или комбинацией четырех различных (из одного подсемейства гетеротетрамеров) α-субъединиц (Кvα).
В общей сложности было выделено 38 генов, которые отнесли к 12 подсемействам Кvα (от Kv1 до Kv12) на основе сходства аминокислотных последовательностей. Большинство подсемейств Кv содержат множество отдельных частей канала (например, Kv1 имеет восемь частей, обозначаемых Kv1.1-Kv1.8, с обозначениями генов соответственно KCNA1-KCNA8).
Каждый Кvα содержит один домен, состоящий из шести мембранных сегментов (S1-S6), соединенных друг с другом чередующимися внутриклеточными и внеклеточными пептидными петлями (аналогично одному из четырех доменов потенциал-зависимых Na+- и Са2+-каналов), причем N-конец и С-конец расположены на внутренней стороне мембраны.
Центральная ионопроводящая область пор образована сегментами S5 и S6 и линкером S5-S6 (сегмент Р); линкер S5-S6 отвечает за селективность К+. Сегмент S4 служит датчиком напряжения.
Kvα может генерировать зависимый от напряжения ток К+. Однако сборка функционального тетрамера может происходить только при наличии нескольких вспомогательных субъединиц (см. табл. 2). Во многих случаях вспомогательные субъединицы ассоциируются с Кvα и, вероятно, модулируют экспрессию на поверхности клетки, кинетику стробирования и лекарственную чувствительность комплекса α-субъединиц.
Большинство β-субъединиц К+-канала собираются с α-субъединицами и дают начало новому комплексу α4β4. β-субъединицы К+-канала представляют собой разнообразные молекулярные группы, включающие (1) цитоплазматические белки (от Кvβ1 до Kvβ4, KChIP и KChAP), взаимодействующие с внутриклеточными доменами Kvα; (2) одиночные трансмембранные белки (например, minK и minK-связывающий белок [MiRPs]), кодируемые геном семейства KCNE; (3) АТФ-связывающий кассетный транспортер (АВС) (например, рецепторы сульфонилмочевины [SURs]).
Подобно потенциал-зависимым Na+-каналам (Nav) и Са2+-каналам (Cav), каналы Kv обычно изменчивы, колеблются между различными конформационными состояниями из-за молекулярных движений в ответ на изменение напряжения клеточной мембраны (потенциал-зависимое стробирование).
Канал Kv активируется (открывается) при деполяризации мембраны, что опосредует быстрое прохождение К+ через сарколемму. После открытия канал претерпевает конформационный переход в стабильное непроводящее (инактивированное) состояние. Инактивированные каналы не способны к повторному открытию, даже если трансмембранное напряжение благоприятно, если только они не «восстанавливаются» после инактивации (т.е. не переходят в закрытое состояние) при реполяризации мембран.
Закрытые (предварительно открытые) каналы не проводят ионы, но могут быть активированы деполяризацией мембраны.
На основе механизма инактивации было идентифицировано четыре типа каналов Kv, которые связаны с различными молекулярными доменами: N-тип, С/Р-тип, AG-тип и U-тип. Инактивация N-типа («шар и цепь») включает физическую окклюзию внутриклеточного устья поры канала путем связывания небольшой группы аминокислот («инактивирующий шар, соединенный с цепью») на N-конце.
Инактивация С/Р-типа включает конформационные изменения во внешнем устье поры. Инактивация С/Р-типа существует почти во всех К+-каналах и может отражать процесс медленного сужения поры. Считается, что этот процесс инактивации не зависит от напряжения, а связан с открытием канала.
Обычно он протекает медленнее, чем инактивация N-типа. Восстановление после инактивации С/Р-типа происходит относительно медленно и слабо зависит от напряжения. Важно отметить, что скорость инактивации и восстановления С/Р-типа может сильно зависеть от других факторов.
Инактивация С/Р-типа сильно ускоряется инактивацией N-типа и стимулируется внеклеточными Н+. В отличие от инактивации N-типа, инактивацию С/Р-типа предотвращают внеклеточные К+, связывающиеся с поверхностью поры. Эти взаимодействия делают инактивацию С/Р-типа важным биофизическим процессом, регулирующим повторную электрическую активность, определяющим такие физиологические свойства, как рефрактерность, чувствительность к внеклеточным ионам и соединение молекул лекарственных средств с их сайтами связывания в клетках.
Инактивация AG-типа ведет к конформационным изменениям в S4, инактивирующим каналы Кv, которые претерпевают переход из закрытого (приоткрытого) состояния. Кроме того, некоторые каналы Кv также демонстрируют другой тип инактивации (U-тип), который проявляет U-образную зависимость от напряжения при длительной стимуляции.
Эти каналы, по-видимому, преимущественно проявляют инактивацию при промежуточных значениях деполяризующего напряжения (соответствующих предварительно активированному закрытому состоянию), чем при более положительных значениях напряжения (соответствующих открытому состоянию). Какие именно конформационные изменения лежат в основе инактивации U-типа, остается неясным. Важно отметить, что существует множество кинетических и молекулярных механизмов инактивации каналов Кv, особенно инактивации С/Р-типа.