Возбуждение миокарда представляет собой генерацию потенциала действия отдельными кардиомиоцитами с последующим быстрым распространением электрического импульса по кардиомиоцитам и от клетки к клетке по миокарду. Скорость проведения соотносится со скоростью распространения потенциала действия по миокарду. Скорость проведения возбуждения в сердце варьирует в тканях: от 0,05 м/сек в АВ-узле до 0,5 м/сек в сократительном миокарде предсердий и желудочков, 2 м/сек в ветвях пучка Гиса и до 4 м/сек в волокнах Пуркинье. Проводимость не является непрерывным процессом в большинстве участков сердца.
Распространяющиеся электрические волновые фронты взаимодействуют со структурными границами на клеточном уровне (клеточные мембраны, межклеточные щелевые контакты, трехмерное [3-D] расположение кардиомиоцитов), а также на более макроскопическом уровне (микрососудистая сеть, соединительнотканные барьеры, трабекуляция).
а) Внутриклеточное проведение. После возникновения потенциал действия распространяется вдоль клеточной мембраны до тех пор, пока вся мембрана кардиомиоцита не станет деполяризованной. Скорость распространения возбуждения повышается с увеличением диаметра клетки, амплитуды потенциала действия и начальной скорости подъема потенциала действия.
Потенциал действия распространяется по волокну сердечной мышцы за счет локальных токов, так же, как это происходит в нервной ткани и скелетных мышцах. Скорость проведения по сердечному волокну напрямую зависит от амплитуды потенциала действия (т.е. разности напряжений между полностью деполяризованным и полностью поляризованным участками) и скорости изменения потенциала (т.е. скорости нарастания фазы 0 потенциала действия [dV/dt]). Эти факторы зависят от амплитуды INa, что напрямую связано с Em в момент стимуляции, готовности Na+-каналов к активации и величины градиента трансмембранного электрохимического градиента Na+.
Обычно поток зарядов через деполяризующие ионные каналы (INa) значительно больше, чем это необходимо для возбуждения той же клетки, и обеспечивает достаточный дополнительный стимулирующий ток для ускорения распространения. Это свойство (называемое «резерв проведения» или «безопасность проведения») помогает поддерживать распространение потенциала действия при различных физиологических и патофизиологических условиях. В сократительных кардиомиоцитах предсердий, желудочков, а также волокон Пуркинье отмечается высокая концентрация Na+-каналов (волокна Пуркинье содержат до 1 млн Na+-каналов в клетке), которые помогают генерировать большой деполяризующий ток (INa) во время потенциала действия. Значительный INa быстро распространяется внутри и между клетками, поддерживая быстрое распространение возбуждения.
Снижение возбудимости мембраны приводит к снижению скорости или амплитуды деполяризации (INa) во время фазы 0 потенциала действия. Скорость проведения постепенно снижается наряду с прогрессирующим снижением возбудимости мембраны. Когда фактор надежности для проводимости становится <1 (т.е. ионный ток в источнике становится меньше, чем ток, необходимый для возбуждения ткани далее по ходу распространения возбуждения), проведение электрического импульса поддерживаться не может, и блокируется.
В кардиомиоцитах с медленным ответом (в СА-узлах и АВ-узлах) подъем потенциала действия обеспечивается ICaL, а не INa. Поскольку ICaL имеет более низкую амплитуду и более медленную кинетику активации, чем INa, потенциалы действия кардиомиоцитов с медленным ответом демонстрируют сниженную амплитуду и скорость подъема потенциала действия. Следовательно, низкая проводимость (приблизительно от 0,1 до 0,2 м/сек) и длительный период рефрактерности являются характерными признаками кардиомиоцитов в СA-узлах и АВ-узлах.
Эти клетки также имеют низкий фактор надежности для проведения электрического импульса, что означает, что стимулирующая эффективность распространяющегося импульса мала, и легко возникает блокада проведения.
б) Межклеточное проведение. Распространение потенциалов действия от одного кардиомиоцита к соседним достигается за счет прямого распространения ионного тока (без участия электрохимических синапсов) через специализированные межклеточные соединения с низким сопротивлением (каналы щелевых контактов), расположенные, как правило, внутри вставочных дисков. Щелевые контакты обеспечивают распространение электрического импульса по миокарду, который при этом ведет себя как функциональный синцитий. При этом реализуется скоординированная механическая функция.
Каналы щелевых контактов обеспечивают связь между соседними кардиомиоцитами и биохимическое сопряжение с низким электрическим сопротивлением. Сопротивление мембраны щелевого контакта для прохождения ионов и небольших молекул, а также для распространения электрического импульса на несколько порядков ниже по сравнению с несопряженными клеточными мембранами. Тем не менее сопряжение, формируемое щелевыми контактами, обеспечивает путь сопротивления, которое на несколько порядков выше, чем внутриклеточное цитоплазматическое сопротивление (задержка проведения составляет приблизительно от 0,21 до 0,27 мсек в щелевых контактах и от 0,05 до 0,1 мсек в клеточной мембране). Как следствие, распространение импульсов по одиночным клеточным цепочкам кардиомиоцитов носит скачкообразный характер.
При этом распространение импульса через межклеточные контакты с высоким сопротивлением чередуется с распространением возбуждения через цитоплазму с низким сопротивлением. Однако эта особенность нивелируется в нормальной многоклеточной ткани из-за сопряжения, обеспечиваемого латеральными щелевыми контактами, которое служит для усреднения небольших локальных различий во времени активации отдельных кардиомиоцитов на фронте волны возбуждения.
Количество, размер и молекулярный состав каналов щелевых контактов определяют специфические свойства распространения возбуждения в ткани. Тканеспецифическая экспрессия коннексина и пространственное распределение щелевых контактов, а также особенности структуры каналов щелевых контактов обеспечивают большую универсальность физиологических характеристик щелевых контактов и обеспечивают именно такое распространение возбуждения в миокарде.
В миокарде предсердий и желудочков экспрессируются три различных коннексина: коннексин 40 (Сх40), коннексин 43 (Сх43) и коннексин 45 (Сх45), названные в соответствии с их молекулярными массами. В АВ-узле был обнаружен четвертый коннексин (Сх31.9). Сх40 каналов щелевого контакта обладает наибольшей проводимостью, а Сх45 — наименьшей. Кардиомиоциты СА-узлов и АВ-узлов имеют небольшие, редкие и рассредоточенные щелевые контакты, содержащие Сх45, который формирует каналы с низкой проводимостью. Это лежит в основе относительно слабого межклеточного сопряжения кардиомиоцитов СА-узлов и АВ-узлов (свойства, которое связано с замедлением проведения возбуждения).
Щелевые контакты в миокарде предсердий состоят в основном из Сх43 и Сх40, в миокарде желудочков — из Сх43, в волокнах Пуркинье — из Сх40.
Важно отметить, что экспрессия коннексина является избыточной по отношению к проведению электрического импульса в сердце. Поэтому, чтобы вызвать значительное замедление скорости проведения, требуется значительное уменьшение межклеточного сопряжения. Было показано, что снижение Сх43 на 50% не влияет на проведение импульса в миокарде желудочков. Чтобы повлиять на проводимость, экспрессия Сх43 должна уменьшиться на 90%, но даже тогда скорость проведения снижается только на 20%.
Подобно этому, при пониженной возбудимости мембраны скорость проведения возбуждения постепенно снижается в соответствии с уменьшением межклеточного сопряжения. Было показано, что частичное разобщение щелевых контактов приводит к снижению скорости проводимости более чем на порядок, по сравнению со скоростью во время максимального снижения возбудимости, не вызывающего нарушения проводимости.
Альтернативой общепринятому пониманию межклеточного проведения импульсов, опосредованного щелевыми контактами, является механизм электрического поля (также называемый «эфаптической передачей»). Сопряжение, в основе которого лежит электрическое поле (эфаптическая связь), представляет собой инициирование потенциала действия в следующей неактивированной клетке электрическим полем, вызванным предыдущей активированной клеткой.
Эта модель предполагает, что активация распространяется по соединенным кардиомиоцитам скачкообразно и этот процесс управляется отрицательным потенциалом, который развивается в ограниченном щелевом пространстве между клетками, когда потенциал действия развивается в предконтактной мембране. Большой INa на проксимальной мембране по отношению к межклеточной щели в месте вставочного диска (где сосредоточены Na+-каналы) генерирует отрицательный внеклеточный потенциал в пределах щели, который деполяризует дистальную мембрану и активирует ее Na+-каналы.
Таким образом, распространение может продолжаться далее даже при отсутствии щелевых контактов, если на вставочном диске имеется большой INa и узкая (от 2 до 5 нм) межклеточная щель, разделяющая две рядом расположенные клетки. Исследования с применением компьютерного моделирования показали, что при определенных условиях эфаптическая связь может играть важную роль в распространении электрического импульса в миокарде. Кроме того, эфаптическая передача может объяснить тот факт, что скорость проведения возбуждения не зависит от уменьшения сопряжения межклеточными щелевыми контактами. Однако установление важности и вклада эфаптической передачи в распространение потенциала действия в нормальном миокарде в настоящее время затруднено.
в) Анизотропное проведение. Анизотропия представляет собой скорость проведения, которая зависит от направления. Изотропное проведение однородно во всех направлениях в отличие от анизотропного проведения. Анизотропия является нормальной характеристикой сердечной мышцы и связана с различиями в продольной и поперечной скоростях проведения, которые объясняются более низким сопротивлением миокарда в продольном (параллельном длинной оси пучков волокон миокарда) направлении по сравнению с поперечным направлением.
В нормальном сократительном миокарде взрослого человека определенный кардиомиоцит электрически связан в среднем примерно с 11 соседними кардиомиоцитами, при этом щелевые контакты преимущественно локализуются во вставочных дисках на стержневидных концах клеток. Боковые (от одной стороны к другой) щелевые контакты на боковых мембранах вне вставочного диска гораздо менее многочисленны и встречаются чаще в предсердиях, чем в желудочках. Такое особое субклеточное распределение щелевых контактов является основным фактором, определяющим анизотропное проведение электрического импульса в сердце; волновой фронт должен пройти больше кардиомиоцитов, расположенных поперечно, чем расположенных продольно на эквивалентном участке, потому что диаметр клетки намного меньше ее длины.
Кроме того, возникает меньшее межклеточное сопряжение за счет щелевых контактов и, следовательно, большее сопротивление и более медленное проведение электрического импульса в поперечном направлении, чем в продольном.
В нормальном сократительном миокарде существует еще один уровень анизотропии, вторичный по отношению к нарушениям трехмерной архитектуры кардиомиоцитов на тканевом уровне. Миокард не является непрерывным и однородным. В предсердиях и желудочках отчетливо видны слои или пучки кардиомиоцитов размером примерно от 100 мкм до нескольких миллиметров. Кардиомиоциты миокарда не связаны исключительно поперек направления расположения клеток. Кардиомиоциты желудочков расположены слоями толщиной от 4 до 6 клеток (называемых листами, миоламинами или пластинками). Эти слои разделены расщелинами, заполненными соединительной тканью, через которые осуществляется небольшое прямое межклеточное сопряжение; и они образуют разветвленную сеть. Наряду с ламинарным расположением кардиомиоцитов присутствует трансмуральное вращение миофибрилл, что усложняет организацию кардиомиоцитов.
В нормальном сердце направление волокон миокарда постепенно изменяется от эндокарда к эпикарду почти на 90°. Более низкое осевое сопротивление в продольном волокне при миоламинарном расположении, чем таковое в поперечном направлении, еще больше усугубляет электрическую анизотропию.
г) Взаимоотношение источник-приемник. Взаимотношения источник-приемник отражают взаимодействие между основными факторами, влияющими на ток источника (скорость нарастания подъема и амплитуда потенциала действия), и факторами, влияющими на потребности приемника в токе (сопротивление мембраны, разница между потенциалом покоя и пороговым потенциалом, межклеточное взаимодействие и геометрия ткани).
Во время распространения потенциала действия возбужденная клетка является источником электрического заряда для деполяризации соседних невозбужденных клеток. Факторы, необходимые для достижения порогового Em в соседних клетках в состоянии покоя, определяют электрический приемник (нагрузку) для возбужденной клетки. Для адекватного распространения электрического импульса возбуждаемая клетка должна предоставить достаточный заряд, чтобы изменить Em на участке приемника от диастолического уровня до порогового.
Как только достигается пороговый уровень и генерируется потенциал действия, нагрузка с возбужденной клетки снимается, и вновь возбужденная клетка переключается с приемника на источник по отношению к последующей клетке. Таким образом происходит процесс распространения потенциала действия. Потенциалы действия являются регенеративными, потому что они могут передаваться на большие расстояния без затухания. Распространение электрического импульса будет продолжаться на адекватном уровне до тех пор, пока активные источники могут генерировать ток, покрывающий потребности локальных приемников. Однако если приемник будет подавлять источник, проведение станет невозможным.
Ток, формируемый источником, должен достигать приемника. Ток на пути между источником и приемником встречается с внутриклеточным сопротивлением (обеспечиваемым цитоплазмой) и с межклеточным сопротивлением (обеспечиваемым щелевыми контактами). Также определенную роль играет внеклеточное сопротивление, однако им часто можно пренебречь. Сопротивление сопряжения определяется в основном сопротивлением щелевых контактов. Следовательно, количество и распределение щелевых контактов, а также проводимость белков щелевых контактов (коннексинов) и геометрия взаимоотношений источник-приемник являются важными факторами, обеспечивающими распространение потенциала действия.
Причиной несоответствия источник-приемник может являться резкое изменение структуры клеточной сети, что наблюдается в соединении волокон Пуркинье с миокардом желудочков. Каждый кардиомиоцит волокон Пуркинье (источник) передает импульс сотням или тысячам кардиомиоцитов желудочков (приемник). Это несоответствие может потенциально привести к рассеиванию тока от источника на множество соседних клеток (приемников), и в каждой из них аккумулированный заряд может оказаться недостаточным для генерации потенциала действия, что приведет к нарушению проведения электрического импульса. Тем не менее, в нормальном сердце локальная структура клеточной сети и резкие изменения геометрических свойств незначительны.
Они не способствуют достаточному рассогласованию между приемником и источником и не вызывают блокаду проведения при нормальном потенциале действия, поскольку фактор надежности для проведения электрического импульса достаточно велик (т.е. ток активации является избыточным по сравнению с током, необходимым для распространения потенциала действия). Однако если потенциал действия происходит ненормально или невозбужденная область имеет пониженную возбудимость (например, при острой ишемии) или и то, и другое, анатомические препятствия могут привести к блокаде проведения.
Уменьшение межклеточного сопряжения может повысить безопасность распространения, несмотря на наличие значительного несоответствия источник-приемник. Например, в СА-узле, где небольшой источник тока встречается с большим приемником (предсердием). На границе СА-узел/предсердие экспрессия коннексинов незначительна, что защищает возбуждающий ток, генерируемый в СА-узле, от рассеивания далее по направлению распространения возбуждения.
Важно отметить, что такие тканевые структуры могут демонстрировать направленную асимметрию во взаимоотношениях источник-приемник. Источник меньше, чем приемник в ортодромном направлении распространения возбуждения, но больше, чем приемник в противоположном направлении. В зависимости от величины разницы источник-приемник это приводит либо к локальной задержке проводимости, либо к блокаде проведения возбуждения в месте контакта при ортодромном проведении.
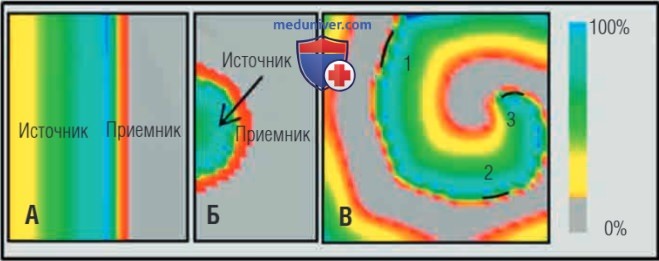
Кроме того, основным фактором, определяющим эффективность распространения возбуждения, является форма волнового фронта. Скорость проведения возбуждения зависит от кривизны волны, что связано с балансом источник-приемник (рис. 1.6). Волновой фронт выпуклой формы, который можно наблюдать после точечной стимуляции, имеет меньший источник и больший приемник, поскольку локальный возбуждающий ток, подаваемый клетками от выпуклой волны возбуждения, расходится на большую площадь мембраны далее по ходу распространения возбуждения. И наоборот, волновой фронт вогнутой формы формирует разницу источник-приемник в пользу источника, что становится причиной высокого фактора надежности и более быстрой передачи электрического импульса. Следовательно, по мере увеличения кривизны волнового фронта скорость проведения уменьшается.
Кривизна волны и баланс между источником и приемником. (А) При волновых фронтах плоской формы наблюдается баланс между источником и приемником, тогда как при (Б) волновых фронтах выпуклой формы отмечается меньший источник и больший приемник. (В) Кривизна спиральной волны увеличивается по мере движения вдоль волнового фронта к центру спирали (кривизна в точке 3 больше, чем в точке 2, которая больше, чем в точке 1). На самой внутренней поверхности волнового фронта источник слишком мал, чтобы возбуждать соседний приемник; результатом является ядро невозбужденных клеток, вокруг которых происходит вращение. Цветная полоса отображает процент деполяризации; серым цветом отмечен подпороговый потенциал
д) Фактор надежности для проведения возбуждения. Коэффициент надежности для проведения помогает предсказать возможность распространения потенциала действия и основан на взаимоотношении источник-приемник. Фактор надежности определяется как отношение тока, генерируемого обеспечивающими деполяризацию ионными токами клетки (источника), к току, потребляемому в течение цикла возбуждения отдельной клеткой в ткани (приемник). Таким образом, коэффициент надежности для распространения возбуждения пропорционален избыточному току от источника, превышающему потребности приемника. Согласно этому, проведение электрического импульса нарушается, когда коэффициент надежности становится <1, и стабилизируется, когда он становится >1.
Возбудимость мембраны, межклеточное сопряжение и структура ткани значительно влияют на надежность распространения возбуждения. Фактор надежности постепенно снижается по мере снижения возбудимости мембраны. Кроме того, фактор надежности имеет тенденцию к снижению при распространении возбуждения от клетки меньшего размера к клетке большего размера или от относительно меньшего количества клеток к большему их количеству.
С другой стороны, хотя уменьшение межклеточного сопряжения между клеткой-источником и клеткой-приемником приводит к замедлению проведения возбуждения, это связано с большей надежностью проводимости. Разобщение клетки-источника и соседних клеток предотвращает его перегрузку от факторов, необходимых приемнику. По мере того, как клетки становятся менее сопряженными, происходит ограничение деполяризующего тока в источнике с меньшей электротонической нагрузкой и осевым потоком заряда к далее расположенным приемникам. В результате деполяризация отдельных клеток происходит с высоким запасом надежности, но проведение электрического импульса осуществляется с длительными межклеточными задержками.
При таком низком уровне сопряжения проведение электрического импульса очень медленное, но, как ни парадоксально, очень надежное. Благодаря такому высокому коэффициенту надежности в миокарде может поддерживаться чрезвычайно низкая скорость проведения возбуждения на фоне незначительного межклеточного сопряжения.