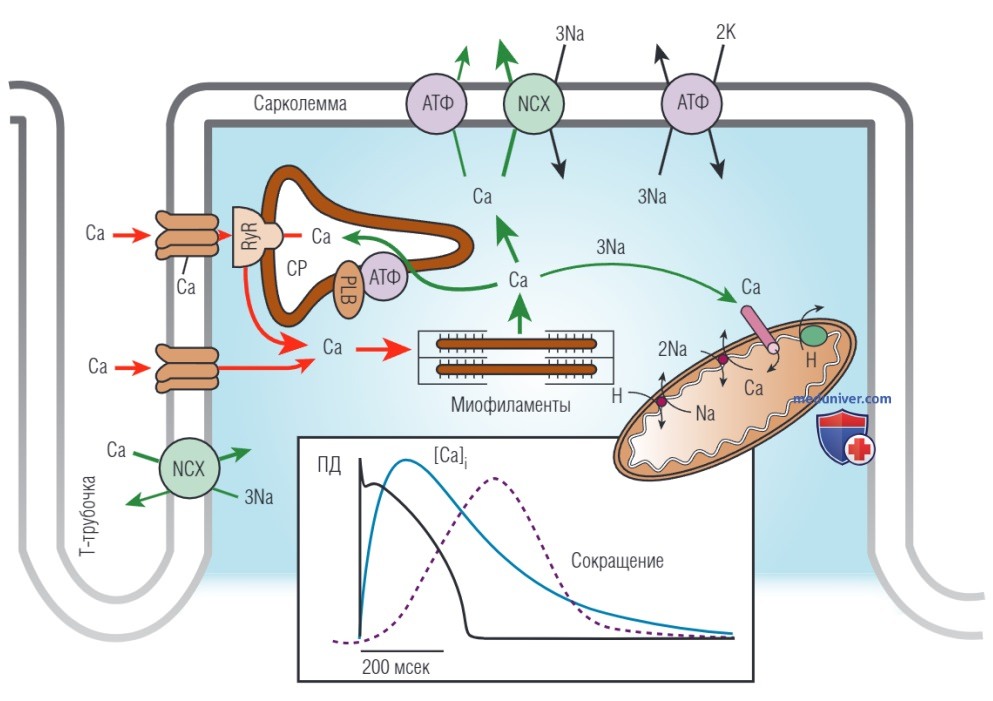
Электромеханическое сопряжение представляет собой физиологический процесс, при котором электрическая стимуляция кардиомиоцитов (потенциал действия) преобразуется в механическое действие (мышечное сокращение). Сокращение кардиомиоцита в первую очередь определяется уровнем внутриклеточного Са2+ (рис. ниже).
Электромеханическое сопряжение. На вставке: диаграмма, показывающая взаимосвязь между трансмембранным потенциалом действия (ПД), током Са2+ и ответным сокращением в миокарде желудочка. NCX — Na+/Ca2+-обменник; PLB — фосфоламбан; RyR — рианодиновый рецептор; СР — саркоплазматический ретикулум; АТФ — Са2+ аденозинтрифосфатаза
Вход Са2+ в клетку происходит во время фазы плато потенциала действия через Са2+-каналы L-типа, выстилающие области специализированных инвагинаций, известных как поперечные (Т) трубочки. Повышение концентрации Са2+ внутри клетки недостаточно для инициации сокращения.
При этом небольшое количество Са2+, поступающих в клетку через ICaL запускает их массовое высвобождение из саркоплазматического ретикулума, продольных (L) трубочек, (депо Са2+) в цитозоль, открывая каналы с рианодиновым рецептором 2 (RyR2) (которые находятся в мембране саркоплазматического ретикулума) в процессе, известном как индуцированное кальцием высвобождение кальция (CICR).
Приблизительно 75% Са2+, присутствующих в цитоплазме во время сокращения, высвобождается из саркоплазматического ретикулума.
Каждое соединение между сарколеммой (Т-трубочкой) и саркоплазматическим ретикулумом (L-трубочкой), где сгруппированы от 10 до 25 Са2+-каналов L-типа и от 100 до 200 RyR, составляет локальный сигнальный комплекс Са2+, называемый «куплоном» ("couplon").
Когда Са2+-канал открывается, локальная концентрация Са2+ в цитозоле повышается менее чем за 1 мсек до 10-20 мкм в соединительной щели, это активирует RyR2 и Са2+ высвобождается из саркоплазматического ретикулума. Непосредственная близость RyR2 к Т-трубочке позволяет каждому Са2+-каналу L-типа активировать от 4 до 6 RyR2 и генерировать «Са2+ разряд».
Приток Са2+ через ICaL одновременно активирует примерно от 10 000 до 20 000 «куплонов» в каждом кардиомиоците желудочка во время потенциала действия.
При CICR уровни Са2+ в цитозоле повышаются примерно с 10-7 М до 10-5 М. Свободные Са2+ связываются с тропонином С, компонентом регуляторного актинового комплекса, что приводит к конформационным изменениям в комплексе тропонин-тропомиозин.
Далее тропонин I отсоединяется от актина, при этом открывается активный участок на молекуле актина, способный связываться с миозиновой АТФазой, расположенной на миозиновой головке. Связывание инициирует гидролиз АТФ, что обеспечивает энергией дальнейшие конформационные изменения в комплексе актин-миозин. Результатом этих изменений является движение (гребок) между головками миозина и актином, и нити актина и миозина скользят относительно друг друга, что приводит к укорочению длины саркомера.
Циклы гребкового механизма продолжаются до тех пор, пока уровень цитозольного Са2+ остается повышенным.
CICR обычно вызывает высвобождение примерно 50-60% Са2+, содержащегося в саркоплазматическом ретикулуме. Повышение концентрации Са2+ в щели и, что более важно, снижение содержания Са2+ в саркоплазматическом ретикулуме приводят к инактивации каналов RyR2 по механизму обратной связи (процесс, называемый Са2+-зависимой дезактивацией в соединительной щели).
Этот процесс гарантирует, что в физиологических условиях саркоплазматический ретикулум никогда не высвободит весь Са2+.
Для расслабления необходимо удаление из цитозоля Са2+, процесса, жизненно важного для расслабления и наполнения камер сердца, а также для предупреждения аритмий. В конце фазы 2 потенциала действия поступление Са2+ в клетку замедляется, большая часть избыточного Са2+ в цитозоле повторно закачивается в саркоплазматический ретикулум посредством SERCA, активность которого контролируется фосфопротеином фосфоламбаном.
Кроме того, некоторая часть Са2+ высвобождается из клетки через Na+/Са2+-обменник сарколеммы и, в меньшей степени, Са2+ АТФазой сарколеммы, чтобы уравновесить уровень Са2+, входящего в клетку с ICaL. Когда в цитозоле падает концентрация Са2+, он быстро высвобождается из миофиламентов.
Это вызывает конформационные изменения в тропонине, что приводит к ингибированию тропонином I активного участка связывания актина. В конце цикла новая молекула АТФ связывается с головкой миозина, вытесняя аденозиндифосфат.
Первоначальная длина саркомера восстанавливается, тем самым останавливая сокращение. Повторяющиеся циклы высвобождение-захват Са2+ обеспечивают периодические повышения концентрации Са2+ в цитозоле и сокращение кардиомиоцитов и, следовательно, упорядоченное биение сердца.