Введение в эмбриогенез органов чувств - кратко с точки зрения эмбриологии
1. Эволюция. Возникновение рассеянных чувствительных клеток у простейших многоклеточных организмов наводит на мысль, что органы чувств образуются путем скопления чувствительных клеток в сенсорных областях.
Аналогичное развитие хрусталикового глаза у животных различных классов указывает на воздействие отбора, определяемого физическими свойствами света. Первичные светочувствительные клетки, обнаруженные в нервной трубке ланцетника, могут быть предшественниками светочувствительных клеток шишковидной железы, которая поддерживает дефинитивные глаза позвоночных (боковые глаза).
Развитие вторичных чувствительных клеток, т.е. сегрегация чувствительных клеток и появление нейроцитов, является особенностью, встречающейся только у позвоночных. Это приводит к процессингу стимулов посредством сложной схемы непосредственно в органах чувств.
А. Классификация плакод. Б. Миграция головной мезодермы и дифференцировка плакод
2. Плакоды. Плакоды могут рассматриваться как примитивные сенсорные области в эмбриональной эктодерме. Плакоды головы дают начало центральным органам чувств. Дорсолатеральные плакоды — зачатки органов чувств типа боковой линии, которые редуцируются до слуховых и вестибулярных органов у сухопутных позвоночных. Эпифарингеальные плакоды — зачатки вкусовых сосочков, которые также смещаются кнутри и сильно редуцируются в течение перехода к жизни на суше.
В дополнение к чувствительным клеткам плакоды дают начало ассоциативным периферическим нервным клеткам. Например, они формируют преддверно-улитковый ганглий и двойной ганглионарный ряд черепных нервов. Нервный гребень может рассматриваться как плакода для чувствительных клеток кожи и афферентных нервных волокон, а также для рецепторов нервных сплетений пищеварительного тракта.
3. Цепи трансдукции. Чувствительные клетки для обоняния, зрения и слуха несут преобразованную киноцилию и, вероятно, происходят от снабженных ресничками клеток эктодермы. Вкусовые клетки, с другой стороны, не имеют ресничек. Только в волосковых клетках слуховых и вестибулярных органов происходит движение ресничек, все еще служащее для приема стимулов; все другие чувствительные клетки обладают мембранными рецепторами, аналогичными рецепторам гормонов.
Рецепторные белки, которые обладают семью трансмембранными доменами, являются членами семьи, которая также включает мускариновый ацетилхолиновый рецептор, адренергические рецепторы и GABAB-рецепторы. Все они объединяются в G-протеины. Обонятельный рецептор формирует разнообразные антигенные детерминанты на поверхности клеток для различных пахучих веществ, феномен, напоминающий о разнообразии рецепторов, найденных в иммунной системе.
G-протеины в чувствительных клетках регулируют функциональное состояние клетки посредством аденилатциклазы и цАМФ- или цГМФ-уровней. Это соответствует гормональному контролю дифференцированных клеток. G-протеин объединяет рецепторы, которые появляются на определенных фазах эмбрионального развития, воздействуя на активность С-фосфолипазы и, таким образом, влияя на регуляцию клеточного цикла, дифференцировку клеток и их морфогенез.
4. Боковые (латеральные) линии. У водоплавающих позвоночных латеральные линейные органы головы (лицевая система) и туловища (боковой нерв, связанный с блуждающим нервом), так же как и вестибулярный орган, возникают из дорсолатеральных плакод. Эпифарингеальные плакоды образуют вкусовые сосочки, которые могут встречаться и в эктодерме глоточной щели, и в глотке (энтодерма глоточных дивертикулов). Вкусовые сосочки связаны с нижними ганглиями лицевого, языкоглоточного и блуждающего нервов.
Чувствительные клетки во вкусовых сосочках не образуются непосредственно из плакод, скорее они индуцируются аксонами афферентных нейронов, возникающих из эпифарингеальных плакод. Иннервация вкусовых сосочков осуществляется одновременно с сенсорной иннервацией глотки языкоглоточным и блуждающим нервами и общей сенсорной иннервацией пищеварительного тракта, образованными из нервного гребня частями автономной нервной системы.
5. Обоняние. В течение индукции обонятельной плакоды стенка переднего мозга и будущий обонятельный эпителий плотно прилегают друг к другу. Этот индуктивный контакт существенен для функциональной связи между обонятельным эпителием и обонятельным мозгом и стимулирует регенеративный рост обонятельных волокон в обонятельной луковице даже во взрослом организме.
Первоначально нейроэпителий обонятельной луковицы полностью интегрирован в стенку переднего мозга. В эмбриональном периоде луковица формирует нисходящий отросток, который позже (в плодном периоде) формирует горизонтально лежащую обонятельную луковицу. Перемещение обонятельной луковицы в горизонтальное положение вызвано ростом переднего мозга и мозолистого тела. В обонятельных волокнах отмирают только афференты головного мозга, которые не образуют синапс в таламусе.
Сложная схема, которая соединяет первичные обонятельные чувствительные клетки с митральными клетками в гломерулы луковицы, соответствует схеме вторичных чувствительных клеток в сетчатке и в спиральном ганглии слуховых и вестибулярных органов
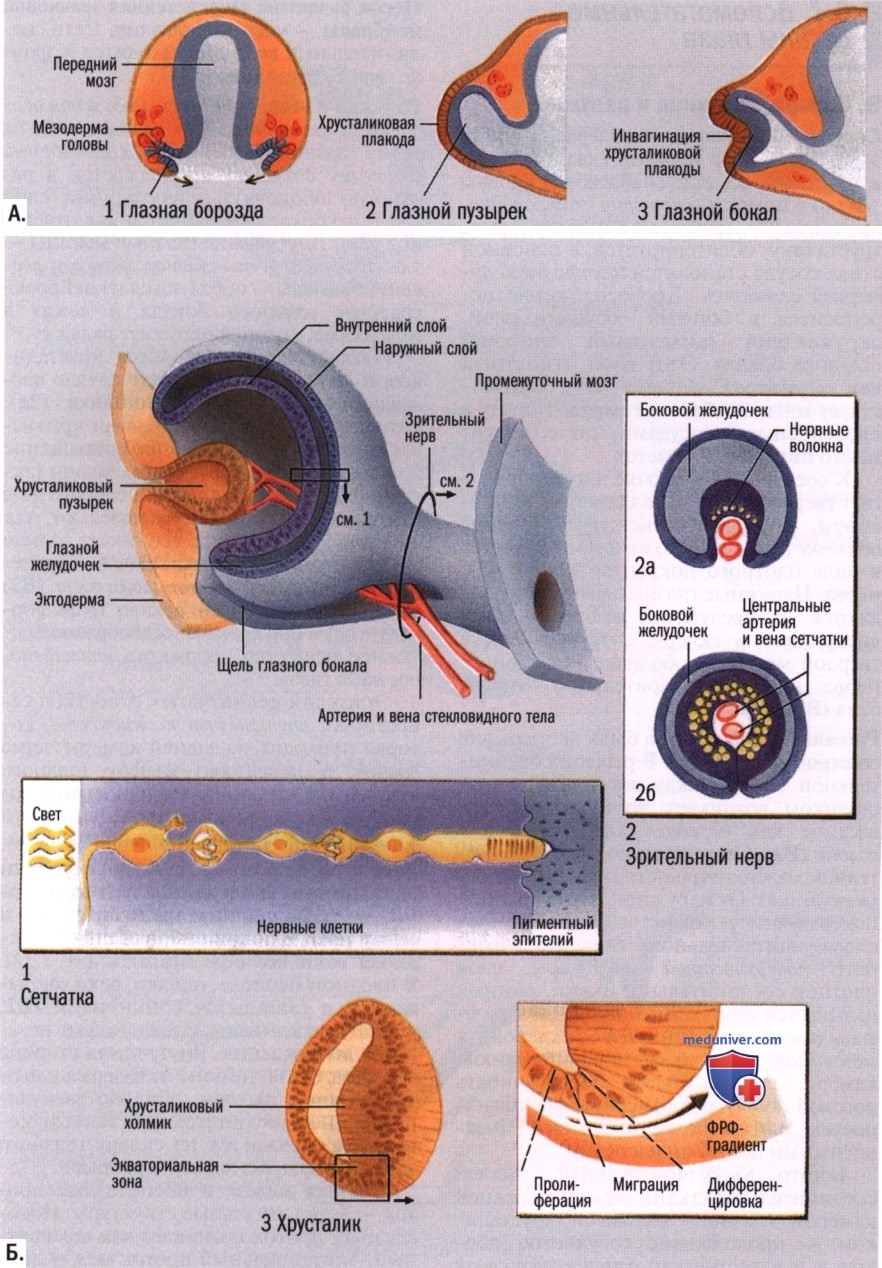
А. Развитие глазного бокала. Б. Глазной бокал и щель глазного бокала
6 и 7. Глаз. Происхождение глаза и его вспомогательных структур из глазного бокала, поверхностной эктодермы и головной мезодермы — классическая концепция, относящаяся ко времени реконструкций Mann (1928). Здесь это подкреплено только обсуждением недавних молекулярных данных, указывающих на роль фибробластического фактора роста (FGF) как вторичного эмбрионального индуктора в развитии хрусталика.
8. Происхождение наружного, среднего и внутреннего уха. Краткий обзор развития уха из слухового пузырька, глоточной щели и дивертикула следует описанию Пэттеном, в котором подразделение лабиринта на слуховую цепь мелких косточек является уже свершившимся фактом, включенным в гистологические срезы эмбриональной стадии.
9. Внутреннее ухо. Преобразование слухового пузырька в лабиринт с полукружными протоками и улиткой уха описано с реконструкции восковой пластины Streeter (1906). Множество клеточных деталей указано в каждом показанном срезе. Эндолимфатическое пространство, как и субарахноидальное пространство, формируется в рыхлой мезенхиме, которая отделяет нейроэпителий слухового пузырька от хрящевой капсулы и впоследствии оссифицированной височной кости.
Купола вестибулярного органа и покровная мембрана в улитке возникают при внеклеточной дифференцировке поверхности поддерживающих клеток в сенсорном эпителии. Трехмерный рисунок ампулы по Werner (1960) показывает, что срезы, обычно сделанные через ампулу, плоские, которые не могут показать движение купулы относительно кутикулярной пластинки.
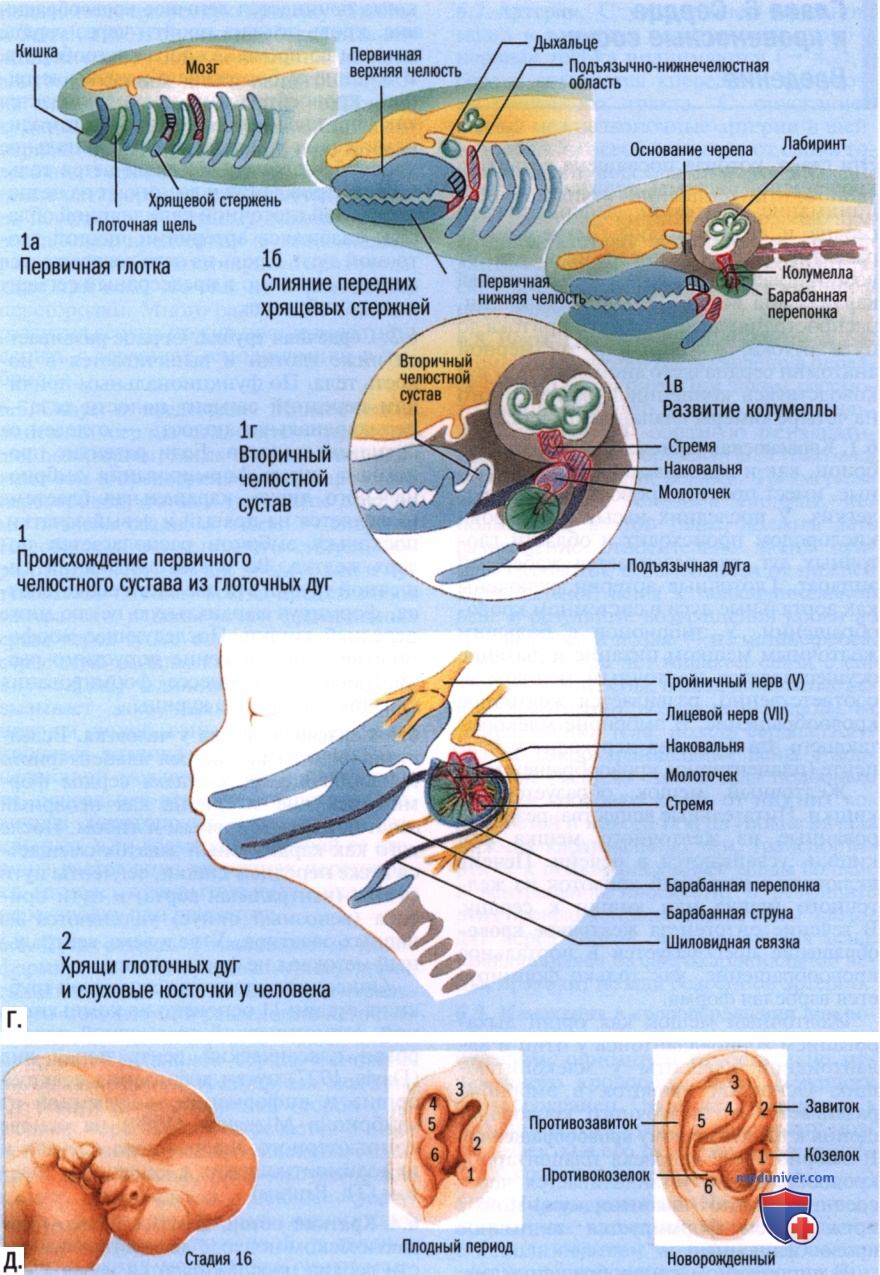
Г. Смещение первичного челюстного сустава в цепь слуховых косточек. Д. Развитие ушной раковины
10. Цепи мелких слуховых косточек. Превращение первичного сустава челюсти в цепь мелких слуховых косточек полностью иллюстрируется эволюцией позвоночных. Слияние передних хрящевых стержней фильтрующей кишки ланцетника дает начало первичным верхней и нижней челюстям, которые остаются присоединенными к последующим хрящам и могут открываться подобно движению ножниц.
С развитием основания черепа и перехода к жизни на суше верхний элемент становится свободным и может развиться в мелкую слуховую кость (columella), которая в форме спирали соединяет примитивную улитку (lagena) и барабанную перепонку. С развитием вторичного сустава челюсти у млекопитающих возникают два дополнительных свободных костных элемента и первичная объединенная челюсть освобождается от своей функции. Вместе со стременем, которое представляет собой преобразованную ось, эти две кости преобразуются в цепь мелких слуховых косточек.
Развитие слуховой раковины из ушных бугорков, с другой стороны, есть эмбриональное развитие, специфическое для людей, и поэтому излагается в терминах чисто описательной эмбриологии человека.