а) Строение и физиология. Каналы, высвобождающие кальций из саркоплазматического ретикулума, также называют рианодин-чувствительными каналами 2. Канал высвобождения Са2+ представляет собой макромолекулярный комплекс, образованный гомотетрамером изоформы сердечного рецептора рианодина (RyR2, кодируемого геном RyR2) и некоторыми белками, локализованными как на цитозольной, так и на люминальной стороне мембраны саркоплазматического ретикулума. Сердечный RyR2, безусловно, самый большой белок комплекса, действует как Са2+-проводящий канал.
Каналы RyR2 примерно в 10 раз больше, чем потенциал-зависимые Са2+-каналы и Na+-каналы.
Каждый мономер RyR2 содержит трансмембранный домен, область формирования пор, который состоит из четного, но все еще неопределенного числа (вероятно, от 6 до 8) трансмембранных сегментов. Этот домен охватывает только приблизительно 10% белка, сгруппированного на С-конце, но он играет важную функциональную роль, поскольку содержит последовательности, которые контролируют локализацию и олигомеризацию RyR2, и достаточны для формирования функционального канала высвобождения Са2+.
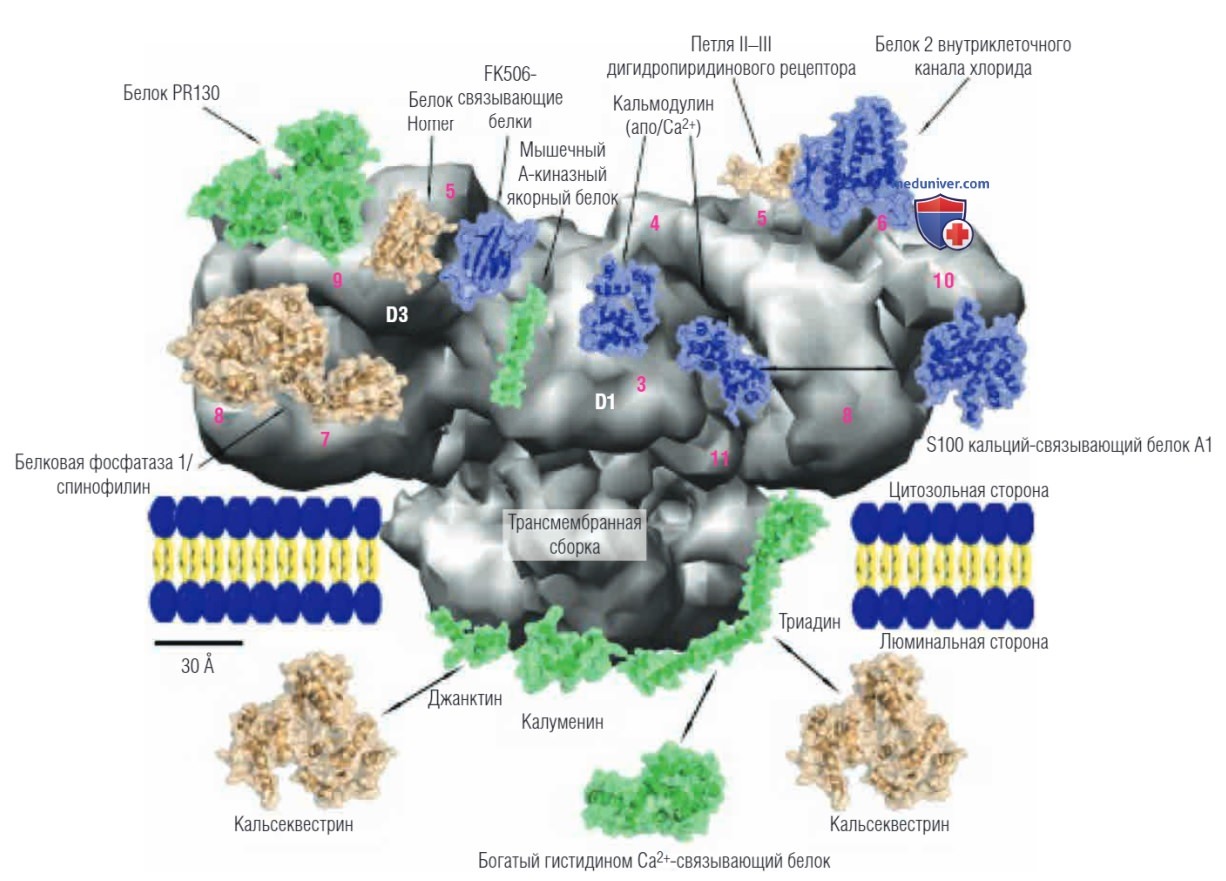
Оставшиеся 90% белка на N-конце содержат огромный цитоплазматический домен, который служит цитозольным каркасом, взаимодействующим с регуляторными молекулами (включая Са2+, АТФ) и белками (включая FKBP12.6, кальмодулин). На стороне просвета (саркоплазматического ретикулума) RyR2 образует часть большого четвертичного комплекса с кальсеквестрином (CASQ2), триадином и джанктином. Вместе эти четыре белка образуют ядро комплекса каналов высвобождения Са2+ (рис. ниже).
Трехмерная схема сборки рецептора рианодина (RYR). Большая серая структура показывает вид сбоку на гомотетрамер RyR. Для того чтобы показать взаимодействия между RyR, связанным с мембраной саркоплазматического ретикулума, и ассоциированными с ним белками, была использована схема реконструкции RyR1 кролика в закрытом состоянии с помощью одночастичного криоэлектронного микроскопа с разрешением 10 А. Местоположение каждого домена помечено красными цифрами. D1-D3 и трансмембранная сборка (ТА) указывают на расходящуюся область и домен трансмембранной сборки. D2 расположен в бороздке, скрытой доменами 5 и 6
Сердечный RyR2 функционирует как активированный лигандом ионный канал, который активируется (открывается) при связывании с Са2+. Однако точные структурные детерминанты стробирования RyR пока неизвестны. RyR2 обычно закрыт при низких концентрациях цитозольного Са2+ (приблизительно от 100 до 200 нМ) во время диастолы.
При субмикромолярных концентрациях Са2+ в цитозоле, Са2+ связывается с высокоаффинными сайтами связывания на RyR2 и, таким образом, увеличивает вероятность открытия канала (для открытия канала RyR2 нужны два Са2+) и позволяет высвобождать Са2+ из саркоплазматического ретикулума в цитозоль.
Точное сопоставление сарколеммальных специализированных инвагинаций (известных как Т-канальцы) и саркоплазматического ретикулума образует специфические соединительные микродомены, создавая зазор от 10 до 12 нм, известный как диадическая щель. RyR2 собраны в паракристаллическую решетку в каждой диаде, содержащую от 80 до 260 каналов, где находится цитоплазматическая область RyR2, и ее трансмембранная область охватывает мембрану саркоплазматического ретикулума, чтобы погрузить просветную часть в хранилище Са2+ саркоплазматического ретикулума. Каждый массив RyR2 сталкивается с 10-25 Са2+-каналами L-типа в Т-канальце сарколеммы.
Следовательно, каждая диада представляет собой локальный сигнальный комплекс Са2+ или «сцепку», посредством которого эти белки координированно регулируются посредством изменения концентраций Са2+, Na+ и К+ в пределах диадической щели.
Примерно через 10 мсек после открытия канала RyR2 высвобождение Са2+ из саркоплазматического ретикулума прекращается, и искровой сигнал Са2+ начинает затухать, в основном из-за диффузии Са2+ от его источника. Активность канала RyR2 максимальна при концентрациях цитозольного Са2+ приблизительно 10 мкм.
Повышение концентрации цитозольного Са2+ за пределами этой точки приводит к снижению вероятности открытия канала, возможно, из-за связывания Са2+ с низкоаффинными ингибирующими сайтами связывания на канале RyR2.
Инактивация высвобождения Са2+ недостаточно изучена. Это, вероятно, опосредовано Са2+-индуцированной инактивацией RyR2, таким образом, подавляя CICR стохастическим истощением, или истощением Са2+ саркоплазматического ретикулума, или и тем, и другим.
Вероятность открытия RyR2 увеличивается за счет повышения концентрации Са2+ в саркоплазматическом ретикулуме. Когда уровни Са2+ в саркоплазматическом ретикулуме достигают критического порога, спонтанное высвобождение Са2+ (перелив) может происходить даже при наличии нормальных каналов (высвобождение Са2+, вызванное перегрузкой хранилища [SOICR]). Концентрация Са2+ в саркоплазматическом ретикулуме физиологически повышается в результате адренергической (симпатической) стимуляции.
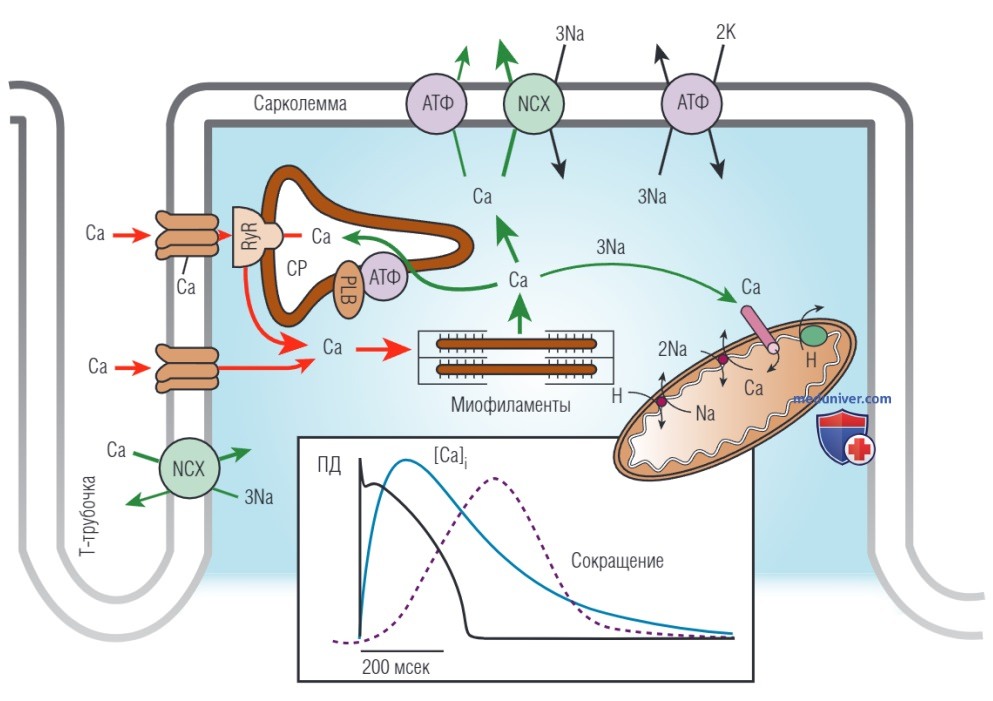
б) Функция. Каналы RyR2 являются важным компонентом связи возбуждения и сокращения и действуют как стражи большого саркоплазматического ретикулума, хранящего Са2+. Связь возбуждения и сокращения описывает физиологический процесс преобразования электрического стимула (потенциала действия) в механическую реакцию (сокращение мышц). Сокращение кардиомиоцита регулируется главным образом внутриклеточной концентрацией Са2+ (см. рис. ниже). Са2+ поступает в клетку во время фазы плато потенциала действия через Са2+-каналы L-типа, которые выстилают Т-канальцы сарколеммы.
Электромеханическое сопряжение. На вставке: диаграмма, показывающая взаимосвязь между трансмембранным потенциалом действия (ПД), током Са2+ и ответным сокращением в миокарде желудочка. NCX — Na+/Ca2+-обменник; PLB — фосфоламбан; RyR — рианодиновый рецептор; СР — саркоплазматический ретикулум; АТФ — Са2+ аденозинтрифосфатаза
Однако повышение внутриклеточного Са2+ невелико и недостаточно для того, чтобы вызвать сокращение. Тем не менее, небольшое количество Са2+, поступающее в клетку через ICaL, вызывает быструю мобилизацию Са2+ из саркоплазматического ретикулума в цитозоль, открывая каналы RyR2 в процессе CICR. Приблизительно 75% Са2+, присутствующего в цитоплазме во время сокращения, высвобождается из саркоплазматического ретикулума. Близкое расположение RyR2 к Т-канальцу позволяет каждому Са2+-каналу L-типа активировать 4-6 RyR2 и генерировать выплеск Са2+.
Приток Са2+ через ICaL одновременно активирует примерно от 10 000 до 20 000 межклеточных соединений каждого миоцита желудочка с каждым потенциалом действия. Такая сложная координация открытия и закрытия необходима для обеспечения высвобождения Са2+ во время систолической фазы сердечного цикла и функциональной тишины во время диастолы.
Люминальная Са2+-зависимая дезактивация RyR2 — это процесс, посредством которого снижение Са2+ саркоплазматического ретикулума, которое следует за высвобождением Са2+ из саркоплазматического ретикулума, делает RyR2 функционально неактивным. Это приводит к прекращению CICR и индукции рефрактерного состояния, которое подавляет высвобождение Са2+ во время диастолы, что является важным фактором, определяющим механическую рефрактерность, необходимую для эффективного расслабления и наполнения сердца.
в) Регуляция. Многие белки прямо или косвенно взаимодействуют с N-концевым цитоплазматическим доменом RyR2, включая FK506-связывающий белок (калстабин 2 или FKBP12.6), ПКА, Са2+-кальмодулин-зависимую киназу II (СаМКП), фосфодиэстеразу 4D3, кальмодулин, белковые фосфатазы 1 и 2А, сорцин. CASQ2, джанктин и триадин связываются с просветным (саркоплазматическим ретикулумом) С-концом RyR2.
1. Кальсеквестрин. CASQ2 представляет собой низкоаффинный Са2+-связывающий белок с высокой пропускной способностью, который служит резервуаром для хранения Са2+, способным связывать Са2+ в просвете (от 40 до 50 Са2+ на молекулу) во время диастолы, таким образом буферизуя Са2+ в саркоплазматическом ретикулуме (т.е. предотвращая осаждение Са2+ и снижая концентрацию свободного Са2+ в просвете) и предотвращая диастолическое высвобождение Са2+ через RyR2 в цитозоль.
CASQ2 предположительно служит люминальным датчиком Са2+, который модулирует чувствительность RyR2 к Са2+ в просвете. При низких концентрациях Са2+ в просвете CASQ2 взаимодействует с RyR2 посредством связывания с триадином и джанктином и ингибирует активность RyR2. Когда уровни Са2+ в саркоплазматическом ретикулуме увеличиваются, Са2+ связывается с CASQ2, что приводит к ослаблению взаимодействий или полной диссоциации CASQ2 от триадина. Этот процесс снимает ингибирующее действие CASQ2 на комплекс RyR2, позволяет высвобождать Са2+ в цитозоль и, следовательно, нормализует нагрузку Са2+ саркоплазматического ретикулума.
Триадин и юнктин не только опосредуют функциональные взаимодействия CASQ2 и RyR2, но и сами по себе модулируют функцию RyR2, увеличивая активность канала RyR2. Эта Са2+-зависимая модуляция RyR2 триадином, джанктином и CASQ2 может способствовать деактивации и рефрактерности каналов RyR2 после высвобождения Са2+ из саркоплазматического ретикулума.
2. FK506-связывающий белок. FKBP12.6 (цитозольный FK506-связывающий белок массой 12.6 кДа), также известный как калстабин 2 (связывающий белок, стабилизирующий Са2+-канал), стабилизирует закрытое конформационное состояние канала RyR2, позволяя каналу полностью закрываться во время диастолы (при низких внутриклеточных концентрациях Са2+), предотвращая аберрантную утечку Са2+ из саркоплазматического ретикулума и обеспечивая расслабление мышц. ПКА-фосфорилирование RyR2 уменьшает сродство FKBP12.6 к RyR2, таким образом, увеличивая вероятность открытого состояния, а также усиливает ответ на Са2+-зависимую активацию.
3. Кальмодулин. Кальмодулин представляет собой Са2+-связывающий белок с повсеместной экспрессией, который выполняет регуляторную функцию для многочисленных Са2+-зависимых процессов. Основным партнером по связыванию кальмодулина в клетках сердца является RyR2. Кальмодулин имеет четыре сайта связывания Са2+ и четыре сайта, которые связываются с мономерами RyR2. Кальмодулин преимущественно ингибирует RyR2 при концентрациях Са2+ ниже 10 мкм путем связывания с областью на RyR2. Кальмодулин может функционировать для содействия закрытию RyR2 после высвобождения Са2+ саркоплазматического ретикулума при взаимодействии возбуждения и сокращения.
4. Протеинкиназа А. Стимуляция p-адренорецепторов приводит к увеличению цАМФ и последующей активации ПКА. ПКА взаимодействует с каналом RyR2 посредством связывания с якорным белком А-киназы в мышцах (mАКАР). ПКА-фосфорилирование RyR2 активирует канал, по крайней мере частично, за счет повышения чувствительности RyR2 к цитозольному Са2+ и временного снижения сродства к связыванию кальстабина 2. Это позволяет увеличить высвобождение Са2+ в саркоплазматическом ретикулуме при поступлении Са2+ через ICaL как часть механизма реакции «бей или беги».
Напротив, хроническое чрезмерное ПКА-фосфорилирование RyR2 может привести к неполному закрытию канала и утечке Са2+ во время диастолы, что вызывает истощение запасов Са2+ в саркоплазматическом ретикулуме и снижение высвобождения Са2+ при активации рецептора.
5. Кальций-кальмодулин-зависимая протеинкиназа II. СаМКП представляет собой додекамерный холофермент, активируемый кальмодулином, связанным с Са2+, возможно, при высоких клеточных нагрузках Са2+. СаМКП-фосфорилирование увеличивает вероятность открытия канала RyR2, но в меньшей степени, чем ПКА-фосфорилирование.
Активность CAMKII увеличивается при более быстрой частоте сердечных сокращений (обычно опосредованной β-адренергической стимуляцией и активацией ПКА и связанной с увеличением цитозольного Са2+) и фосфорилирует RyR2 для усиления высвобождения Са2+ саркоплазматического ретикулума, что помогает поддерживать положительную связь силы и частоты (т.е. сердечная сократимость увеличивается в зависимости от частоты сердечных сокращений). Повышенная активность СаМКИ также фосфорилирует фосфоламбан, чтобы помочь ускорить диастолическое наполнение желудочков при более высокой частоте сердечных сокращений. Физиологически симпатическая активация стимулирует как ПКА, так и СаМКП, которые, таким образом, действуют синергически.
Считается, что CAMKII располагается ниже по течению от ПКА и переходных процессов с повышенным содержанием Са2+.
г) Фармакология. RyR2 являются мишенями для множества экспериментальных препаратов. Однако до сих пор неизвестно ни одного соединения, применяемого в клинической практике, непосредственно нацеленного на RyR2.
Растительный алкалоид рианодин связывает канал RyR2 с высоким сродством Са2+-зависимым и зависимым от использования способом, что делает его важным инструментом для биохимической характеристики канала. Два сайта связывания рианодина, сайт с высоким сродством и сайт с низким сродством, были описаны на С-конце RyR2. В месте с высоким сродством рианодин вызывает длительное открытие канала в состоянии субпроводимости, в то время как высокие концентрации блокируют канал.
Кофеин в высоких концентрациях (от 5 до 20 мМ) повышает чувствительность RyR2 к Са2+ и АТФ, и приводит к увеличению вероятности открытия RyR2 и среднего времени его открытия. Кофеин используется экспериментально для косвенного измерения содержания Са2+ в саркоплазматическом ретикулуме, поскольку его применение вызывает опорожнение хранилища Са2+ в саркоплазматическом ретикулуме.
JTV-519, также известный как К201, является производным бензотиазепина (аналог дилтиазема), блокатором и стабилизатором Са2+-каналов L-типа. JTV-519 может увеличить сродство связывания кальстабина 2 с RyR2, тем самым стабилизируя закрытое конформационное состояние канала RyR2 и, следовательно, предотвращая утечку Са2+ в диастолический саркоплазматический ретикулум. JTV-519 потенциально может оказывать антиаритмическое действие при различных патологических состояниях, которые приводят к дестабилизации закрытого состояния канала RyR2, таких как мутации RyR2, гиперфосфорилирование RyR2 во время сердечной недостаточности и перегрузка саркоплазматического ретикулума Са2+.
Среди антиаритмических препаратов класса I было обнаружено, что только флекаинид и пропафенон ингибируют каналы RyR2 (вызывая кратковременное закрытие открытого RyR2 до состояний субпроводимости), подавляют аритмогенные вспышки Са2+ и предотвращают катехоламинергическую полиморфную желудочковую тахикардию (КПЖТ) в экспериментальных исследованиях. Эффективность агентов класса I для профилактики КПЖТ, по-видимому, определяется эффективностью ингибирования канала RyR2, а не блокады Na+-канала. Было продемонстрировано, что флекаинид предотвращает летальные желудочковые аритмии у пациентов с семейной КПЖТ.
Некоторые токсины (например, токсины скорпиона, императоксин А и императоксин I), некоторые противоопухолевые препараты (например, доксорубицин) и некоторые иммунодепрессанты (например, рапамицин) потенциально могут вызывать побочные эффекты со стороны сердца, вероятно, связанные с влиянием на кинетику стробирования каналов RyR2.
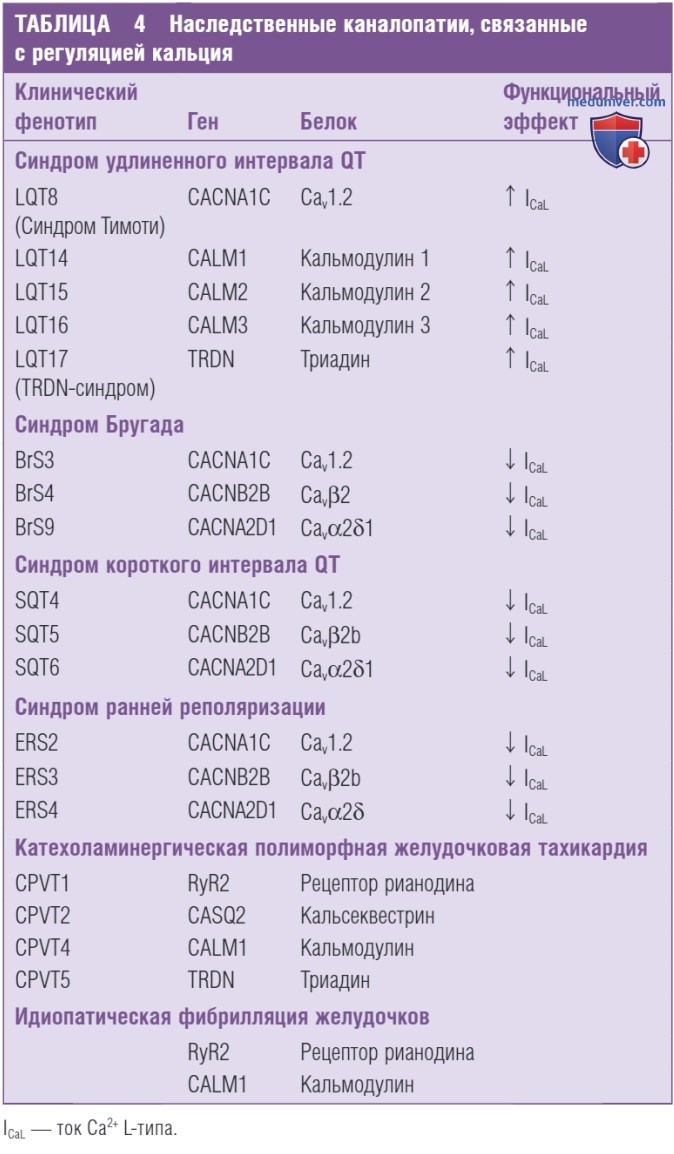
д) Наследственные каналопатии. Мутации в генах, кодирующих четыре ключевых регуляторных белка Са2+, помимо Са2+-каналов L-типа, участвуют в патогенезе КПЖТ, идиопатической фибрилляции желудочков (ИФЖ) и синдрома удлиненного интервала QT (см. табл. 4).
1. Мутации, связанные с рецептором рианодина. CPVT1 — вариант КПЖТ с аутосомно-доминантным типом наследования, является наиболее распространенным генетическим вариантом (от 50 до 70%) наследственной КПЖТ и вызван мутациями в гене RyR2. При КПЖТ мутантные RyR2s обычно дают дефекты усиления функции после активации канала ПКА-фосфорилированием (в ответ на β-адренергическую стимуляцию или кофеин), что приводит к неконтролируемому высвобождению Са2+ из саркоплазматического ретикулума во время электрической диастолы, что облегчает развитие поздней постдеполяризации и вызывает аритмии.
Миссенс-мутации в RyR2 также были связаны формой аритмогенной кардиомиопатии (ARVC-2), характеризующейся полиморфной желудочковой тахикардией, вызванной физической нагрузкой, которая, по-видимому, не имеет реентерабельного механизма, возникающего при отсутствии значительных структурных аномалий. У этих пациентов не развиваются характерные признаки аритмогенной дисплазии правого желудочка (АДПЖ) на ЭКГ в 12 отведениях и на сигнал-усредненной ЭКГ; глобальная функция ПЖ остается неизменной. ARVC-2 демонстрирует более близкое сходство с наследственной КПЖТ как по этиологии, так и по фенотипу; его включение в общий термин «аритмогенная кардиомиопатия правого желудочка» остается спорным.
Недавно в семье, в которой несколько родственников страдают ИФЖ, были выявлены две разные гетерозиготные мутации в гене RyR2. Эти мутации привели к появлению фенотипа, отличного от классической КПЖТ, связанной с RyR2.
2. Мутации, связанные с кальсеквестрином. CPVT2 — вариант КПЖТ с аутосомно-рецессивным типом наследования, связанный с гомозиготными мутациями в гене CASQ2. Гетерозиготные носители одной мутации CASQ2 обычно здоровы. Считается, что некоторые мутации CASQ2 нарушают синтез CASQ2 и приводят к снижению экспрессии или полному отсутствию CASQ2 в сердце; другие мутации, по-видимому, вызывают экспрессию дефектных белков CASQ2 с аномальной регуляцией клеточного гомеостаза Са2+. Мутации CASQ2 приводят к нарушению контроля RyR2 с помощью люминального Са2+, необходимого для эффективного прекращения высвобождения Са2+ в саркоплазматическом ретикулуме и предотвращения спонтанного высвобождения Са2+ во время диастолы, что приводит к снижению рефрактерности передачи сигналов Са2+ и генерации аритмогенных спонтанных высвобождений Са2+.
3. Мутации, связанные с кальмодулином. Три разных гена (CALM 1-3) в геноме человека кодируют один и тот же белок кальмодулин. Недавние генетические исследования выявили несколько мутаций кальмодулина, связанных с КПЖТ, синдромом удлиненного интервала QT и ИФЖ. Дефектное связывание кальмодулина с RyR2 приводит к нарушению кальмодулином ингибирования функции RyR2 с последующей дисрегуляцией высвобождения Са2+ из саркоплазматического ретикулума.
CPVT4 — вариант КПЖТ с аутосомно-доминантным типом наследования, который вызван мутацией CALM1. Наследственная форма ИЖФ была связана с мутациями гена CALM1 с аутосомно-доминантным механизмом передачи. Кроме того, «настоящие мутации» или мутации de novo в генах CALM1, CALM2 или CALM3 нарушают Са2+-зависимую инактивацию Са2+-канала L-типа в сердце (Cav1.2), что приводит к увеличению ICaL, удлинению фазы плато потенциала действия и к фенотипу сидрома удлиненного итвервала QT (LQT14-16).
4. Мутации, связанные с триадином. CPVT5 — аутосомно-рецессивное заболевание, вызванное мутациями гена TRDN (кодирующего триадин). Кроме того, гомозиготные или сложные гетерозиготные мутации с потерей функции в TRDN, вероятно, уменьшают опосредованную триадином отрицательную обратную связь по Са2+-каналу L-типа, что приводит к увеличению ICaL, увеличению продолжительности потенциала действия и рецессивно наследуемому фенотипу LQTS (LQT17). Внутриклеточная перегрузка Са2+ и увеличение спонтанного высвобождения Са2+ из саркоплазматического ретикулума, особенно в условиях β-адренергической стимуляции, приводят к желудочковым аритмиям.
LQT17 характеризуется обширными инверсиями зубца Т в прекордиальных отведениях с V1 по V4, с постоянным или временным удлинением интервала QT, остановкой сердца, вызванной физической нагрузкой, в раннем детстве (от 2 до 6 лет) и слабостью проксимальных скелетных мышц от легкой степени до умеренной. Поскольку все TRDN-нулевые пациенты демонстрируют поразительно похожий фенотип, было предложено использовать либо TRDN-синдром ("Triadin knockout syndrome"), либо TRDN-опосредованный аутосомно-рецессивный синдром удлиненного интервала QT, а не LQT17.
е) Приобретенные заболевания. Дисфункция RyR2 является ключевым фактором, приводящим к аритмиям при сердечной недостаточности. Хроническая β-адренергическая стимуляция приводит к чрезмерному ПКА-фосфорилированию RyR2. Этот процесс вызывает диссоциацию стабилизирующего канал белка кальстабина и приводит к диастолической утечке Са2+ из саркоплазматического ретикулума и генерации спонтанных потоков Са2+, которые могут поддерживаться, несмотря на снижение градиента Са2+, что лежит в основе вызванных поздней постдеполяризацией аритмий при сердечной недостаточности.
Важно отметить, что при отравлении дигиталисом (гликозид наперстянки), аномальное поведение RyR2, приводящее к спонтанному высвобождению Са2+ и к поздней постдеполяризации, является вторичным по отношению к повышению содержания Са2+ в саркоплазматическом ретикулуме. С другой стороны, при КПЖТ самопроизвольное высвобождение Са2+ и поздняя постдеполяризация могут происходить без перегрузки Са2+. Мутации в RyR2 или CASQ2 приводят к дефекту Са2+, сигнализируя о снижении порога для Са2+ саркоплазматического ретикулума для спонтанного высвобождения Са2+ ниже нормального базового уровня («воспринимаемая» перегрузка Са2+).
Подобный механизм может лежать в основе вызванных аритмий при других заболеваниях, включая сердечную недостаточность и ишемическую болезнь сердца, при которых регуляция высвобождения Са2+ в саркоплазматическом ретикулуме нарушена из-за приобретенных дефектов компонентов комплекса каналов RyR2.