Главная функция сердца — перекачивать достаточное количество крови, чтобы обеспечить собственные метаболические потребности и поддерживать метаболизм других органов. Неспособность сердца выполнять свою функцию даже в течение нескольких минут приводит к смерти. Сердце осуществляет свою физиологическую роль с помощью различных функций — электрической активности, сократительной функции, сохранения нормальной структуры, что обеспечивает кровообращение в различных органах.
а) Развитие сердца. У эмбриона человека формирование однокамерного сердца, имеющего вид прямой, практически вертикально расположенной сердечной трубки, происходит на 21-23-й день беременности. Петля сердечной трубки и трабекулы желудочка образуются на 26-й день беременности (рис. 1). Через 6 нед эмбриональное межжелудочковое сообщение закрывается, после чего начинается рост, ремоделирование стенок желудочков в первом триместре.
Рисунок 1. Изменение формы сердечной трубки во время эмбриогенеза. Первичные примитивные выносящие тракты трансформируются в легочную артерию и аорту. Левое и правое предсердия наряду с легочными венами, верхней и нижней полой веной возникают из первичных (примитивных) приносящих трактов. Сердечная луковица и общий желудочек трансформируются в левый и правый желудочки
К концу 7-й нед беременности развитие сердца практически завершено, хотя сердце продолжает увеличиваться в размерах в течение всего срока развития плода.
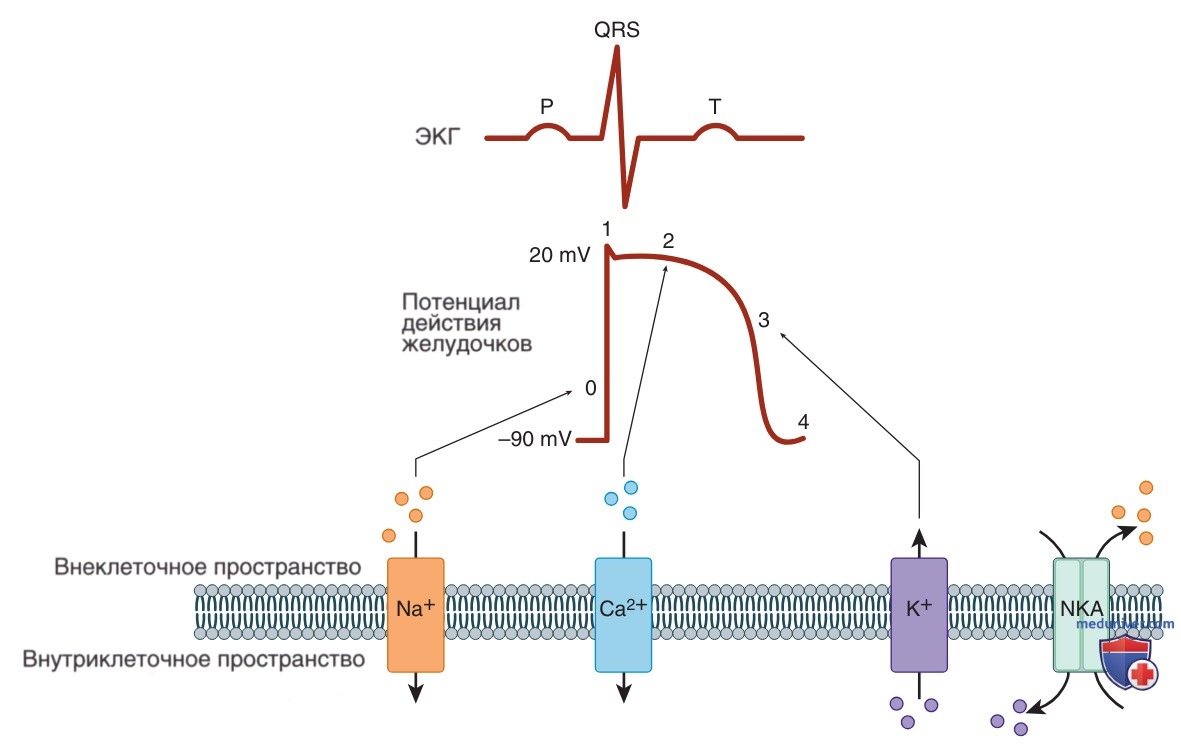
б) Клетки проводящей системы сердца. Сердце — мышечный насос, деятельность которого регулируется электрическими импульсами, поступающими из специализированных клеток в проводящей системе. Молекулярная основа электрической активности сердца — активация специфических ионных каналов (рис. 2). Координированная активация и деактивация ионных каналов сердца регулирует возникновение мембранного потенциала клеток сердца, что приводит к возникновению определенной последовательности, когда фаза деполяризации сменяется фазой реполяризации.
Рисунок 2. Потенциал действия клеток сердца и ионные каналы. Сокращение миокарда начинается, когда открываются натриевые каналы, положительно заряженные ионы натрия попадают в клетки и вызывают деполяризацию мембраны (фаза 0). Во время фаз 1,2 и 3 ионы кальция попадают в клетку через кальциевые каналы L-типа, а калий выходит из клетки через потенциал-зависимые калиевые каналы. Эти три фазы соответствуют сокращению миокарда, что на поверхностной электрокардиограмме отражается комплексом QRS. Натрий-калиевая аденозинтрифосфоназа помогает вернуть систему в состояние покоя
Эта электрическая активность, которую можно зарегистрировать на поверхности тела в виде ЭКГ, известна как потенциал действия, и она отвечает за активацию сокращения сердечной мышцы. При обычной ЧСС 70 ударов в минуту сердце сокращается 100 тыс р/сут, или 37 млн раз в год, что соответствует 3 млрд сокращений в течение жизни продолжительностью 80 лет.
Неспособность сигнала распространяться по всему сердцу (например, блокада сердца) или развитие аритмии (брадикардия/тахикардия) способны привести к смерти. Исследования показывают, что аритмии могут быть вызваны изменением концентрации кальция внутри кардиомиоцитов (феномен «утечки»), что позволяет рассматривать это состояние как возможную терапевтическую мишень для нового поколения антиаритмических ЛП.
в) Ионные каналы. Натриевые, калиевые, кальциевые каналы, определяющие электрическую активность сердца, открываются и закрываются по определенной схеме, которая формирует потенциал действия сердца. Электрическая регуляция функций сердца, которая характеризуется разностью концентраций ионов внутри и снаружи клеток сердечной мышцы, определяет пять фаз потенциала действия. Потенциал действия инициируется, когда открытие натриевых каналов приводит к быстрому входящему току натрия (фаза 0) по градиенту его концентрации (145 ммоль снаружи кардиомиоцитов, =10 ммоль внутри).
После кратковременной ранней реполяризации, вызванной активацией калиевых каналов (фаза 1), быстрый входящий ток натрия вызывает деполяризацию клеток, активируя кальциевые каналы, которые обеспечивают входящий ток кальция (фаза 2) по градиенту концентрации (3 ммоль снаружи, 100 нмоль внутри). Входящий ток кальция вызывает электромеханическое сопряжение, которое обеспечивает сокращение кардиомиоцитов. Затем открываются калиевые каналы и вызывают реполяризацию (фаза 3), когда калий выходит из клетки по градиенту концентрации (=4 ммоль снаружи, =135 ммоль внутри).
Мембранный потенциал возвращается к значению покоя около -90 мВ (фаза 4). Установлено, что наследственные формы желудочковых и предсердных аритмий связаны с мутациями в генах, кодирующих ионные каналы.
г) Проводящая система. Специализированные пейсмейкерные клетки в синоатриальном узле (рис. 3) имеют незначительно повышенный (менее отрицательный) потенциал покоя и постепенно деполяризуются в течение 5-й фазы благодаря активности калиевых, кальциевых каналов и управляемых циклическими нуклеотидами гиперполяризационно-активируемых каналов, которые отвечают за небольшой входящий (деполяризующий) ток. В здоровом сердце пейсмейкерные клетки деполяризуются первыми, запускающие последующую деполяризацию клеток в специализированных проводящих волокнах, которые распространяют электрический сигнал по всей сердечной мышце в равномерной и интегрированной форме.
Рисунок 3. Анатомия сердца. Сердце состоит из электрических и структурных компонентов. Электрический импульс, который вызывает сокращение сердца, возникает в синоатриальном узле и стремительно проводится через предсердия по специализированным проводящим путям. Импульсы поступают в атриовентрикулярный узел, где после короткой паузы быстро проводятся на желудочки по пучку Гиса, который состоит из специализированных клеток Пуркинье. Во время диастолы кровь поступает из предсердий в желудочки через трикуспидальный и митральный клапаны. Во время систолы кровь из желудочков поступает в легочную артерию через клапан легочной артерии (пульмональный клапан) и в аорту через аортальный клапан
Электрическая активация (деполяризация), распространяющаяся по предсердиям к АВ узлу, отражается на ЭКГ в виде зубца Р. Замедление проведения в АВ узле — причина изменения интервала PR на ЭКГ. После прохождения через АВ узел, деполяризующий сигнал, достигает пучка Гиса, где скорость проведения очень высока. Пучок Гиса делится на правую и левую ветви, которые проводят деполяризующие сигналы в желудочки и формируют комплекс QRS на ЭКГ. Реполяризация на ЭКГ представлена сегментом ST, зубцами Т, U.
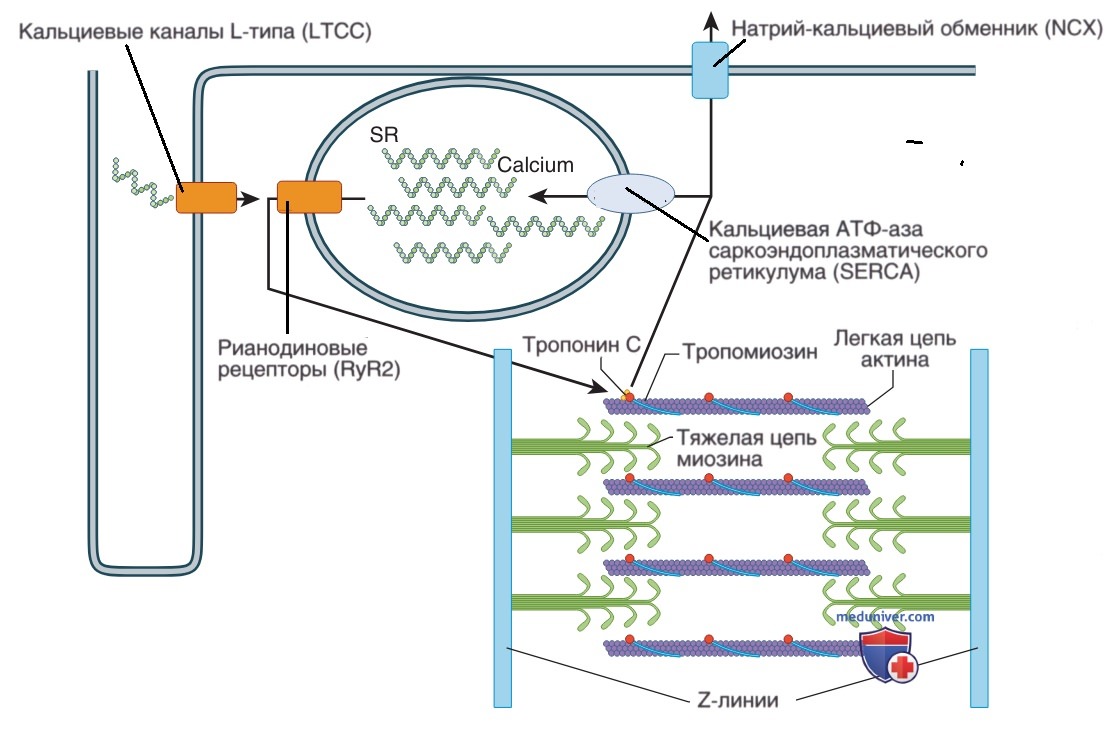
д) Сократительные клетки. Сердечная мышца состоит из миллиардов отдельных клеток, называемых кардиомиоцитами, которые содержат комплексный аппарат, необходимый для координированного сокращения, обеспечивающего насосную функцию сердца. Каждый кардиомиоцит связан с соседними через специализированные соединения, которые позволяют им работать как единая сократительная единица. Кардиомиоциты содержат специализированные сократительные белки, находящиеся в строго упорядоченных единицах, называемых саркомерами, определяющие характерную полосатую исчерченность мышцы (рис. 4).
Рисунок 4. Саркомер и электромеханическое сопряжение. Деполяризация клеток мембраны приводит к поступлению кальция внутрь клетки через кальциевые каналы L-типа, которые активируют рианодиновые рецепторы, высвобождая большие запасы кальция из саркоплазматического ретикулума. Кальций связывается с тропонином С и вызывает конформационное изменение тропомиозина, которое позволяет головкам миозина взаимодействовать с нитями актина, вызывая сокращение. Во время релаксации кальций закачивается обратно в саркоплазматический ретикулум через кальциевую аденозинтрифосфотазу саркоэндоплазматического ретикулума и выходит из клетки через натрий-кальциевый канал
Таким образом, подобно скелетной мышце, сердечная мышца называется поперечнополосатой, в отличие от гладких мышц, находящихся в стенках сосудов, мочевом пузыре, матке, желудке. Кардиомиоциты содержат митохондрии, обеспечивающие их энергией (АТФ), необходимой для осуществления сердечных сокращений (систола) и расслаблений (диастола) на протяжении всей жизни.
1. Ультраструктура. Основная единица сократительной системы сердца — саркомер, анатомически определяющийся как расстояние между двумя Z-линиями, фиксирующими тонкие нити актина, тропомиозина, тропонина. Тонкие нити входят в промежутки между толстыми нитями (состоящими из миозина и титина) в зависимости от концентрации кальция, что приводит к уменьшению длины саркомера. Установлено, что мутации в генах, кодирующих сократительные белки, связаны с развитием дилатационной и гипертрофической кардиомиопатии. Сократительные белки окружены заполненной кальцием сетью, называемой саркоплазматическим ретикулумом.
Саркоплазматический ретикулум образует специализированные связи с поперечными канальцами (Т-трубочками), которые представляют собой инвагинации плазматической мембраны, содержащие потенциал-зависимые кальциевые каналы. Когда мышца активируется при деполяризации ее мембраны, этот электрический сигнал через поперечные канальцы проходит глубоко в мышцу. Внутри мышцы электрический деполяризующий сигнал активирует потенциал-зависимые каналы, которые открываются, позволяя небольшому количеству кальция проникать в мышечные клетки. Этот входящий ток кальция, в свою очередь, активирует рианодиновые рецепторы 2-го типа (RyR2) — каналы высвобождения кальция в саркоплазматическом ретикулуме.
Каналы RyR2 открываются, выделяя такое количество кальция из саркоплазматического ретикулума, чтобы концентрация кальция в миоплазме возросла ~в 10 раз. В результате кальций связывается с тропонином С в тонких нитях, вызывая конформационные изменения, которые обеспечивают перекрестное связывание между актином и миозином, что приводит к вхождению одних нитей в промежутки между другими, укорочению саркомера и сокращению мышцы. Гидролиз АТФ обеспечивает синтез энергии, необходимой для взаимодействия актина и миозина. Преобразование электрической энергии (деполяризация клеточной мембраны) в механическую называется электромеханическим сопряжением.
Расслабление сердечной мышцы происходит вследствие поступления кальция обратно в саркоплазматический ретикулум посредством функционирования АТФ-азы саркоэндоплазматического ретикулума.
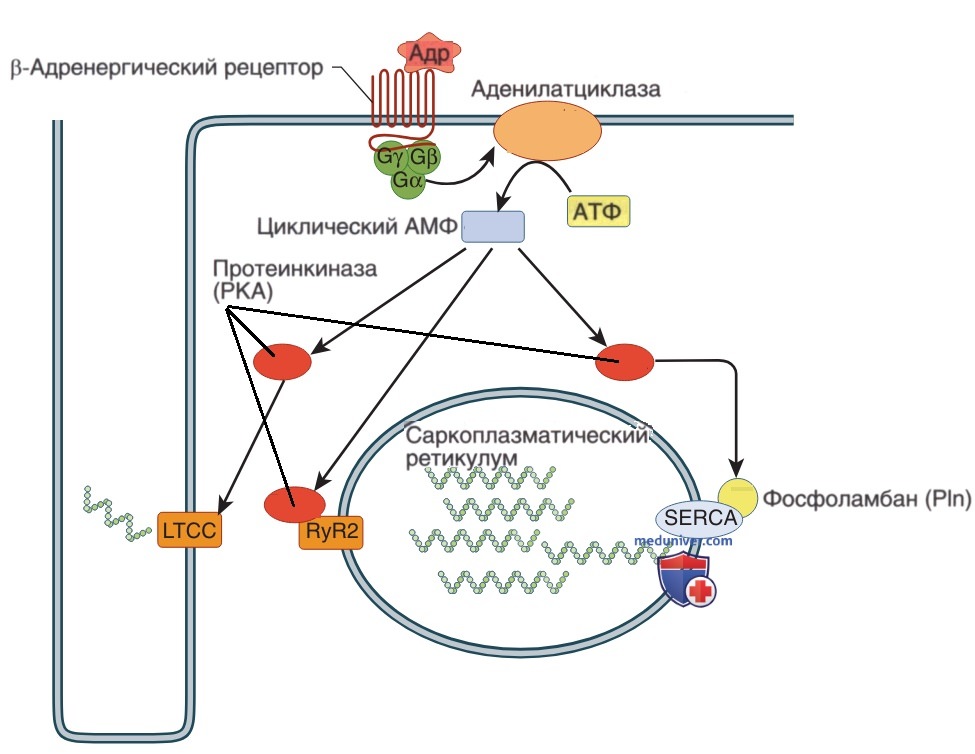
2. Сигналы, регулирующие сокращение. Сила сокращения может увеличиваться при стрессе за счет активации β-адренергических рецепторов, вследствие чего повышаются количество высвобождаемого кальция, скорость захвата кальция саркоплазматическим ретикулумом (рис. 5). β-агонисты (например, адреналин/норадреналин) связываются с β-адренергическими рецепторами, активируя аденилатциклазу, которая генерирует циклический АМФ, активирует протеинкиназу А. Протеинкиназа А фосфорилирует фосфоламбан, потенциал-зависимый кальциевый канал, рианодиновый рецептор или канал высвобождения кальция и регуляторные белки саркомера, в результате чего повышается высвобождение кальция из саркоплазматического ретикулума, увеличивается сократимость сердца.
Рисунок 5. Передача сигналов в кардиомиоците. Связывание катехоламинов (адреналин, норадреналин) с p-адренергическим рецептором, связанным с G-белком, приводит к активации аденилатциклазы, которая превращает аденозинтрифосфорную кислоту в циклический аденозинмо-нофосфорную кислоту. Циклический аденозинмонофосфорная кислота активирует протеинкиназу А, которая фосфорилирует несколько белков, отвечающих за транспорт кальция, включая кальциевые каналы L-типа, рианодиновые рецепторы и фосфоламбан, что приводит к общему увеличению их активности и повышению сократимости
3. Другие клетки. Несмотря на то что сердце — мышечный насос, 60-70% клеток в его составе приходится на сердечные фибробласты, а не кардиомиоциты. Эти фибробласты формируют важные компоненты внеклеточного матрикса, которые определяют структуру сердца. Коллаген, вырабатываемый сердечными фибробластами, — основной компонент внеклеточного матрикса, образующий сеть, окружающую кардиомиоциты, и создает ткани, способные противостоять нагрузке от постоянных сокращений. При определенных патологических состояниях, включая АГ, ИМ, СН, фибробласты сердца реагируют на нагрузку, вырабатывая избыточное количество внеклеточного матрикса, приводя к фиброзу, который может нарушать работу сердца.
Некоторые ЛП, широко применяемые в клинической практике для лечения заболеваний сердца — гиполипидемические ЛС (статины, фибраты), антигипертензивные (иАПФ, β-адреноблокаторы, блокаторы рецепторов ангиотензина), — оказывают положительное воздействие на фибробласты сердца, уменьшая степень фиброза, приводя к благоприятному «обратному» ремоделированию сердца. Резидентные линии фибробластов опосредуют фиброз, вызванный перегрузкой сердца.
е) Анатомия сердца. Основная насосная камера сердца — ЛЖ, имеющий толстую стенку, состоящий из миллиардов кардиомиоцитов, связанных друг с другом щелевыми контактами. ПЖ — тонкостенная камера сердца, отделенная от ЛЖ МЖП. Над желудочками находятся правое и левое предсердия — тонкостенные камеры сердца, в которые под низким давлением поступает венозная кровь; они отделены от желудочков трикуспидальным клапаном с правой стороны и митральным клапаном — с левой. Эти клапаны прикреплены сухожильными хордами к папиллярным мышцам, отходящим от стенок желудочков. Градиент давления между предсердиями и желудочками открывает АВ-клапаны.
Папиллярные мышцы помогают закрепить положение створок клапана, предотвращают регургитацию крови во время сокращения желудочков. Аортальный и пульмональный клапаны отделяют ЛЖ и ПЖ от магистральных артерий, обеспечивая кровоток из желудочков.
ж) Коронарный кровоток. Кровь в КА поступает из аорты, устья которых расположены непосредственно над аортальным клапаном, далее КА проходят в эпикарде, окружающем сердце, кровоснабжая сердечную мышцу. Диастолическое АД в восходящей части аорты обеспечивает основной кровоток в нормальных (не стенозированных) КА, когда сердце находится в фазе расслабления (диастолу). Во время систолы коронарный кровоток определяется давлением в полости ЛЖ, которое равно давлению во внутренней части стенки миокарда, где КА сдавливаются во время систолы. Коронарный кровоток происходит в эпикарде во время систолы и диастолы, а в эндокарде — преимущественно во время диастолы.
з) Метаболическая регуляция сердечно-сосудистой системы. Сердечной мышце необходим постоянный коронарный кровоток, чтобы получать О2, другие метаболиты. Повышенное потребление энергии вследствие усиления сократимости, вызванное ↑ системного АД и ЧСС (например, во время ФН), может быть достигнуто только за счет увеличения коронарного кровотока. Сигнальные молекулы, опосредуя увеличение коронарного кровотока до 6 раз по сравнению с исходными значениями этого показателя, включают оксид азота, аденозин, брадикинины, Pg, углекислый газ. Расщепление АТФ обеспечивает поступление аденозина, тогда как оксид азота образуется под действием синтетаз оксида азота, метаболизирующих аминокислоту L-аргинин.
Механизмы ауторегуляции, включая вазоконстрикцию в ответ на повышенное давление в просвете и вазодилатацию в ответ на пониженное давление, играют роль в определении кровотока в КА. К метаболическим факторам, вызывающим вазоконстрикцию, относятся эндотелии, серотонин, 5-гидрокситриптамин, тромбоксан, ангиотензин II, β1-адренергическая стимуляция.
Симпатический и парасимпатический отделы ВНС, РААС оказывают выраженное регуляторное влияние на функционирование ССС. Симпатическая НС играет ключевую роль в реакции на стресс (например, реакция «сражайся/беги») за счет ↑ ЧСС, сократимости миокарда, ↓ тонуса сосудов. Регуляция функционирования ССС симпатической НС опосредуется норадреналином, высвобождающимся в нервных окончаниях, и адреналином, секретирующимся надпочечниками. β-адренергическая передача сигналов обеспечивается адреналином, увеличивающим ЧСС, расширяющим магистральные артерии, приводя к ↓ постнагрузки, что увеличивает сердечный выброс.
Синоатриальный и АВ-узлы регулируются парасимпатической иннервацией, которая за счет высвобождения ацетилхолина замедляет частоту генерации импульсов, скорость проведения через АВ-узел. Вазоконстрикция венозных сосудов опосредуется симпатической НС, которая ограничивает потерю жидкости и крови после травмы.
РААС совместно с симпатической НС регулирует уровень АД, периферическую вазоконстрикцию, сократительную способность. При СН симпатическая НС и РААС постоянно активированы, и формирующееся в результате этого дезадаптивное ремоделирование ССС способствует прогрессированию СН. Ухудшение перфузии почек, ↓ доставки натрия к плотному пятну (macula densa) или усиление симпатической активности приводит к высвобождению ренина из клеток плотного пятна в юкстагломерулярном аппарате почки.
Ренин стимулирует выработку ангиотензина II, мощного вазоконстриктора периферических, КА. В свою очередь, ангиотензин II вызывает высвобождение из надпочечников альдостерона, задерживающего натрий. Совокупность этих изменений приводит к задержке натрия, повышению АД.