а) Реактивные соединения кислорода и азота. Макрофаги, нейтрофилы и другие фагоцитирующие клетки генерируют токсические промежуточные продукты реактивного кислорода и промежуточные продукты реактивного азота, способные непосредственно убивать патогены.
Реактивный кислород и реактивный азот служат в качестве молекул передачи сигналов, регулирующих экспрессию генов.
Такие молекулы оказывают повреждающие действия на нормальные ткани, разрушая ДНК, окисляют мембранные липиды и нитрозилированные белки.
Выброс реактивных промежуточных продуктов может быть инициирован микробными продуктами, действием провоспалительных цитокинов и связыванием рецепторов к Fc-фрагментам IgG → транслокация некоторых цитозольных белков, включая Rac2 и гуанозин трифосфатазу семейства Rho, к мембранно-связанному комплексу, переносящему цитохром С, с последующей активацией оксидазы НАДФ.
Реакция, катализированная оксидазой НАДФ, → выработке супероксида → увеличивает количество перекиси водорода, гидроксил-радикалов и супероксид-анионов, хлорноватистой кислоты и хлораминов.
Реактивный кислород принимает непосредственное участие в возникновении хронических заболеваний. При окислении липидов образуются альдегиды, которые замещают остатки лизина в алипопротеине В-100.
Такой измененный фрагмент молекулы образует связь с Toll-подобным рецептором 2 для запуска выработки цитокинов или поглощается макрофагами, участвуя в выработке пенистых клеток и жировых прожилок (первичных поражений при атеросклерозе).
Впоследствии измененные эпитопы поврежденных собственных белков могут быть представлены Т-клеткам для запуска реакций адаптивного иммунного ответа, ↑ воспалительное поражение сосудов.
Синтазы оксида азота преобразуют 1-аргинин и молекулярный кислород в 1-цитруллин и оксид азота. Существуют три изоформы синтазы оксида азота: нейронная синтаза оксида азота (ncNOS или NOS1) и синтаза оксида азота эндотелиоцитов (ecNOS или NOS3) экспрессируются постоянно, синтаза оксида азота макрофагов (macNOS, iNOS или NOS2) индуцируется провоспалительными цитокинами, продуктами микроорганизмов, низким парциальным напряжением кислорода и низким уровнем pH.
б) Протеазы и повреждение матрикса. Выработка ферментов, расщепляющих внеклеточный матрикс, регулирует процессы изменения тканей при воспалении. Перестройка внеклеточного матрикса → ремоделированию поврежденных тканей, высвобождает факторы образования новых компонентов внеклеточного матрикса и цитокинов, подготавливая ткани к образованию новых кровеносных сосудов, изменению условий микроокружения для обеспечения адгезии и удержания в тканях вновь привлеченных из периферической крови клеток.
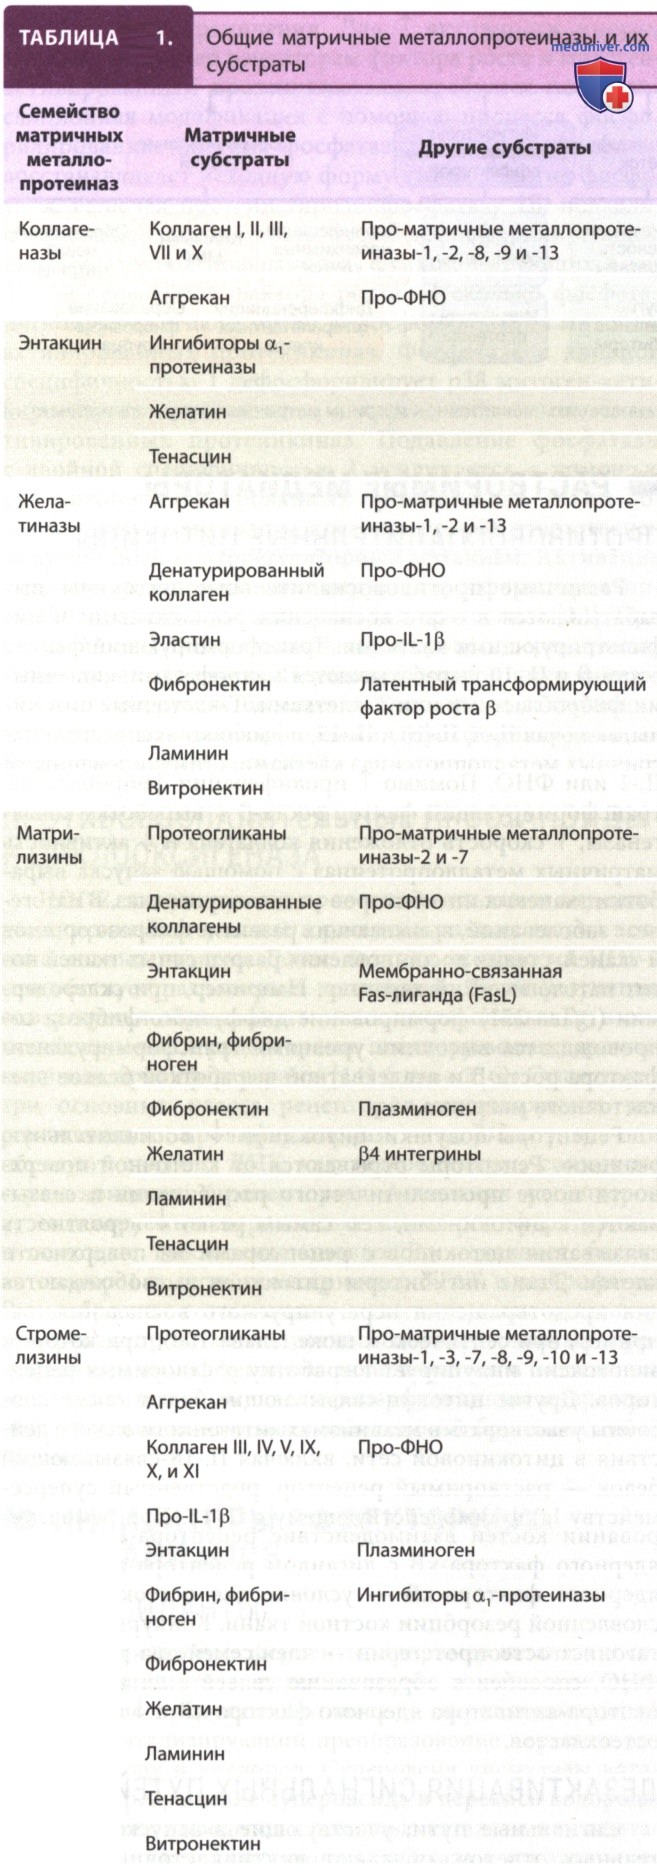
Матричные металлопротеиназы — семейство, содержащее >20 внеклеточных эндопептидаз, принимающих участие в расщеплении и ремоделировании внеклеточного матрикса (табл. 1). Изначально они вырабатываются как проферменты, для их активации необходим ограниченный протеолиз или частичная денатурация в каталитических центрах.
Активность матричных металлопротеиназ в расщеплении белков внеклеточного мактрикса зависит от ионов металлов (цинк/суперсемейство метцинзина). Матричные металлопротеиназы расщепляют молекулы клеточной поверхности и другие внематричные белки, тем самым регулируя поведение клеток; изменяют рост клеток путем расщепления матричных белков, связанных факторами роста (фактор роста фибробластов и ФНО-β).
Матричный протеолиз → выбросу факторов роста, делая их доступными для взаимодействия с соответствующими рецепторами клеточной поверхности. Матричные металлопротеиназы также непосредственно расщепляют и активируют факторы роста и влияют на миграцию клеток с помощью изменения структуры внеклеточного матрикса или клеточных рецепторов.