1. Структура антиген-специфичных рецепторов. Врожденный иммунитет распознает структурные паттерны, которые являются общими в мире микроорганизмов, а адаптивная иммунная система предназначена для реагирования на все разнообразие АГн. Такая цель достигается с помощью двух основных типов АГн-распознающих рецепторов: Ig и Т-клеточные рецепторы. Ig экспрессируются как рецепторы на клеточной поверхности В-лимфоцитов или секретируются, при этом они характеризуются одинаковой специфичностью для АГн.
Молекулы Ig распознают конформационные структуры, сформированные третичной конфигурацией белков и, в некоторых случаях, углеводами и липидами.
В отличие от этого, α/β Т-клеточные рецепторы, наиболее распространенный класс Т-клеточных рецепторов, специфично связываются с эпитопами, представляющими собой небольшие линейные пептиды, встроенные в молекулы МНС на поверхности АГн-представляющих клеток.
- Иммуноглобулины. Молекула Ig состоит из двух идентичных тяжелых цепей и двух идентичных легких цепей, ковалентно связанных дисульфидными связями. Нитро (N)-терминальные домены каждой цепи различаются и представляют собой АГн-распознающую структуру. Каждая молекула Ig имеет два АГн-связывающих сайта с идентичной специфичностью. Карбокси (С)-терминальные домены тяжелых и легких цепей формируют константную часть молекулы, определяющую подклассы молекул Ig (κ или λ для легких цепей; IgM, IgA, IgD, IgE или IgG для тяжелых цепей). Для IgG и IgA выделены дополнительные подклассы. Константный фрагмент Ig включает Fc-область. Fc-области могут осуществлять полимеризацию (IgA) или пентамеризацию (IgM) в присутствии J (объединяющей) цепи. Fc области также являются лигандами для FcRs на клетках врожденного иммунитета.
- Т-клеточные рецепторы. Т-клеточные рецепторы являются димерами α-цепей и β-цепей или γ-цепей и δ-цепей, каждая из которых содержит три комплемент-распознающих места связывания в N-терминальном домене, определяющие специфичность Т-клеточных рецепторов.
α/β Т-клеточные рецепторы распознают фрагменты пептида в контексте молекул МНС. В ряде случаев определенные фрагменты α/β Т-клеточные рецепторы связывают гликолипидные АГн, например микробактерий.
γ/δ Т-клеточные рецепторы более многообразны и могут распознавать пептиды или определенные гликолипидные АГн.
- Специфичность молекул иммуноглобулинов и Т-клеточных рецепторов. Репертуары, или количество специфичности, АТл и Т-клеточные рецепторы очень разнообразны, и, по разным оценкам, в организме человека их насчитывается до 1011 или выше (для молекул Ig) и 1018 комбинаций для Т-клеточных рецепторов. Такое огромное разнообразие отображает предупреждающий характер адаптивных иммунных рецепторов; такое разнообразие не может быть генетически закодировано в отличие от рецепторов врожденного иммунитета. Имеется ~400 зародышевых генов, которые подвергаются процессам перестройки в центральных органах иммунитета.
Тяжелые цепи молекулы Ig формируются в результате перестройки четырех рядов зародышевых генов — вариабельного, дополнительного, объединяющего и постоянного Т-клеточного рецептора β-цепи и δ-цепи, также формируются путем рекомбинации генов вариабельной, дополнительной, объединяющей и постоянной цепи генов Т-клеточных рецепторов. В генах, кодирующих легкие цепи молекул Ig и γ- и δ-цепи, Т-клеточные рецепторы, отсутствует дополнительный сегмент, и они состоят из трех сегментов гена. В процессе перестройки генов, кодирующих молекулы Ig или Т-клеточных рецепторов, перестройка генов происходит в ядрах пре-В-лимфоцитов и тимоцитов. Благодаря нескольким различным механизмам в процессе рекомбинации генов, кодирующих разные участки молекул Ig и Т-клеточных рецепторов, создается огромное разнообразие рецепторов.
Во-первых, геном содержит различные формы сегментов гена; каждый рецептор или АТл использует разные комбинации таких сегментов гена. Во-вторых, процесс рекомбинации и восстановления является случайным, что приводит к созданию нуклеотидных вариаций в местах соединения вариабельного и дополнительного, дополнительного и соединяющего, вариабельного и соединяющего сегментов. Такие неточности приводят к сдвигам в последовательности оснований ДНК и к совершенно другим аминокислотным последовательностям в белке. И, наконец, в соединяющей области ферментами, терминальными дезоксирибонуклеотидилтрансферазами, могут быть вставлены случайные нуклеотиды.
После создания Т-клеточных рецепторов эти рецепторы остаются неизменными. Это правило не распространяется на Ig, которые подвергаются модификации. Модификация Ig включает: 1) замену всей вариабельной области или редактирование рецептора, обычно протекающее в костном мозге во время образования Ig — рецепторов, которые самопроизвольно связали собственные АГн на этапе начальной рекомбинации сегментов гена; 2) изменение класса Ig, при котором вариабельный-дополнительный-соединяющий сегменты объединяются с разными константными областями генов (изменение изотипа); или 3) соматические гипермутации, при которых АГн-распознающие области подвергаются мутациям во время иммунного ответа для повышения аффинности. Последние два события происходят во вторичных лимфоидных тканях, таких как селезенка, ЛУ, лимфоидная ткань, ассоциированная со слизистыми, где развивается иммунный ответ на АГн.
2. Процессинг антигенов. Т-клетки, несущие α/β Т-клеточные рецепторы, распознают пептидные фрагменты в контексте молекул МНС I и II класса в процессе представления АГн. Два класса молекул МНС распознаются двумя разными субпопуляциями Т-лимфоцитов. CD4+ Т-клетки распознают АГн-пептиды, встроенные в молекулы МНС II класса, a CD8+ Т-клетки связывают пептиды, встроенные в молекулы МНС I класса. Обычно молекулы МНС II экспрессируются только профессиональными АГн-представляющими клетками: дендритными, моноцитами, макрофагами и В-лимфоцитами. Молекулы МНС I класса экспрессируются практически всеми ядросодержащими клетками, что способствует распознанию CD8+ Т-лимфоцитов АГн вирусов, поражающих любые ткани организма. Пептиды, представляемые в молекулах МНС II класса, обычно образуются из захваченных и переработанных протеиназами (особенно катепсином) в эндосомах внеклеточных патогенов.
Однако иногда с помощью молекул МНС II класса также представляются внутриклеточные или мембранные белки.
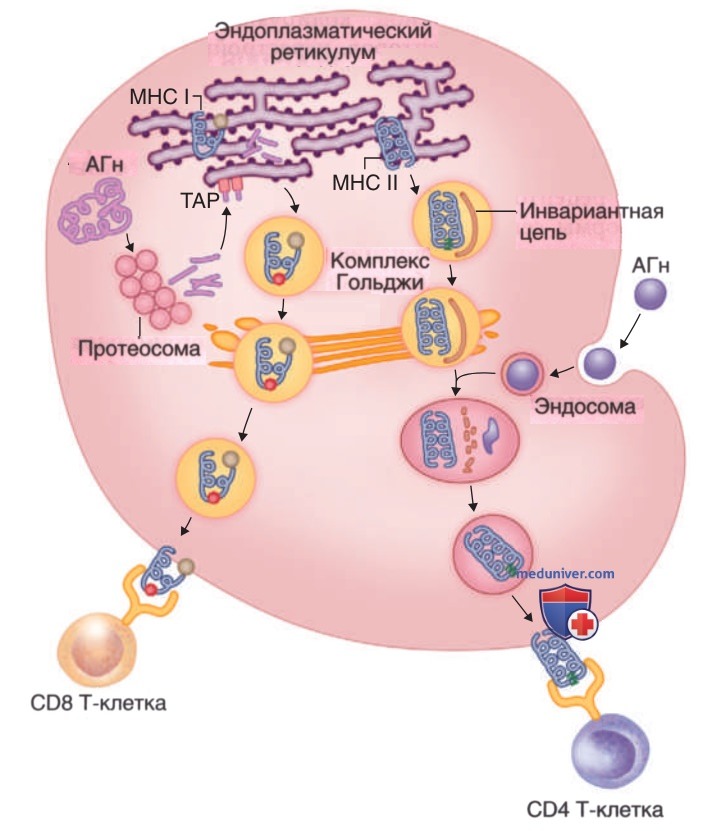
Молекулы МНС II класса объединяются в эндоплазматический ретикулум совместно с белком, который называется инвариантной цепью (рис. 1). Молекулы транспортируются в эндосому, где инвариантная цепь удаляется из пептид-связывающей щели, что делает щель доступной для пептидов, полученных из белков патогенов. Молекулы МНС II класса, стабилизированные пептидами из 10-30 аминокислот, ко-экспрессируются на клеточной поверхности, где они распознаются CD4+ Т-лимфоцитами.
Рисунок 1. Пути процессирования антигенов и доставки молекул МНС. Цитозольные белки расщепляются протеосомой для образования фрагментов пептидов, которые транспортируются в эндоплазматический ретикулум специальными транспортерами пептидов (ТАР). После того как пептиды связываются с молекулами МНС I, комплексы и пептид покидают эндоплазматический ретикулум и направляются на клеточную поверхность, где они формируют лиганды для CD8+ Т-клеточных рецепторов (TCRs). Внеклеточные патогены эндоцитируются. Так как в эндосомах pH постепенно снижается, активируются протеазы, катаболизирующие АГн до фрагментов пептидов. После соединения с везикулами, содержащими молекулы МНС II, антигенные пептиды размещаются в АГн-связывающей борозде. Загруженные комплексы молекул МНС II и пептидов транспортируются на клеточную поверхность, где они распознаются TCRs CD4+ Т-клетками
Пептиды, ассоциированные с МНС I, образуются в цитозоле с помощью протеасомы — цитозольного мультибелкового ферментного комплекса (см. рис. 1), позволяя CD8+ Т-киллерам распознавать вирусные пептиды, синтезированные в инфицированных клетках. Специализированные белки-транспортеры, которые называются транспортерами в процессировании АГн, способствуют транслокации пептидов из цитозольной протеасомы в эндоплазматический ретикулум. Там пептиды связываются с вновь образованными молекулами МНС I и транспортируются на клеточную поверхность, где они распознаются АГн-специфичными CD8+ Т-клетками. Пептиды, ассоциированные с МНС I, также могут присутствовать во внеклеточном окружении и быть представлены Т-клетками с помощью механизма перекрестной презентации.
Это позволяет CD8+ Т-клеткам распознавать чужеродные пептиды, например вирусные, из инфицированных и разрушенных клеток, которые поглощаются миелоидными клетками, а затем презентируются в молекулах МНС I класса.
Характер процессирования АГн определяет последовательность событий в иммунном ответе. В целом внеклеточные АГн попадают в эндосомальный путь и связываются с молекулами МНС II для стимуляции CD4+ Т-клеток. Цитозольные АГн, включая АГн внутриклеточных патогенов, разрушаются и представляются в контексте молекул МНС I для запуска CD8+ Т-клеточных ответов.
б) Клеточные элементы адаптивного иммунитета:
1. Т-лимфоциты:
- Создание Т-лимфоцитов. Тимоциты образуются из гемопоэтических предшественников, мигрирующих в тимус — центральный орган иммунитета, где происходят все последующие этапы созревания Т-клеток (рис. 2). Т-клетки-предшественники экспрессируют два фермента, RAG-рекомбиназу и терминальную дезоксирибонуклеотидилтрансферазу, осуществляющие процесс рекомбинации зародышевых генов Т-клеточных рецепторов. Сначала реорганизуется β-цепь Т-клеточных рецепторов и экспрессируется вместе с предшественником α-цепи.
Рисунок 2. Мутация Т-клеток в вилочковой железе. Предшественники Т-клеточной линии дифференцировки попадают в вилочковую железу и начинают перестраивать свои гены Т-клеточного рецептора (TCR). Незрелые Т-клетки с рецепторами, которые связываются с собственным главным комплексом гистосовместимости (МНС) на кортикальных эпителиальных клетках, получают сигналы для выживания (положительный отбор). На кортикомедуллярном переходе выжившие Т-клетки воспринимают собственные антигены, представленные дендритными клетками и макрофагами. Т-клетки, которые сильно реагируют на собственные антигены, удаляются с помощью апоптоза (отрицательный отбор). Т-клетки, высвобожденные в периферию, мало чувствительны к собственным антигенам и распознают чужеродные антигены в контексте собственного МНС
Сигналы от несозревшего комплекса Т-клеточных рецепторов ингибируют реорганизацию второй аллели β-цепи и индуцируют пролиферацию тимоцита и экспрессию молекул CD4 и CD8, характерных для так называемых дубль-позитивных тимоцитов. Далее после рекомбинации α-цепи Т-клеточных рецепторов образуются созревшие Т-клеточные рецепторы. С этого момента тимоциты проходят через различные этапы дифференциации и селекции в условиях микроокружения, создаваемых эпителием тимуса. Конечным результатом АГн-независимой дифференцировки лимфоцитов в тимусе является формирование Т-лимфоцитов, готовых к миграции во вторичные лимфоидные ткани, моноспецифично распознающих АГн-пептиды.
На ранних этапах тимоциты находятся в кортикальном слое тимуса, где они в основном взаимодействуют с эпителиальными клетками. Затем они мигрируют в мозговое вещество, сталкиваясь с дендритными клетками и макрофагами в кортикомедуллярном переходе.
Клетки стромы тимуса регулируют пролиферацию тимоцитов путем секретирования факторов роста лимфоцитообразования, таких как IL-7. Взаимодействие Т-клеточных рецепторов с молекулами МНС, экспрессированными на эпителиальных клетках, на дендритных клетках или макрофагах, определяет дальнейшую судьбу тимоцитов. Низкоавидное распознавание Т-клеточными рецепторами комплексов пептидов и молекул МНС клетками коры тимуса приводит к положительной селекции. Такое распознавание спасает клетки от апоптоза и способствует выживанию Т-клеток с работоспособными рецепторами, способными распознать молекулы МНС, критичные для активации Т-лимфоцитов при их последующем нахождении в селезенке и ЛУ.
После положительного отбора тимоциты мигрируют в мозговой слой тимуса вилочковой железы для прохождения так называемой отрицательной селекции и уничтожения потенциально аутореактивных Т-клеток.
Тимоциты, экспрессирующие рецепторы, которые не могут взаимодействовать с МНС, погибают в результате апоптоза. Высоко аффинное взаимодействие между Т-клеточными рецепторами и комплексом пептидов и МНС также индуцирует апоптоз Т-клеток. Процесс отрицательной селекции способствует уничтожению Т-клеток со специфичностью к собственным АГн и служит механизмом центральной толерантности ко многим аутоАГн.
По разным оценкам в жестком процессе отбора выживают и выходят на периферию ~1% тимоцитов. Во время отбора Т-клетки продолжают дифференцироваться, в результате чего образуется контакт с белками МНС I и II классов, что способствует стабилизации взаимодействия с Т-клеточными рецепторами, обеспечивая более устойчивый сигнал Т-клеткам. Двойные положительные тимоциты, экспрессирующие CD4+ и CD8+, изначально отключают экспрессирование CD4+, и, если это не оказывает влияния на устойчивость сигнала Т-клеточных рецепторов, по умолчанию клетки будут становиться CD8+-цитотоксическими Т-лимфоцитами. Однако, если потеря CD4+ приводит к потере сигнала Т-клеточных рецепторов, клетка становится CD4+ Т-хелпером.
Такие однопозитивные клетки являются созревшими Т-клетками, готовыми к выходу и миграции через кровообращение во вторичные лимфоидные органы (селезенку, ЛУ и ассоциированные со слизистыми лимфоидные ткани) с последующим стимулированием хемокинами и экспрессией молекул адгезии для миграции в периферические лимфоидные органы и ткани. До момента получения АГн-сигнала, активации и последующего выполнения эффекторных функций Т-лимфоциты рециркулируют по периферическим лимфоидным органам в качестве наивных Т-клеток.
- Стимуляция Т-клеток и вспомогательные молекулы. Активация Т-клеток начинается, когда комплексы Т-клеточных рецепторов распознают антигенные пептиды в контексте соответствующей молекулы на поверхности АГн-представляющей клетки во вторичных лимфоидных органах. Главными АГн-представляющими клетками для активации наивных Т-клеток являются дендритные клетки. Распознавание пептида МНС Т-клеточными рецепторами — первый сигнал для активации Т-клеток, приводит к скоплению рецепторов и фосфорилированию внутриклеточной части комплекса белка CD3, сигнального компонента Т-клеточных рецепторов, рецептор-ассоциированными тирозинкиназами. Такие события передают сигналы ядрам и инициируют активацию Т-клеток.
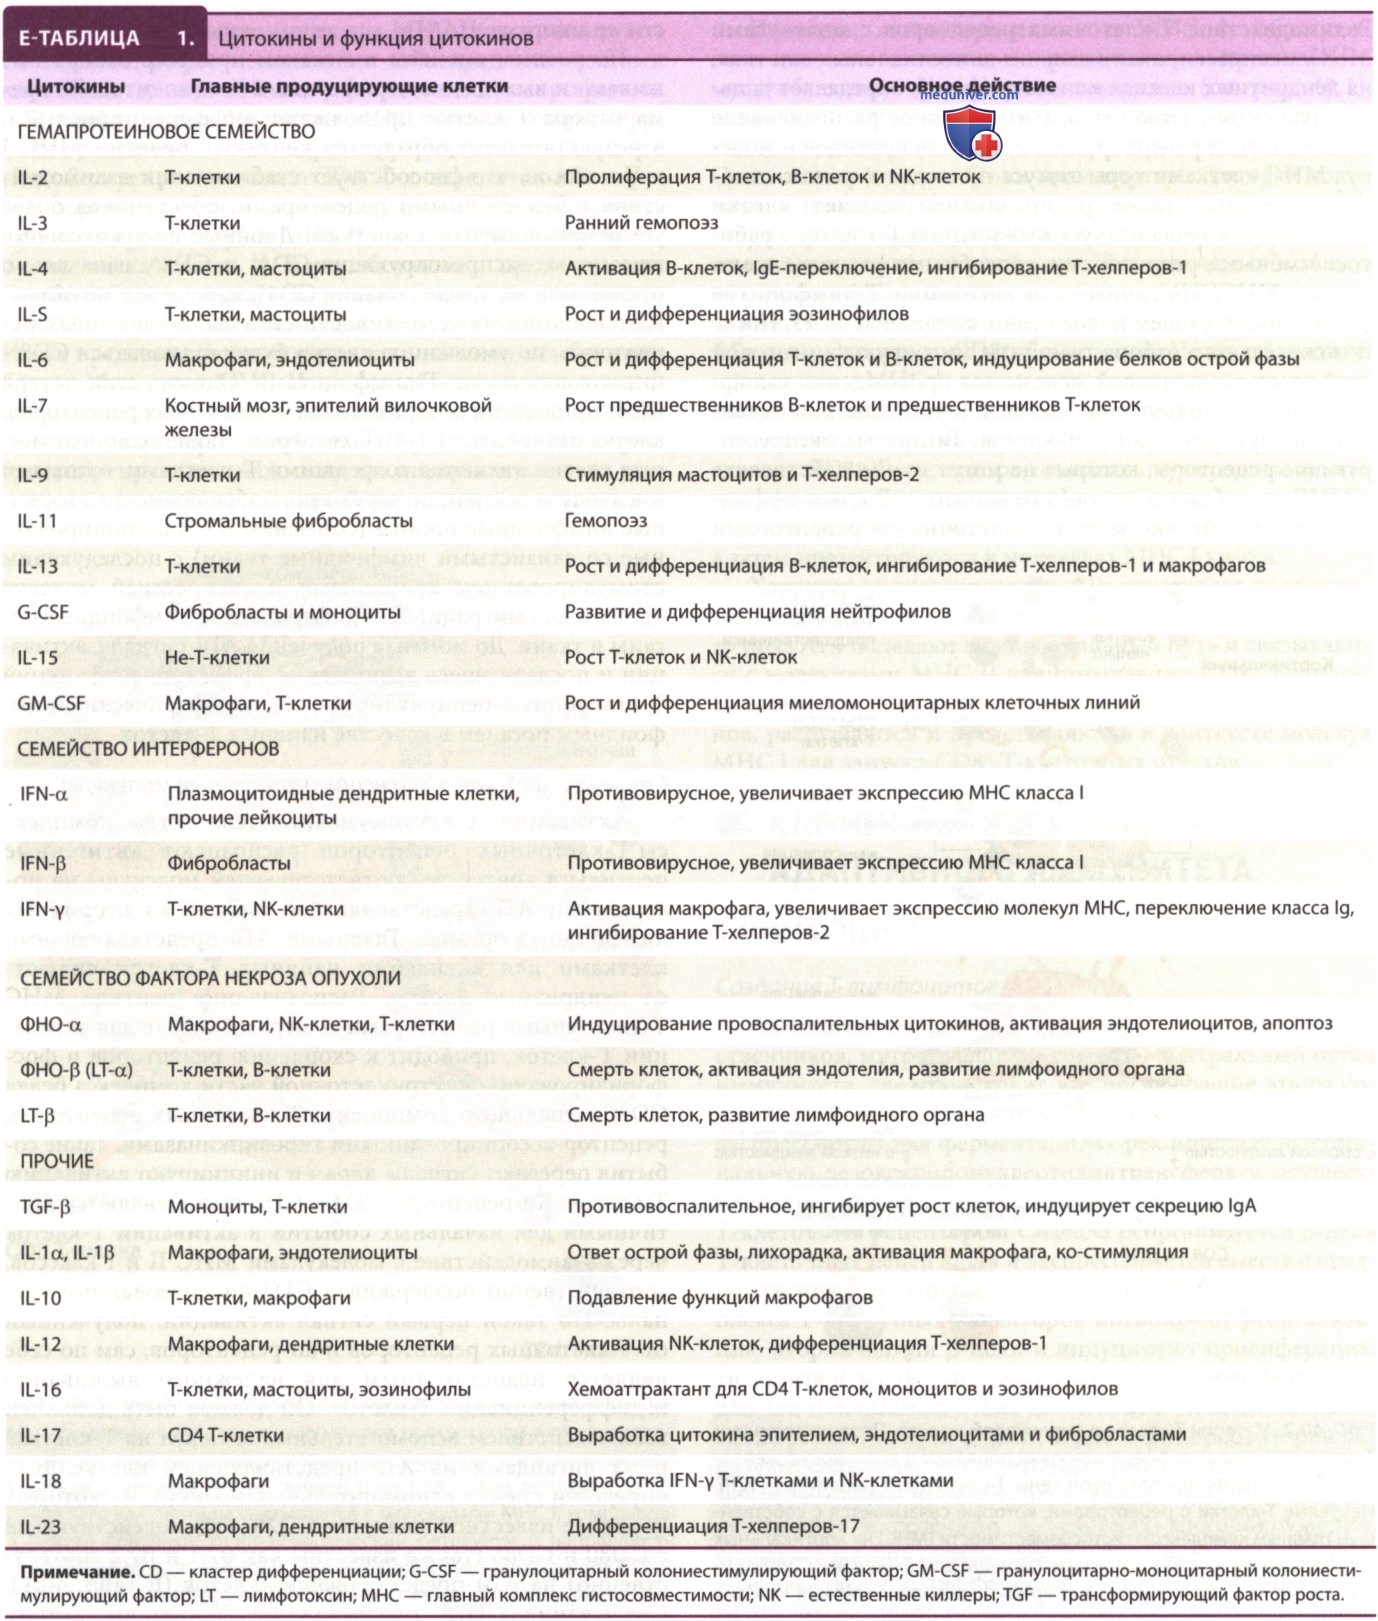
Ко-рецепторы CD4 и CD8 также являются критичными для начальных событий в активации Т-клеток через взаимодействие с молекулами МНС II и I классов, соответственно поддерживая CD3-опосредованные сигналы. Но такой первый сигнал активации, полученный от Т-клеточных рецепторов и ко-рецепторов, сам по себе является недостаточным для надежного выживания и дифференциации Т-клеток. Он должен быть дополнен взаимодействием вспомогательных молекул на Т-клетках и их лигандами на АГн-представляющей клетке. Был определен спектр вспомогательных молекул, из которых наиболее известной является CD28, взаимодействующая с CD80 и CD86 (также известны как В7.1 и В7.2 соответственно) на АГн представляющих клеток (Е-табл. 1). Связывание CD28 предоставляет Т-клеткам второй или ко-стимулирующий сигнал для Т-клеток. Такой второй сигнал, полученный от АГн-представляющих дендритных клеток, гарантирует выживание и распространение Т-клеток.
CD28 опосредованные сигналы являются обязательными для экспрессии многих маркеров активации на соответствующих Т-клетках и, в частности, для секреции IL-2. При отсутствии такого второго сигнала Т-клетки оказываются нечувствительными к сигналам выживания и подвергаются апоптозу. Наконец, адгезивные молекулы (интегрины) стабилизируют внутренние действия между Т-клетками и АГн-представляющими клетками.
Сигналы от Т-клеточных рецепторов приводят к активации многих генов и запускают Т-клеточный цикл. Сигналы передаются в ядра каскадом через вторичные мессенджеры и приводят к ряду событий в цитоплазме. Связывание Т-клеточных рецепторов и конформационные изменения в молекулах CD3 приводят к активации фосфотирозинкиназы и фосфорилированию молекулярных структур Т-клеточных рецепторов и различных молекул-адаптеров. Затем сигналы, опосредованные через Т-клеточные рецепторы, активируют ряд биохимических путей, что приводит к активации факторов транскрипции, регулирующих экспрессию генов.
Исход стимуляции Т-клеточных рецепторов определяют три основные переменные: продолжительность и аффинность взаимодействия Т-клеточных рецепторов и АГн, этап созревания соответствующей Т-клетки и характер АГн-представляющей клетки. АГн-представляющие клетки являются регуляторами первичного ответа Т-клеток. Они могут увеличивать экспрессию вспомогательных молекул, которые предоставляют ко-стимулирующие сигналы. Комплексы МНС и пептидов, в частности, экспрессированные на дендритных клетках, позволяют им активировать наивные Т-клетки. В отличие от этого, клетки памяти и эффекторные Т-лимфоциты имеют более низкий порог активации и могут реагировать на АГн, присутствующие в периферических тканях.
- Дифференцировка Т-клеток и эффекторные функции. Активация Т-клеток индуцирует их пролиферацию — клональную экспансию — многократное увеличение числа АГн-специфических Т-клеток. Число АГн-специфичных CD8+ Т-лимфоцитов увеличивается в несколько тысяч раз, клон АГн-специфичных CD4+ Т-лимфоцитов насчитывает немного меньше клеток, чем клон CD8+. На этапе быстрого размножения Т-клетки дифференцируются из наивных Т-клеток, не обладающих эффекторными функциями, в эффекторные Т-лимфоциты, выполняющие функции клиренса патогенов. Переход наивных Т-лимфоцитов в клетки-эффекторы ассоциирован с важными внутриклеточными процессами. Во-первых, эффекторным Т-клеткам не требуется ко-стимуляция для функционирования, они способны сканировать ткани, где АГн-представляющие клетки представлены недостаточно.
Во-вторых, в эффекторных Т-клетках экспрессируются гены хемокиновых рецепторов и адгезионных молекул для осуществления миграции и входа в периферические ткани. Наконец, они становятся способными выполнять эффекторные функции.
Основной эффекторной функцией CD8+ Т-клеток является лизис инфицированных, АГн-содержащих клеток-мишеней. В конечном итоге такая функция является цитотоксичной, способность к ее осуществлению формируется во время развития в тимусе. После миграции из тимуса в наивные или неактивированные CD8+ Т-клетки циркулируют во вторичных лимфоидных органах и тканях, сохраняя способность быть активированными АГн-представляющими дендритными клетками, представляющими им соответствующий комплекс МНС I и пептидов, для специфичного распознавания Т-клеточных рецепторов и последующей экспрессии ко-стимулирующих молекул.
При активации в CD8+ Т-лимфоцитах активируются цитотоксические функции, и с помощью разнообразных рецепторов и адгезивных молекул они мигрируют из вторичных лимфоидных органов в периферические ткани в поисках малигнизированных клеток, инфицированных вирусами или внутриклеточными бактериями клеток, экспресирующих патогенные пептиды в комплексе с МНС I.
При распознании соответствующего комплекса МНС I и пептидов CD8+ Т-лимфоциты вводят в апоптоз клетки-мишени. В области контакта с такими клетками-мишенями в цитоплазме Т-киллеров скапливаются специализированные гранулы. Перфорины выбрасываются из гранул и интернализируются в мембрану клетки-мишени. Протеазы (гранзимы) вводятся в клетки-мишени для инициации процесса апоптоза путем активации ферментных каскадов. Механизмы цитотоксичности CD8+ Т-лимфоцитов также задействованы в цитотоксической активности естественных киллеров (NK). CD4+ Т-клетки также индуцируют апоптоз, но его механизм отличается от механизма CD8+ Т-клеток. При активации они экспрессируют молекулы клеточной поверхности, такие как Fas лиганд (CD178) и TRAIL, которые селективно инициируют апоптотозный каскад в клетках, экспрессирующих соответствующие лиганды Fas (CD95) или рецепторы смерти (death receptors) DR4 и DR5.
По сравнению с CD8+ Т-клетками разнообразие субпопуляций CD4+ Т-лимфоцитов существенно больше. Обычно они характеризуются как Т-хелперы, так как они вырабатывают цитокины и экспрессируют молекулы на клеточной поверхности, способствующие развитию эффекторной функции других лимфоцитов и фагоцитов. Как и CD8+ Т-клетки, CD4+ Т-лимфоциты изначально активируются во вторичных лимфоидных тканях при контакте с дендритными клетками, экспрессирующими комплексы МНС и пептидов (МНС II по сравнению с МНС I для активации CD8+ Т-клеток), распознают АГн-пептиды с помощью моноспецифичных Т-клеточных рецепторов и получают ко-стимулирующие сигналы от АГн-представляющих клеток.
Активированные эффекторные CD4+ Т-лимфоциты могут дифференцироваться в различные субпопуляции на основании их способности к синтезу определенных цитокинов (см. Е-табл. 1). Т-хелперы-1 преимущественно синтезируют IFN-γ и ФНО-α и принимают участие в клеточном иммунитете, например в реакциях ГЗТ. Цитокины Т-хелперы-1 способствуют активации моноцитов/макрофагов, обеспечивающих защиту от внутриклеточных патогенов, например от микробактерий и листерий. Т-хелперы-2 предпочтительно вырабатывают IL-4, IL-5 и IL-13 — цитокины, способствующие активации эозинофилов, их распространению и накоплению в тканях, а также активации функции макрофагов. Т-хелперы-2 являются важными для защиты хозяина при инфицировании гельминтами, например шистозомами и другими макропаразитами.
Т-хелперы-17 вырабатывают IL-17, важный для распространения и функционирования нейтрофилов, способствуют элиминации внеклеточных патогенов, например стрептококков и патогенных грибов. Также такие клетки могут вырабатывать IL-22, который способствует защитной функции хозяина в барьерных тканях, например в коже и в пищеварительном тракте. Фолликулярные хелперы представлены в лимфоидных фолликулах, в местах скопления В-лимфоцитов, где они экспрессируют CD40 лиганд (CD154) и прочие поверхностные молекулы, а также являются продуцентами цитокинов, важных для созревания В-клеток и их дифференцировки в плазматические клетки и В-клетки памяти: IL-21, IL-4 и IFN-y. Решение о том, какой путь дифференцировки выбрать, принимается на ранних этапах активации Т-клеток АГн-представляющими клетками во вторичных лимфоидных органах. Путь дифференцировки зависит от нескольких факторов, включая 1) цитокины, синтезируемые в микроокружении Т-лимфоцитов АГн-представляющими клетками и другими клетками врожденного иммунитета, 2) характер ко-стимулирующих сигналов и 3) авидность взаимодействия Т-клеточных рецепторов и АГн МНС.
Развитие субпопуляции CD4+ Т-клеток или клеточной линии обычно связано с разными специфичными факторами транскрипции (T-bet для Т-хелперов-1, GATA3 для Т-хелперов-2, RORyt для Т-хелперов-17 и Всl6 для фолликулярных Т-хелперов).
Однако детерминация субпопуляций среди дифференцированных CD4+ Т-клеток не является абсолютной и не является терминальной, возможен переход между разными эффекторными субпопуляциями CD4+ Т-лимфоцитов.
- Регуляторные Т-клетки. В зависимости от профиля синтезируемых цитокинов некоторые субпопуляции CD4+ Т-лимфоцитов способны влиять на процессы дифференцировки Т-клеток и подавлять их эффекторную активность. Классическими примерами Т-клеток с регуляторной активностью, формирующейся во время нормальных иммунных ответов, являются IL-10 и трансформирующий фактор роста β (TGF-β)-образующие клетки. Такие специализированные субпопуляции регуляторных Т-клеток характеризуются экспрессией транскрипционного фактора семейства Forkhead Р3 (Foxp3). Возникающие в естественных условиях предшественники Foxp3+ регуляторных Т-клеток (или так называемые центральные регуляторные Т-клетки) появляются еще в тимусе, где они распознают собственные АГн. Также Foxp3+ регуляторные Т-клетки могут формироваться и на периферии — из CD4+ Т-лимфоцитов (так называемые индуцибельные регуляторные Т-клетки).
Центральные и индуцибельные регуляторные Т-клетки во многом не отличаются друт от друга, так как их развитие и функция зависят от ядерного фактора Foxp3. Такие регуляторные Т-лимфоциты постоянно экспрессируют несколько маркеров клеточной поверхности, даже маркеры, которые не являются обязательно специфичными для регуляторных Т-клеток, поскольку активированные Т-клетки также могут экспрессировать эти маркеры. Регуляторные Т-клетки являются важными в процессах периферической толерантности, так как они контролируют распространение клонов аутореактивных Т-лимфоцитов. Регуляторные Т-клетки также играют супрессорную роль в иммунных ответах на патогены с помощью их способности подавлять эффекторные функции Т-лимфоцитов, что существенно снижает интенсивность воспалительного ответа, направленного изначально на удаление патогенов, но впоследствии приводящего к разрушению тканей и развитию клонов аутореактивных клеток-эффекторов.
Регуляторные Т-клетки также могут специализироваться в соответствии со своим клеточным микроокружением, например, в клетки, избирательно селективно регулирующие интенсивность воспаления, вызванного гиперактивацией Т-хелперов-1, Т-хелперов-2, Т-хелперов-17 соответственно, и регулировать фолликулярные Т-хелперы, способствующие выработке аутоАТл при аутоиммунных заболеваниях.
Основной разницей между центральными и индуцированными регуляторными Т-клетками является то, что последние в основном работают в барьерных тканях, подверженных действию факторов окружающей среды. Несмотря на обширные исследования в разных моделях, механизм функционирования регуляторных Т-клеток in vivo остается не вполне понятым, хотя очевидно важную роль играют синтезируемые ими регуляторные цитокины, например IL-10 и трансформирующий фактор роста β, угнетающие воспалительные ответы. Экспрессированные на поверхности регуляторных Т-клеток высокоаффинные рецепторы для IL-2 позволяют им связывать в больших количествах IL-2, тем самым ограничивая способность других популяций лимфоцитов к пролиферации. Tregs также могут экспрессировать цитотоксический Т-лимфоцитарный АГн (CTLA)-4 (CD152), который, как и CD28, способен взаимодействовать с ко-стимулирующими молекулами CD80 и CD86 на АГн-представляющих клетках.
В отличие от CD28, дающих положительный сигнал от контакта с молекулами CD80 и CD86, что приводит к активации Т-клеток, взаимодействие с цитотоксичным Т-лимфоцитарным АГн-4 на регуляторных Т-клетках подавляет способность АГн-представляющих клеток активировать наивные Т-клетки.
- Гомеостаз Т-клеток. Эффективный иммунный ответ зависит от способности иммунной системы быстро создавать большое количество АГн-специфичных Т-клеток. Для предотвращения развития неэффективных иммунных ответов на разнообразные АГн-стимулы, воздействующие на макроорганизм в течение всей его жизни, в адаптивном иммунитете действуют механизмы иммунорегуляции. На последних этапах процесса активации в АГн-представляющие клетки подается сильный отрицательный сигнал от взаимодействия цитотоксичного Т-лимфоцитарного АГн-4 и CD80/CD86. Помимо этого, Т-клетки проходят через этап активации, вызывающий апоптоз. Активированные CD4+ Т-клетки начинают секретировать Fas-лиганды, становятся чувствительными к Fas-опосредованной смерти и подвергаются апоптозу и взаимному уничтожению соседних Т-клеток. Такие механизмы накладывают ограничения на ранних этапах ответа Т-клеток на АГн. Другие механизмы контролируют быстрое снижение распространения АГн-специфичных Т-клеток при достижении элиминации АГн.
Удаление этиологически значимого АГн приводит к депривации цитокинов и ко-стимулирующих молекул, а также росту числа Т-клеток, лишенных фактора роста, что приводит к их апоптозу. Известно, что только 5% популяции Т-лимфоцитов, специфичных к данному АГн, популяции выживают после клиренса АГн, это Т-лимфоциты памяти, они готовы к ответу на тот же самый АГн при его повторных попаданиях в макроорганизм.
2. В-лимфоциты:
- Образование В-клеток. В-клетки образуются в костном мозге, который, как и тимус, относится к центральным органам иммунитета. Лимфоидные стволовые клетки, дифференцирующиеся на пре-В-клеточные линии в костном мозге, поддерживаются специализированным микроокружением нелимфоидных стромальных клеток, синтезирующих необходимые хемокины, включая стромально-клеточных фактор 1 (CXCL12) и цитокины (IL-7). Предшественники В-клеток вступают в процесс строго контролируемых последовательных перестроек генов, кодирующих тяжелые и легкие цепи молекул Ig. На предшественниках В-клеток μ-цепь мембраны связана с суррогатной легкой цепью для образования пре-В-клеточного рецептора. Сигналы, полученные через этот рецептор, индуцируют пролиферацию клеток, в которых в последующем перестраиваются разные сегменты генов легких цепей.
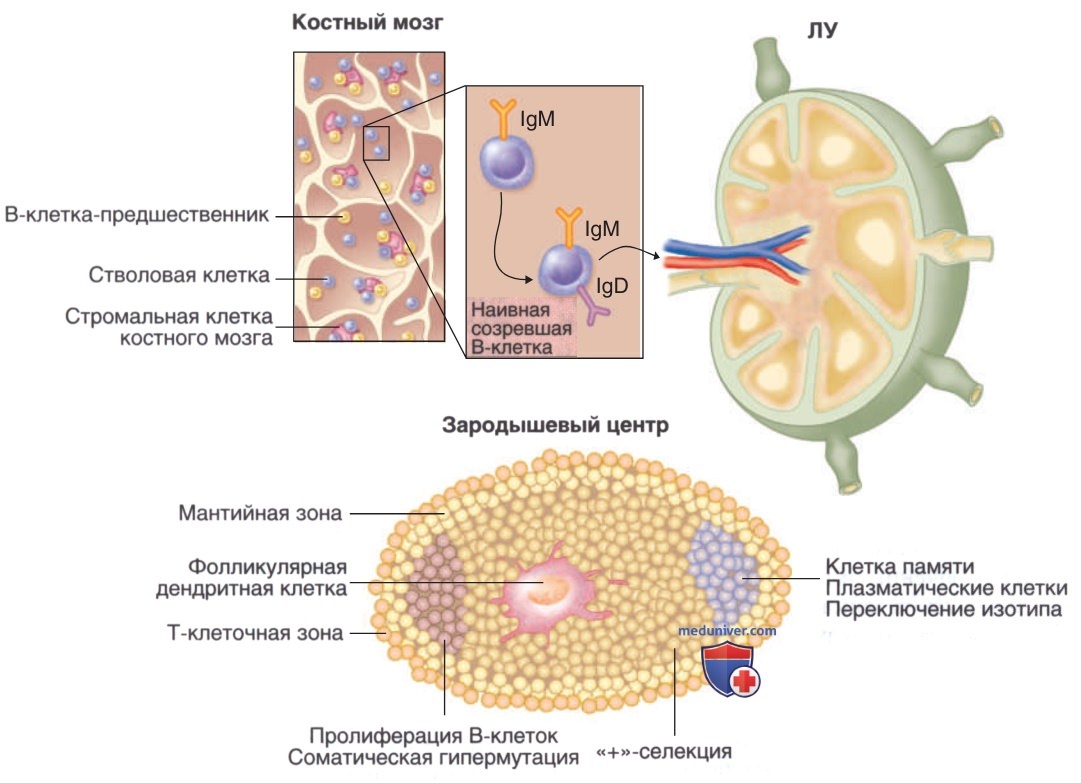
По разным оценкам, только 10% В-клеток, созданных в костном мозге, достигают кровотока. В основном потери связаны с отрицательной селекцией и клональным удалением несозревших В-клеток, экспрессирующих рецепторы, направленные против собственных АГн. Перекрестное связывание поверхностного IgM поливалентными собственными АГн приводит к апоптозу несозревших В-клеток. Такие аутореактивные В-клетки могут быть спасены от смерти заменой легкой цепи на вновь перестроенную легкую цепь, не являющуюся аутореактивной. Этот процесс называется «редактирование рецептора». После созревания В-клетки начинают дополнительно экспрессировать поверхностный IgD. В-клетки, положительные по экспрессии IgD и IgM, экспортируются из костного мозга и мигрируют в периферические лимфоидные ткани по градиенту хемокинов в процессе, аналогичном миграции наивных Т-клеток из тимуса в ткани (рис. 3). Колонизация Т- и В-клеток во вторичных лимфоидных тканях способствует их взаимодействию после встречи с патогенами.
Рисунок 3. Развитие и дифференциация В-клеток. Ранние этапы развития В-клеток проходят в костном мозге, где клетки проходят программу реаранжировки генов, кодирующих молекулы иммуноглобулина (Ig). Несозревшие В-клетки с рецепторами для поливалентных собственных антигенов погибают апоптозом в костном мозге. Выжившие В-клетки ко-экспрессируют поверхностные рецепторы IgD- и IgM-класса. Они попадают в периферические лимфоидные органы, где находятся в избирательных местах и получают сигналы для выживания и превращения в долгоживущие наивные В-клетки. Антиген-связывающие В-клетки и антиген-представляющие В-клетки, которые получают помощь от антиген-специфичных Т-клеток, активируются через механизмы межклеточных взаимодействий и секретированные на поверхностной мембране молекулы. Активированные В-клетки мигрируют в фолликулы, что приводит к образованию зародышевых центров. В зародышевых центрах в В-лимфоцитах происходит процесс соматической гипермутации генов Ig. Клетки с высокой аффинностью для антигенов, представленных на поверхности фолликулярных дендритных клеток, отбираются для дифференциации в долгоживущие антитела-секретирующие, плазматические клетки и в пре-В-клетки памяти, мигрирующие в костный мозг, где они дифференцируются в долгоживущие В-клетки памяти с рядом антигенной аффинности, обеспечивая более разнообразные ответы после повторного инфицирования теми же самыми патогенами, например ВИЧ или вирусами гриппа
Это позволяет В-клеткам получать помощь Т-клеток для активации начальных и последующих этапов функционирования, включая развитие В-клеток памяти и плазматических клеток, секретирующих АТл, необходимые для ответа на белковые АГн.
- Стимуляция В-клеток. Созревшие, но пока еще наивные В-клетки во вторичных лимфоидных органах активируются с помощью растворимых АГн и АГн, связанных с клетками, и дифференцируются в АТл-секретирующие эффекторные клетки. В-клетки реагируют на большое разнообразие АГн, включая белки, полисахариды и липиды. Связь АГн с молекулами IgM клеточной поверхности приводит к скоплению В-клеточных рецепторов на поверхности — начальный этап активации В-клеток. Помимо АГн-связывающего Ig, В-клеточный рецептор включает два белка, Ig-α и Ig-β. Ig-α/Ig-β гетеродимеры функционируют для передачи сигнала и инициируют внутриклеточный сигнальный каскад, аналогично молекуле CD3 для функционирования Т-клеточных рецепторов.
Поэтому состав В-клеточных рецепторов с лиганд-связывающими и сигнал-передающими блоками, а также сигнальными событиями, приводящими к индуцированию генов, является аналогичным при активации Т-клеточных рецепторов. Активация В-клеточных рецепторов провоцируется ко-рецепторами так же, как и для Т-клеточных рецепторов. Комплекс ко-рецепторов В-клеточных рецепторов состоит из CD81, CD19 и CD21, аналогично ко-рецепторам CD4 и CD8 для функционирования Т-клеточных рецепторов. CD21 связывается с фрагментами комплемента на опсонизированных с В-клеточными рецепторами связанных АГн, что приводит к фосфорилированию внутриклеточной части CD19 тирозинкиназами и увеличению интенсивности опосредованного В-клеточными рецепторами сигнала.
Как для наивных Т-клеток, для наивных В-клеток требуются вспомогательные сигналы помимо активации их АГн-связывающего рецептора. Они получают вторые сигналы от фолликулярных Т-хелперов или от компонентов микроорганизмов, таких как бактериальные полисахариды, способные индуцировать выработку АТл при отсутствии Т-хелперов. Таким образом, выделяют Т-зависимые и Т-независимые АГн. В отличие от липополисахаридов, белковые АГн являются тимус- или Т-зависимыми, начальная стимуляция В-клеточных рецепторов готовит клетки к последующему взаимодействию с фолликулярными Т-хелперами. Такие активированные В-клетки начинают вступать в клеточный цикл; молекулы CD80 и CD86 представляют ко-стимулирующие сигналы для Т-клеток; и происходит синтез определенных рецепторов к цитокинам. Таким образом, В-клетки готовы к активации их Т-хелперами и к ответу на цитокины, секретируемые Т-клетками, но пока еще они не могут дифференцироваться в антителообразующие клетки в отсутствие помощи от Т-клеток.
Факторы выживания и дифференциации, созданные миелоидными клетками, например фактор активации В-клеток, также стимулируют В-клетки и помогают поддерживать популяцию В-клеток.
- Дифференцировка В-клеток. Дифференцировка В-клеток, активируемая белковыми АГн, зависит от взаимодействия с Т-хелперами. В-клетки используют свои рецепторы не только для распознания АГн, но также для их поглощения. После переработки эндоцитированных АГн на В-клеточной поверхности появляются комплексы молекул МНС II и пептидов, и они узнаются АГн-специфичными CD4+ Т-клетками. Также В-клетки экспрессируют ко-стимулирующие молекулы и обеспечивают оптимальные условия для активации Т-клеток. При активации CD4+ Т-клетки экспрессируют CD154, также известный как CD40 лиганд, и могут стимулировать молекулы CD40 на В-клетках-партнерах. Взаимодействие CD40 и CD154 является обязательным для последующей пролиферации и дифференцировки В-клеток.
Цитокины, секретируемые Т-хелперами, действуют согласованно с CD154 для усиления дифференцировки В-клеток и для определения типа АТл с помощью контроля переключения изотипа.
Изотипы обеспечивают разнообразие АТл как эффекторных молекул, а цитокины способствуют процессу переключения изотипов, стимулируя области переключения активации транскрипции, расположенные выше генов константной части тяжелых цепей, и способствуя удалению гена тяжелой цепи IgM и рекомбинации сегментов VDJ с одной из последующих константных областей, IgG, IgA или IgE.
Дифференцировка и созревание В-клеток, зависимых от Т-клеток, происходит в зародышевых центрах — специализированных областях во вторичных лимфоидных тканях, где В-клетки быстро пролиферируют, а в генах, кодирующих вариабельные части молекул поверхностных Ig (В-клеточных рецепторов), происходят точечные мутации, или так называемый соматический гипермутагенез (см. рис. 3). Такие В-клетки, несущие рецепторы с мутациями, способствующими более высокой аффинности связывания с АГн, отбираются для выживания с помощью специфических сигналов, подаваемых Т-хелперами, а клетки с мутациями, приводящими к формированию рецепторов с меньшей аффинностью, погибают с помощью апоптоза. Этот процесс обеспечивает созревание аффинности В-клеток, наиболее эффективно связывающих АГн, что необходимо для успешного клиренса патогенов. Процессы соматической гипермутации, приводящие к повышению аффинности рецепторов, и процессы переключения классов Ig происходят в зародышевых центрах.
3. Лимфоциты и лимфоидные клетки. Начало адаптивного иммунного ответа зависит от встречи редких АГн-специфичных Т-клеток и В-клеток и АГн-представляющих клеток и их соответствующих АГн. Вероятность распознания специфического АГн в тканях наивными Т-клетками является низкой, и маловероятно, что для эффективного запуска иммунных ответов произойдет скопление достаточного количества АГн-представляющих клеток и лимфоцитов. Иммунная система использует специализированные лимфоидные микроструктуры для переноса АГн в места трафика и скопления лимфоцитов. Вторичные лимфоидные органы включают селезенку для АГн, присутствующих в крови, ЛУ для АГн из периферических тканей и лимфоидные ткани, ассоциированные со слизистыми, бронхами и пищеварительным трактом и другими компартментами, где собираются АГн с эпителиальных поверхностей. Лимфоциты циркулируют через вторичные лимфоидные органы в постоянном поиске своих АГн. В ЛУ специализированные микрососуды, которые называются наружными эндотелиальными венулами (венулами с высоким эндотелием), образуют поверхности для выхода лимфоцитов из кровотока и входа в ткани.
Вторичные лимфоидные ткани могут использовать несколько стратегий для скопления в них АГн. АГн в периферических тканях сначала сталкиваются с дендритными клетками, после активации дендритные клетки транспортируют АГн в близлежащие ЛУ, либо АГн могут попадать в ЛУ с током дренирующей лимфы. Нагруженные АГн дендритные клетки попадают в ЛУ через афферентные лимфатические протоки и оседают в зонах, богатых Т-клетками, для представления процессированных АГн Т-клеткам. Результатом такого процесса является скопление и концентрация АГн в микроокружении, в котором происходит сканирование всех АГн редкими АГн-специфичными Т-клетками.
В ЛУ В-клетки отделяются от Т-клеток и локализуются в фолликулах. Наивные В-клетки могут захватывать АГн в ходе циркуляции через вторичные лимфоидные ткани, например представленные им мигрирующими дендритными клетками или макрофагами в субкапсулярных зонах ЛУ. Если в момент захвата АГн В-клетки находят взаимодействующие с этим же самым АГн (родственные) Т-клетки на границах областей, богатых Т-клетками, и фолликулов, они вдвоем получают возможность входа в зародышевые центры и отправляют сигналы назад своим родственным фолликулярным Т-хелперам. Зародышевые центры содержат сеть фолликулярных дендритных клеток, несущих определенные АГн или иммунные комплексы на клеточной поверхности. Такие необработанные АГн захватываются АГн-специфичными В-клетками, процессируются, представляются и распознаются АГн-специфичными фолликулярными Т-хелперами. Такие Т-клетки синтезируют цитокины и осуществляют межклеточные контактные взаимодействия для поддержки иммунных реакций в зародышевых центрах.
Этот процесс включает соматическую гипермутацию, отбор аффинности и переключение изотипов (см. рис. 3). Зародышевые центры являются обязательными для создания долгоживущих плазматических клеток, секретирующих АТл, и В-клеток памяти.
Развитие лимфоидного органа зависит от внешних факторов. Симбиоз между «своей» иммунной системой и микроорганизмами лучше всего можно продемонстрировать на примере ЖКТ. Развитие лимфоидной ткани, ассоциированной с пищеварительным трактом, полностью зависит от колонизации микроорганизмами. Растущее количество доказательств указывает на то, что взаимоотношение иммунной системы организма хозяина и симбиотических микроорганизмов регулирует функции адаптивного иммунитета в течение всей жизни. Нарушения микробиоты и неспособность поддерживать кишечный гомеостаз являются ключевыми событиями при различных заболеваниях, включая ВЗК и иммунодефициты, связанные с ВИЧ.
- Иммунологическая память. Важным следствием адаптивного иммунитета является создание иммунологической памяти — основы длительной защиты организма после первичной инфекции. Создание памяти с помощью вакцинации — это одно из самых главных достижений в медицине. Иммунологическая память определяется как способность быстрее и более эффективно реагировать на патогены, которые встречались ранее. Основами иммунологической памяти являются количественные и качественные изменения в АГн-специфических Т- и В-клетках. В результате клональной экспансии и отбора число АГн-специфичных В-клеток памяти и Т-клеток памяти увеличивается в 10-1000-кратном размере в сравнении с наивными клетками. Механизмы, с помощью которых Т- и В-клетки памяти покидают клон клеток на завершающих этапах первичных иммунных ответов, являются последствиями активации процессов регуляции выбранной группы факторов транскрипции, гарантирующих выживание этих клеток.
Обогащение пула АГн-специфичных В- и Т-клеток повышает чувствительность иммунной системы к повторным антигенным нагрузкам, и происходит преимущество в виде 4-10 циклов деления этих клеток.
Помимо количества, функции Т- и В-клеток памяти отличаются от работы наивных лимфоцитов. Клетки памяти являются долгоживущими и выживают в присутствии определенных цитокинов без непрерывной АГн-стимуляции, что гарантирует иммунологическую память на протяжении предполагаемой продолжительности жизни отдельной клетки. В-клетки памяти синтезируют в основном IgG и IgA АТл без признаков соматической гипермутации и высокой аффинности для АГн, при этом последнее является важным для защиты от патогенов на слизистых поверхностях. Высокоаффинные IgE АТл также вырабатываются после встречи с определенными патогенами, как, например, гельминтами, и после аллергенной стимуляции. Экспрессия высокоаффинных АТл на клеточной поверхности позволяет эффективнее захватывать АГн, что усиливает процесс взаимодействия с Т-клетками. При встрече с АГн В-клетки памяти дифференцируются в плазматические клетки, секретирующие АТл, или повторно входят в зародышевый центр, где высокая аффинность их Ig-рецепторов дает им конкурентное преимущество перед наивными В-клетками при связывании АГн, что приводит к существенному повышению аффинности синтезируемых АТл.
Поскольку в Т-клеточных рецепторах не происходят процессы переключения изотипов или созревания аффинности, Т-клетки памяти сложнее отличить от наивных или эффекторных Т-клеток. В отличие от эффекторных клеток, Т-клеткам памяти не хватает маркеров активации и требуется АГн-стимуляция для восстановления эффекторных функций. В отличие от наивных Т-клеток, Т-клетки памяти имеют более низкий порог активации и менее зависят от ко-стимулирующих сигналов. По сути, их потребности в АГн-стимуляции более низкие, а интенсивность процесса их клональной экспансии выше, это обеспечивает быстрые и эффективные ответы на вторичные встречи с АГн. Также Т-клетки памяти восстанавливают эффекторные функции без необходимости прохождения процесса пролиферации.
- Иммунологическая толерантность и аутоиммунитет. Отсутствие ответа на аутоАГн является фундаментальным свойством иммунной системы и обязательным условием поддержки целостности тканей хозяина. Различие своего/чужого является относительно простым для врожденного иммунитета, в котором рецепторы к чужеродным структурам генетически закодированы и отобраны в ходе эволюции. Различие своего/чужого является намного более сложной задачей для клеток адаптивного иммунитета, в котором АГн-специфические рецепторы формируются случайно, и может быть распознан весь спектр АГн, в том числе и аутоАГн. Поэтому клетки адаптивного иммунитета (Т- и В-лимфоциты и клетки памяти) должны приобретать способность различать свои и чужеродные АГн. Для «неотвечаемости» на аутоАГн существуют несколько механизмов, обеспечивающих толерантность. Толерантность в адаптивном иммунитете является АГн-специфической; ее индукция является необходимой для распознания АГн лимфоцитами в разных компартментах. Отсутствие толерантности к своему приводит к образованию иммунных ответов против собственных АГн.
Такие реакции называются аутоиммунными и могут вызывать развитие хронических воспалительных аутоиммунных заболеваний.
Механизмы центральной и периферической толерантности различаются. При центральной толерантности аутореактивные лимфоциты удаляются во время их развития в центральных органах иммунитета. Такой процесс отрицательной селекции, в частности, является важным для Т-клеток. Во время развития в тимусе Т-клетки, распознающие АГн с высокой аффинностью, в частности АГн, которые могут постоянно экспрессироваться на АГн-представляющих клетках, удаляются. Центральная толерантность для В-клеток использует аналогичный принцип. Распознавание АГн развивающимися В-клетками в костном мозге активирует апоптоз или редактирование рецептора, который представляет собой аутореактивный рецептор, содержащий продукт вновь перестроенного гена легкой цепи. Отрицательная селекция является особенно важной для В-клеток, которые распознают поливалентные АГн, так как они не зависят от помощи Т-клеток и не могут контролироваться на периферии.
Не все аутореактивные Т-клетки подвергаются отрицательной селекции в тимусе; определенные АГн не встречаются с достаточной плотностью в вилочковой железе. Также все Т-клетки имеют некоторую аутореактивность, которая является необходимой для положительного отбора в тимусе и для периферического выживания. Механизмы периферической толерантности Т-клеток включают: 1) анергию, 2) периферическое удаление, 3) клональное игнорирование и 4) подавление иммунных ответов регуляторными Т-клетками. Анергия Т-клеток является временной и активно поддерживается. Она активируется, если CD4+ Т-клетки распознают АГн, представленные молекулами МНС II без получения ко-стимулирующих сигналов. В целом ко-стимулирующие молекулы, например CD80 и CD86, ограничены АГн-представляющими клетками, а их экспрессия зависит от распознавания микроорганизмов, что приводит к активации АГн-представляющих кл. Презентация МНС-пептидов Т-клеткам несозревшими или неактивированными АГн-представляющими клетками, находящимися в покое, или любыми клетками, кроме периферических АГн-представляющих клеток, приводит к анергии, так как обычно таким клеткам не хватает экспрессии ими ко-стимулирующих молекул.
Находящиеся в тканях несозревшие дендритные клетки должны быть активированы цитокинами или распознанием патоген-ассоциированных молекулярных паттернов для стимуляции, но не для анергии Т-клеток. Второй механизм толерантности, периферическое удаление, активируется как следствие гиперстимуляции. Гиперстимуляция Т-клеток (например, высокими дозами АГн и высокими концентрациями IL-2) предпочтительно активирует проапоптотические пути и вызывает удаление специфично реагирующих Т-клеток. Такой механизм может отвечать за удаление Т-клеток, специфичных для различных периферических аутоАГн и для чужеродных АГн, которые в огромном количестве присутствуют во время инфекционного процесса. Если стимулирование анергии и смерть клеток, вызванная активацией, являются активными последствиями распознавания АГн, третий механизм толерантности, клональное игнорирование, является менее ясным. Клональное игнорирование определяется как присутствие аутореактивных лимфоцитов, которые не распознают или не реагируют на периферические АГн. Такие клетки остаются ответственными за АГн-стимуляции, если находятся в определенных компартментах. Примером клонального игнорирования является отсутствие реакции на АГн забарьерных органов, к которым клетки иммунной системы не имеют доступа.
Однако существуют и другие механизмы, так как клональное игнорирование также возможно и для доступных лимфоцитам АГн. Регуляторные Т-клетки играют ключевую роль в поддержании периферической толерантности. Во время иммунного ответа Т-клетки могут приобретать способность вырабатывать регуляторные цитокины, например трансформирующий фактор роста β, IL-10 или IL-4, способные стимулировать или подавлять иммунные ответы. Огромные возможности регуляторных Т-клеток, Foxp3 CD4+ Т-клеток могут быть использованы в разработке новых стратегий терапии аутоиммунных заболеваний и восстановлении периферической толерантности при повышении трансплантационной толерантности. Удаление или функциональное подавление регуляторных Т-клеток может также применяться при иммунотерапии в онкологии.
Критически важный механизм периферической толерантности В-клеток поддерживается благодаря отсутствию помощи Т-клеток. Для дифференцировки в эффекторные клетки В-клеткам требуются сигналы от Т-клеток. В-лимфоциты, распознающие аутоАГн на периферии при отсутствии помощи Т-клеток, оказываются неспособными попасть в лимфоидные фолликулы, где они могут получить помощь Т-клеток, и, таким образом, эффективно исключаются из иммунных ответов. Эффективный положительный отбор и аутотолерантность Т-клеток являются важными для такого процесса.
Создание и поддержка аутотолерантности может оказаться неуспешной, и в этом случае развиваются аутоиммунные ответы. В целом хронические воспалительные заболевания, вызванные нарушениями в процессах, поддерживающих аутотолерантность, возникают у ~5% населения. Учитывая сложность регуляции, удивительно, что аутоиммунные заболевания не являются более распространенными. Считается, что большинство аутоиммунных заболеваний возникают в результате дисфункции адаптивной иммунной системы, хотя активация врожденного иммунитета может способствовать созданию условий для развития аутореактивного адаптивного иммунного ответа. Многие модели аутоиммунитета основаны на нарушении периферической анергии. Нарушения в экспрессии ко-стимулирующих молекул на непрофессиональных АГн-представляющих клетках или несоответствующая активация дендритных клеток кожи создают основу для стимулирования «запрещенных» Т-клеточных ответов. Также аутореактивные В-клетки, распознающие собственные АГн в комплексе с чужеродным АГн, могут захватывать такой комплекс и получать помощь от Т-клеток, специфичных для чужеродных АГн.
Аутоиммунитет также может возникать в случае нарушения игнорирования АГн, например при разрушении барьеров в забарьерных тканях, в результате этого АГн, которые обычно секвестрируются из иммунной системы, как, например, АГн ЦНС или глаза, становятся доступными. Механизмы анергии или клонального игнорирования также могут быть неуспешными, если чужеродный АГн, с одной стороны, в достаточной степени отличается от аутоАГн и на него развивается иммунный ответ, при этом этот чужеродный АГн имеет некоторое сходство с аутоАГн организма, и происходит активация Т-клеток и эффекторных функций Т-клеток и В-клеток не только на этот чужеродный АГн, но и на собственные структуры (молекулярная мимикрия).
в) Адаптивный иммунный ответ:
1. Определение. Адаптивный иммунный ответ — важный компонент в защите организма против инфекций. Его отличительное свойство — способность распознавать отдельные патогены на основании клонального отбора лимфоцитов, несущих АГн-специфические рецепторы. АГн, не относящиеся к инфекциям, также вызывают адаптивные иммунные ответы. Многие заболевания характеризуются развитием иммунных ответов, направленных против практически безвредных для организма АГн, при отсутствии инфекции.
Иммунные ответы, направленные на неинфекционные АГн, развиваются при аллергических заболеваниях (АГн — безобидная чужеродная субстанция) и при аутоиммунных процессах (иммунные ответы направлены против собственных АГн).
Эффекторные механизмы, удаляющие патогены при развитии адаптивного иммунного ответа, сходны с механизмами врожденного иммунитета. Функция специфичного распознания АГн в адаптивном иммунном ответе считается дополнительной для врожденного иммунитета, появившегося раньше. В результате воспалительные клетки и механизмы врожденного иммунитета → реализации эффекторных функций В- и Т-лимфоцитов, при патологических ответах (аллергических и аутоиммунных заболеваниях) способны вызывать повреждение тканей.
2. Эффекторные механизмы. Эффекторные функции АТл зависят от привлекаемых клеток и молекул врожденного иммунитета. АТл — связующее звено между АГн и неспецифичными воспалительными клетками, направляющее деструктивные эффекторные ответы и активирующее систему комплемента. В результате ↑ опсонизация АГн и количество фагоцитарных клеток → дополнительному повреждению, помимо вызванного только АТл. Изотип или класс продуцируемых АТл определяет тип эффекторных механизмов врожденного иммунитета, приводящих к разрушению тканей.
Рецепторы для Ig осуществляют связь между гуморальными и клеточными звеньями иммунного каскада, помогают определить и уничтожить чужеродные и эндогенные для макроорганизма опсонизированные АГн. Такие клеточные рецепторы для АТл (Fc-рецепторы) взаимодействуют с константной областью (Fc часть) тяжелой цепи молекул Ig определенного класса, независимо от их АГн-специфичности. Другие клетки, не обладающие достаточной специфичностью распознавания АГн, например нейтрофилы, макрофаги и тучные клетки, привлекаются к участию в воспалительных ответах через взаимодействие их Fc-рецепторов с АГн-специфическими АТл. Рецепторы для разных изотипов Ig экпрессируются на поверхности разных типов эффекторных клеток.
Рецепторы для IgG (FcγR) представляют собой группу разнообразных рецепторов, экспрессированных на поверхностной мембране фагоцитов (макрофагов, моноцитов, нейтрофилов), тромбоцитах, тучных клетках, эозинофилах и натуральных киллерах. FcγR: стимулирующие и ингибирующие пары. Активация стимулирующих FcγR запускает фагоцитоз, АТл-зависимую клеточную цитотоксичность, секрецию гранул, синтез медиаторов воспаления, например цитокинов, реактивных соединений кислорода и протеаз. Структурное разнообразие FcγR → различиям в способности связывания, передачи сигналов и клеточно-типоспецифическими профилями экспрессии; позволяет IgG-содержащим комплексам активировать различные функции клеток при развитии воспаления, иммунной защиты или при аутоиммунных реакциях.
Активация фагоцитов запускается стимулирующими FcγR, облегчая распознание, захват и уничтожение мишеней, покрытых АТл; связывание поливалентного IgG с FcγR на тромбоцитах → скоплению тромбоцитов и тромбозу; на натуральных киллерах → активацию цитотоксических свойств в отношении мишеней, покрытых АТл.
IgE связывается с высокоаффинными рецепторами для IgE (FcεR) на тучных клетках, базофилах и активированных эозинофилах. В отличие от FcγR, обладающих низким сродством и связывающихся с многовалентными IgG, а не циркулирующими отдельными молекулами IgG, FcεR взаимодействуют с мономерными IgE. Отдельная тучная клетка может быть «вооружена» молекулами IgE, специфичными для различных АГн, все связи образуются с поверхностными FcεR. Тучные клетки, локализованные под слизистой оболочкой ЖКТ и ДП, дерме кожи, «ожидают» повторных воздействий на организм поливалентных АГн, которые перекрестно связывают поверхностные IgE, связанные с FcεR, → к высвобождению гранул, содержащих гистамин, синтезу цитокинов и других медиаторов воспаления.
IgE-опосредованная активация эозинофилов — клеток, присутствующих в соединительных тканях под эпителием ДП, МВП и ЖКТ, → высвобождению высокотоксичных белков, свободных радикалов и других химических медиаторов, например Pg, цитокинов и хемокинов, → усиливают местные воспалительные ответы путем активации эндотелиоцитов, привлечения и активации большого числа эозинофилов и лейкоцитов. Гранулы и высокоаффинные FceR, связанные с мономерными IgE, воздействуют на патогены или аллергены непосредственно в очаге (место проникновения или место расположения клеток, несущих FcεR).
Ингибирующие рецепторы для IgG способны менять пороги активации клеток и ингибировать стимулирующие сигналы (ключевые события в регуляции эффекторных функций клеток). Учитывая то, что ингибирующие и стимулирующие Fc-рецепторы коэкспрессируются на одних и тех же клетках, эффекторный ответ на специфичные стимулы в отдельной клетке представляет баланс между стимулирующими и ингибирующими сигналами. Ингибирующие FcγR ↓ интенсивность ответов, запускаемых FcεR на тучных клетках, FcγR-обусловленное воспаление в местах отложения иммунных комплексов.
Эффекторная активность, вызванная IgG и IgM, может быть обусловлена активацией системы комплемента. Мультимерный Ig (АГн + IgG и IgM) запускает классический путь активации комплемента, вызывая ↑ фагоцитоза комплексов АГн-АТл, ↑ сосудистой проницаемости, процессов привлечения и активации воспалительных клеток. Таким образом, объект повреждения определяется АТл, а степень повреждения — синергическими действиями Ig и компонентов системы комплемента.
Повреждение тканей также вызывают АГн-специфические эффекторные Т-клетки. При воздействии соответствующего АГн Т-клетки памяти освобождают цитокины и хемокины, активирующие местные эндотелиоциты; привлекают и активируют макрофаги и другие клетки воспаления. Эффекторные клетки, активированные Т-клеточными цитокинами, или сами цитотоксические Т-клетки обуславливают повреждение тканей. Т-хелперы-1 вырабатывают IFN-y и активируют макрофаги → разрушению тканей, Т-хелперы-2 вырабатывают IL-4, IL-5 и эотаксин (эозинофил-специфический хемокин) → стимулируют воспалительные ответы (преобладают эозинофилы).
Т-хелперы-17 секретируют несколько эффекторных молекул, включая IL-17, действующие как на иммунные, так и на неиммунные клетки, вызывая дифференцировку клеток, освобождение молекул с противомикробной активностью, синтез цитокинов и хемокинов, дополнительное привлечение клеток-эффекторов в очаги воспаления. Недавно описаны новые эффекторные субпопуляции Т-хелперов, в том числе фолликулярные Т-хелперы, обеспечивающие помощь В-клеткам в зародышевых центрах (регуляторы гуморальных ответов и производства АТл).
г) Контрольные вопросы:
1. IgG характеризуются всем из нижеперечисленного, кроме следующего.
A. Две тяжелые цепи и две легкие цепи.
B. Общая γ-цепь.
C. Дисульфидные связи.
D. Подклассы.
Ответ В. Молекулы IgG состоят из двух идентичных тяжелых и двух идентичных легких цепей, связанных дисульфидными связями. Молекулы IgG и IgA содержат разные подклассы, закодированные разными геномными последовательностями ДНК. Общая γ-цепь — это сигнальный компонент определенного цитокина и Fc-рецепторов, но не является компонентом антител IgG.
A. На эпителиальных клетках.
B. Молекулами главного комплекса гистосовместимости I класса.
C. Молекулами главного комплекса гистосовместимости II класса.
D. Ко-стимулирующими молекулами.
E. CD80.
Ответ С. Антигенные пептиды, процессированные специализированными АГн-представляющими клетками, ассоциируются с пептид-связывающей щелью молекул главного комплекса гистосовместимости II класса и распознаются Т-клеточными рецепторами, экспрессированными на CD4+ Т-клетках. CD8+ Т-клетки распознают антигенные пептиды, ассоциированные с молекулами главного комплекса гистосовместимости I класса. CD80 — пример ко-стимулирующей молекулы, поддерживающей активацию Т-клеток, взаимодействовавших с комплексами пептида — главного комплекса гистосовместимости на АГн-представляющих клетках. Эпителиальные клетки обычно не активируют CD4+ Т-клетки.
3. Какая из следующих функций обеспечивается дифференцированными Т-клетками?
A. Синтез IL-17.
B. Лизис вирус-инфицированных целевых клеток.
C. Помощь для активации и дифференциации В-клеток.
D. Синтез интерферона у.
E. Все вышеперечисленное.
Ответ Е. Цитокиновое окружение Т-клеток принимает участие в их дифференцировке для выполнения различных эффекторных функций. Они включают поддержку для активации и дифференциации В-клеток (через взаимодействие CD154 и CD40 и выработку IL-21), секрецию цитокинов (INF-y), активирующих макрофагов и развитие реакции ГЗТ, стимуляцию воспалительных ответов (IL-17), и лизис вирус-инфицированных клеток.
4. В-клетки минимизируют аутореактивность через процесс, который называется:
A. Переключение изотипов.
B. Ко-стимуляция.
C. Соматическая гипермутация.
D. Рекомбинация.
E. Редактирование рецептора.
Ответ Е. Переключение изотипа, соматическая гипермутация и рекомбинация — процессы, способствующие диверсификации В-клеточного рецептора. Ко-стимуляционные сигналы активации Т-клеток способствуют усилению адаптивного иммунного ответа. Редактирование рецептора меняет последовательность В-клеточного рецептора для предотвращения образования аутореактивных В-клеток.
A. Удаление Т-клеток, распознающих антиген с высокой аффинностью, в тимусе.
B. Регуляторные Т-клетки.
C. Клональное игнорирование.
D. Активация Т-клеток при отсутствии ко-стимуляции.
E. Опосредована всем из вышеперечисленного.
Ответ Е. Механизмы центральной и периферической толерантности включают удаление аутореактивных Т-клеток в тимусе, активацию Т-клеток без ко-стимуляции, клональное игнорирование и контроль за аутореактивными клетками с помощью регуляторных Т-лимфоцитов.