Данная и последующие статьи на сайте рассматривают принципы, лежащие в основе первичной диагностики и лечения пациентов с нарушением полового развития. Исходя из определения, у таких больных имеется недостаток согласованности между различными аспектами пола.
Понятие пола включает в себя хромосомный пол (46,XX, 46,XY и др.), гонадальный и репродуктивный пол (яичники, фаллопиевы трубы, матка/яички, семенные пузырьки, предстательная железа и семявыносящие протоки), генитальный пол (влагалище и клитор/мошонка и пенис) и гендеро-специфическое поведение.
В зависимости от хромосомного пола большинство пациентов можно разделить на не полностью маскулизированных мужчин (46,XY), вирилизированных женщин (46,XX) и пациентов с нарушениями в половых хромосомах, например со смешанной дисгенезией гонад (ранее расстройства полового созревания с набором 46,XY и 46,XX относили к мужскому и женскому псевдогермафродитизму соответственно, однако сейчас эти термины не используются).
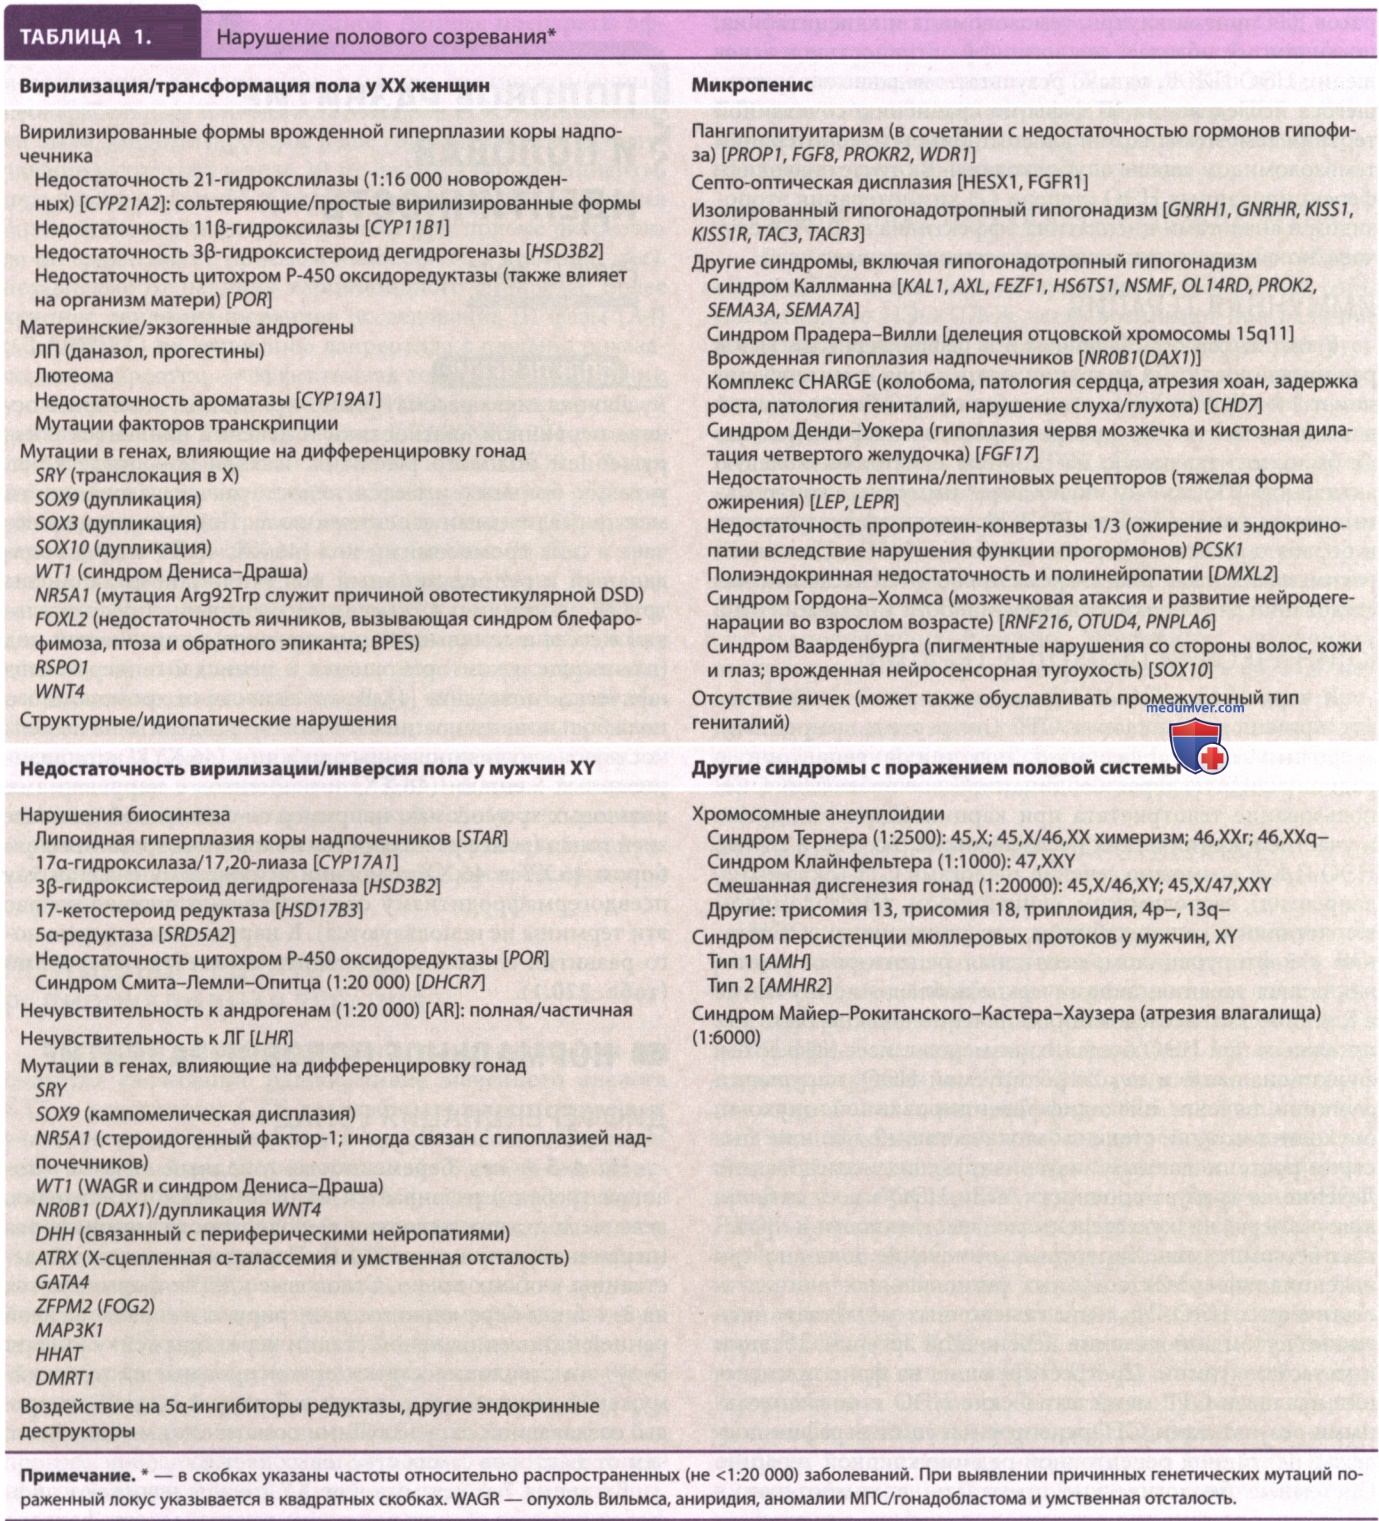
К нарушению сексуального развития способны приводить множество состояний (табл. 1).
а) Дифференциация гонад. На 4-5-й нед беременности гонадный зачаток (половой гребень) развивается из целомического эпителия, лежащего поверх медиальной поверхности мезонефроса (первичной почки; рис. 1). Первичные гонады тождественны у обоих полов.
Рисунок 1. Временная шкала пренатальной дифференциации половой системы мужского и женского плода.
Стволовые клетки формируются на 3-4-й нед беременности и мигрируют в гонады на этой ранней бипотенциальной стадии через брыжейку кишки. Будут ли стволовые клетки ориентированы на женский/мужской гаметогенез, зависит в большей степени от среды, создаваемой окружающими соматическими клетками, чем от факторов самих стволовых клеток.
Во время 7-й нед мужские XY-гонады начинают дифференцироваться под влиянием генетического фактора развития семенников. Сначала происходит экспрессия SRY, ключевого гена Y-хромосомы, контролирующего дифференцировку по мужскому типу, что дает начало развитию клеткам Сертоли за счет повышения экспрессии фактора транскрипции SOX9.
Клетки Сертоли окружают стволовые клетки для формирования тестикулярных хорд, которые питают примордиальные стволовые клетки и направляют их на формирование мужского гаметогенеза. Рекрутинг эндотелиальных клеток способствует созданию специфичной тестикулярной васкуляризации, необходимой для нормального функционирования семенников.
Стероидогенные клетки развиваются из мезонефроса, затем мигрируют в кору надпочечника и гонады на 8-й нед. В семенниках они превращаются в клетки Лейдига, которые вырабатывают тестостерон, требуемый для дальнейшего развития мужской половой системы. В течение I триместра секреция тестостерона находится под контролем главным образом ХГЧ; затем к его действию подключается ЛГ из передней доли гипофиза плода.
Яичники формируются на ~10-й нед. В их развитии активную роль играют сигнальные молекулы WNT4 и RSPO1, которые стабилизируют внутриклеточную экспрессию β-катенина, а также сдерживают экспрессию тестикулярных генов и развитие сосудов. Кроме того, в овариальном развитии принимает участие фактор транскрипции FOXL2.
Стволовые клетки находятся в яичниках всю первую профазу мейоза, начиная с 12-й нед, и продолжают оставаться там вплоть до 7 мес беременности.
б) Развитие мужских и женских внутренних половых путей. Репродуктивный тракт формируется из промежуточной мезодермы. Мужские половые пути берут начало из мезонефроса (вольфов проток), а женские — из парамезонефроса (мюллеров проток) (рис. 2). В норме в эмбрионе присутствует системы обоих протоков.
Рисунок 2. Дифференциация внутренних и внешних половых органов человеческого плода
Структура какого протока будет развиваться, вольфова/мюллерова, зависит от присутствия/отсутствия нормально функционирующих семенников соответственно. Клетки Сертоли секретируют антимюллеров гормон (также называемый мюллеров ингибирующий фактор), что дает начало дифференцировке семенникам. Экспрессия антимюллерова гормона контролируется рядом факторов транскрипции, в частности SOX9. SF1 и WT1 (локус опухоли Вильмса) усиливает транскрипцию, в то время как DAX1 ее подавляет.
Комплексный эффект антимюллерова гормона — регрессия мюллерова протока на 8-12-й нед беременности. В его отсутствие развитие мюллерова протока продолжается, формируются внутренние женские половые органы (фаллопиевы трубы, тело и шейка матки, верхняя часть влагалища).
Онтогенез структур, берущих начало из вольфова протока, включая придаток яичка, семявыносящий проток, семяизвергательный канал и семенные канальцы, требует высокой местной концентрации тестостерона, достигаемой его выработкой клетками Лейдига в семенниках, которая начинает осуществляться на ~7-й нед беременности. В отсутствие тестостерона вольфов проток регрессирует.
Уровень циркулирующего тестостерона недостаточен для развития вольфовых структур. Из этого следует, что в условиях, когда гонады формируются несимметрично (например, при овотестикулярных расстройствах полового развития/смешанной дисгенезии гонад, см. далее), вольфовы структуры также развиваются неравномерно. Для нормального развития вольфовых структур андрогенные рецепторы должны оставаться интактными.
в) Развитие наружных половых органов. Зачатки наружных половых органов также являются бипотентными на ранних сроках беременности и состоят из полового бугорка, половых складок (будущие уретральнолабиальные складки) и полового валика (будущие лабиоскротальные складки) (см. рис. 2). Дифференцировка мужских половых органов осуществляется на 8-14-й нед беременности под влиянием ДГТ, который должен провзаимодействовать с интактными ранее андрогенными рецепторами.
Из генитального бугорка формируется головка полового члена; половые складки объединяются, образуя ствол и уретру, а лабиоскротальные складки (берущие начало из полового валика) становятся мошонкой. В отсутствие андрогенов эти структуры переходят в клитор, малые и большие половые губы соответственно.
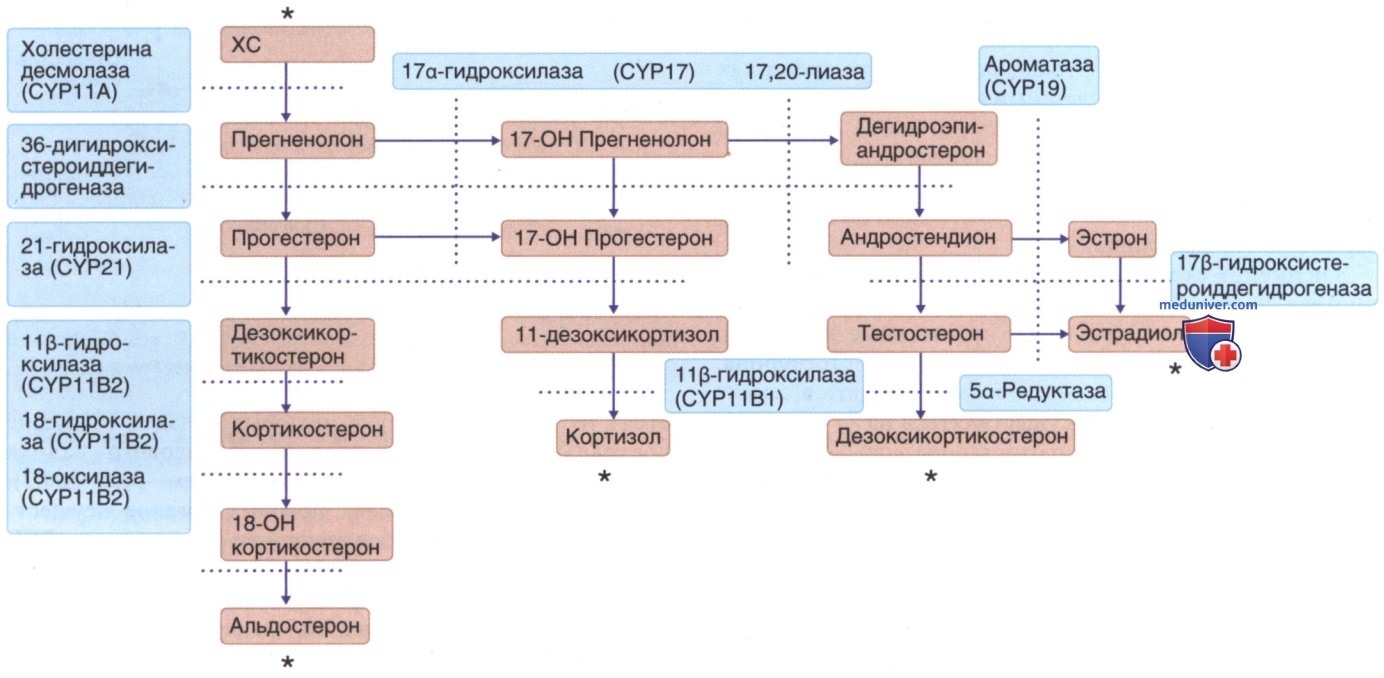
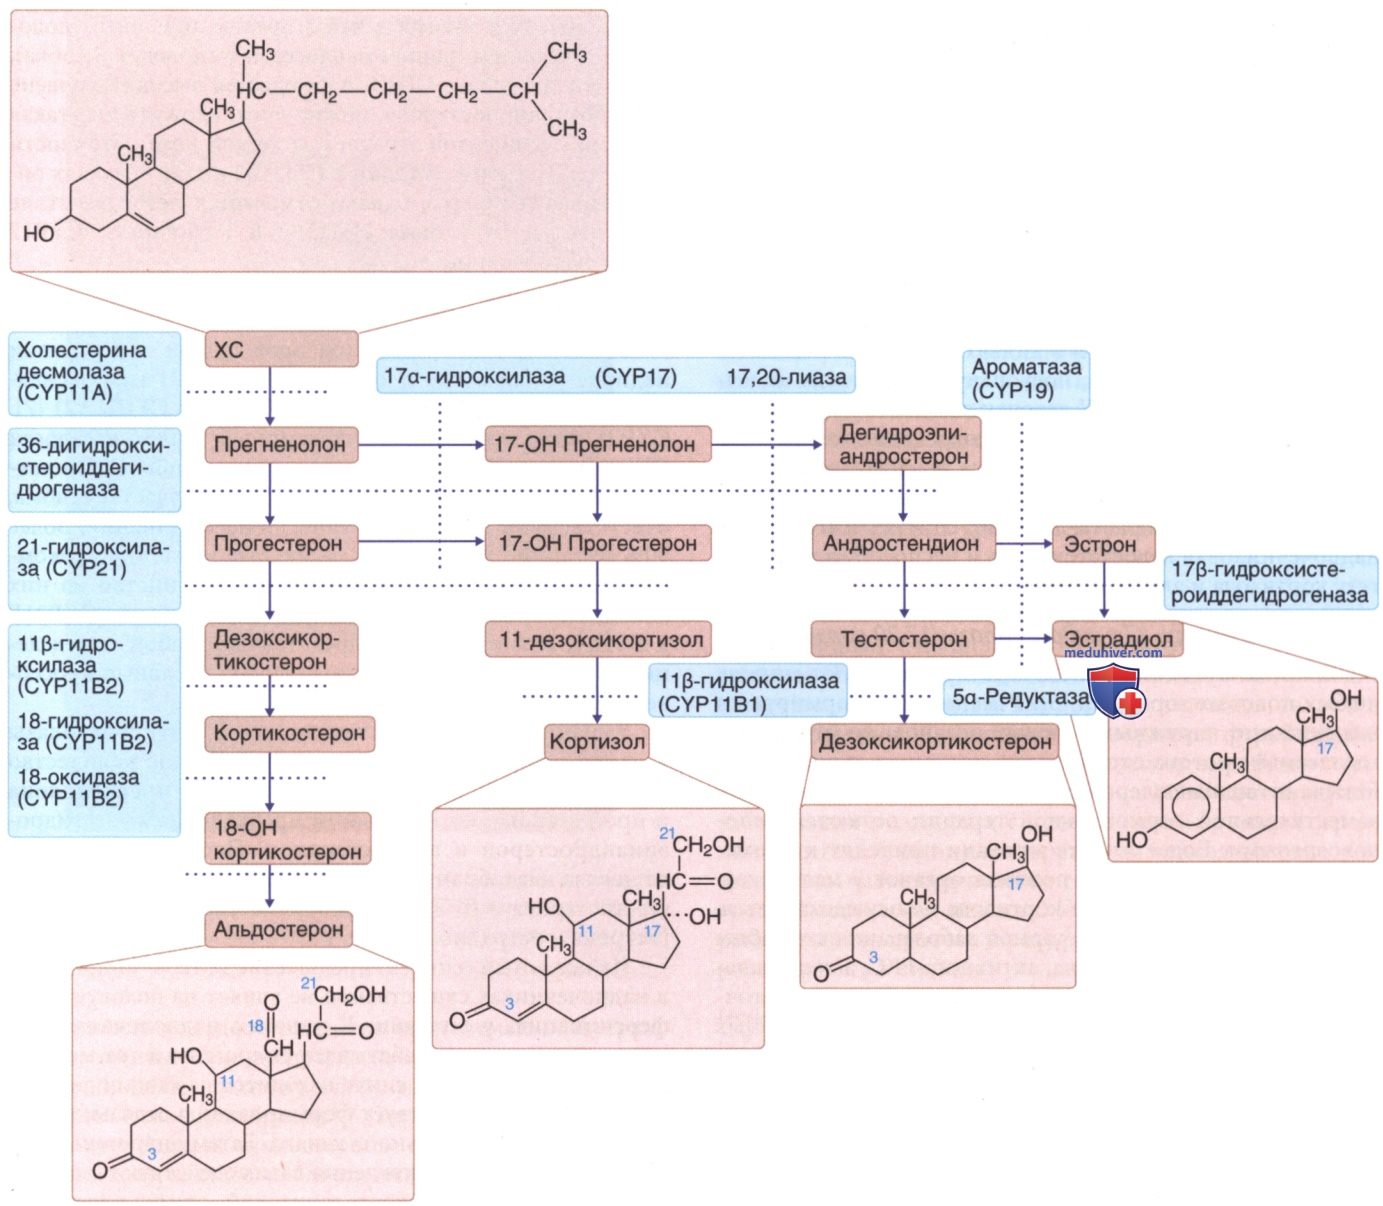
г) Синтез стероидных гормонов в половых железах и надпочечниках в норме. Многие формы гениталий промежуточного типа являются результатом нарушения синтеза стероидов в яичках/коре надпочечников либо дефектов стероидного метаболизма в плаценте/тканях-мишенях (рис. 3 и рис. 4).
Рисунок 3. Синтез стероидов. Этапы синтеза прогестерона и минералокортикоидов (альдостерона), глюкокортикостероидов (кортизола), андрогенов (тестостерона и дигидротестостерона) и эстрогенов (эстрадиола) приведены слева направо. Ферменты, катализирующие каждую реакцию, указаны в блоках. Если реакция осуществляется под действием особого фермента семейства цитохрома Р-450, его системное наименование (СYP и цифровой код) приведено в скобках. CYP11В2 и CYP17 обладают множественной активностью (для расширенной версии схемы, включая химические формулы холестерина и конечных продуктов каждого этапа, см. рис. 4)
Рисунок 4. Синтез стероидов. Этапы синтеза прогестерона и минералокортикоидов (альдостерон), глюкокортикостероидов (кортизол), андрогенов (тестостерон и дигидротестостерон) и эстрогенов (эстрадиол) представлены слева направо. Химическая формула приведена для холестерина и конечного продукта каждого этапа. Ферменты, катализирующие каждую реакцию, указаны в блоках. Если реакция осуществляется под действием особого фермента семейства цитохрома Р-450, его системное наименование (CYP и цифровой код) приведено в скобках. CYP11В2 и CYP17 обладает множественным действием
Синтез стероидов в яичках и надпочечниках начинается с поступления ХС в митохондрии — строго регулируемого процесса в значительной степени контролируемого стероидогенным острым регуляторным белком (StAR). Уровень StAR контролируется в надпочечниках посредством АКТГ, в яичках — посредством ХГЧ в течение I триместра беременности, а также ЛГ на более поздних сроках.
В митохондриях боковая цепь ХС расщепляется в участке между 20 и 22 атомами углерода под действием особого, расщепляющего боковую цепь ХС, фермента (холестерина десмолазы, CYP11A), цитохром Р-450 энзима. Продуктом реакции выступает прегненолон, который транспортируется в эндоплазматический ретикулум. Некоторое количество прегненолона под действием 17α-гидроксилазы (CYP17) превращается в 17-гидроксипрегненолон.
Оставшийся прегненолон и 17-гидроксипрегненолон посредством 3β-гидроксистероид дегидрогеназы (HSD3B2) переходит в 17-гидроксипрогестерон и прогестерон соответственно. Боковая цепь 17-гидроксипрегненолона расщепляется под действием 17,20-лиазы (CYP17) до дегидроэпиандростерона. В присутствии HSD3B2 дегидроэпиандростерон также способен превращаться в андростендион.
Все вышеупомянутые реакции могут осуществляться в коре надпочечников, клетках Лейдига яичек и (после наступления полового созревания) в фолликулах яичников. Реакции, речь о которых пойдет ниже, являются специфическими для каждого вида желез. В коре надпочечников 17-гидроксипрогестерон под действием 21-гидроксилазы (CYP21, также называемом CYP21A2, микросомальным Р-450) превращается в 11-дезоксикортизол, который, в свою очередь, переходит в митохондриях в кортизол в присутствии 11β-гидроксилазы (CYP11B1).
Наряду с этим прогестерон под контролем CYP21 преобразуется в дезоксикортикостерон, впоследствии под действием альдостерон синтазы (CYP11B2) превращающийся в альдостерон.
В клетках Лейдигах в яичках андростендион трансформируется в тестостерон в присутствии 17-кетостероид редуктазы (17β-гидроксистероид дегидрогеназа тип 3 [HSD17B3]); схожая реакция протекает в клетках оболочки яичников посредством 17β-гидроксистероид дегидрогеназы тип 1 (HSD17B1).
В зернистых клетках яичников (после полового созревания) андростендион и тестостерон под действием ароматазы (CYP19) превращаются в эстрон и эстрадиол соответственно. В коже развивающихся внешних мужских половых органов стероид 5а-редуктаза (SRD5A2) трансформирует тестостерон в более потентный андроген, ДГТ.
Плацента также относится к стероид-синтезирующей и стероид-метаболизирующей ткани; в ней содержится большое количество активной стероид сульфатазы, под действием которой дегидроэпиандростерон сульфат надпочечника плода переходит обратно в дегидроэпиандростерон. Затем он за счет 3β-гидроксистероид дигидрогеназы тип 1 (HSD3B1) и ароматазы (CYP19) превращается в андростендион и эстрон соответственно, которые, в свою очередь, трансформируются в эстрадиол под контролем HSD17B1.
Видео эмбриогенез половой системы (раннее эмбриональное развитие)