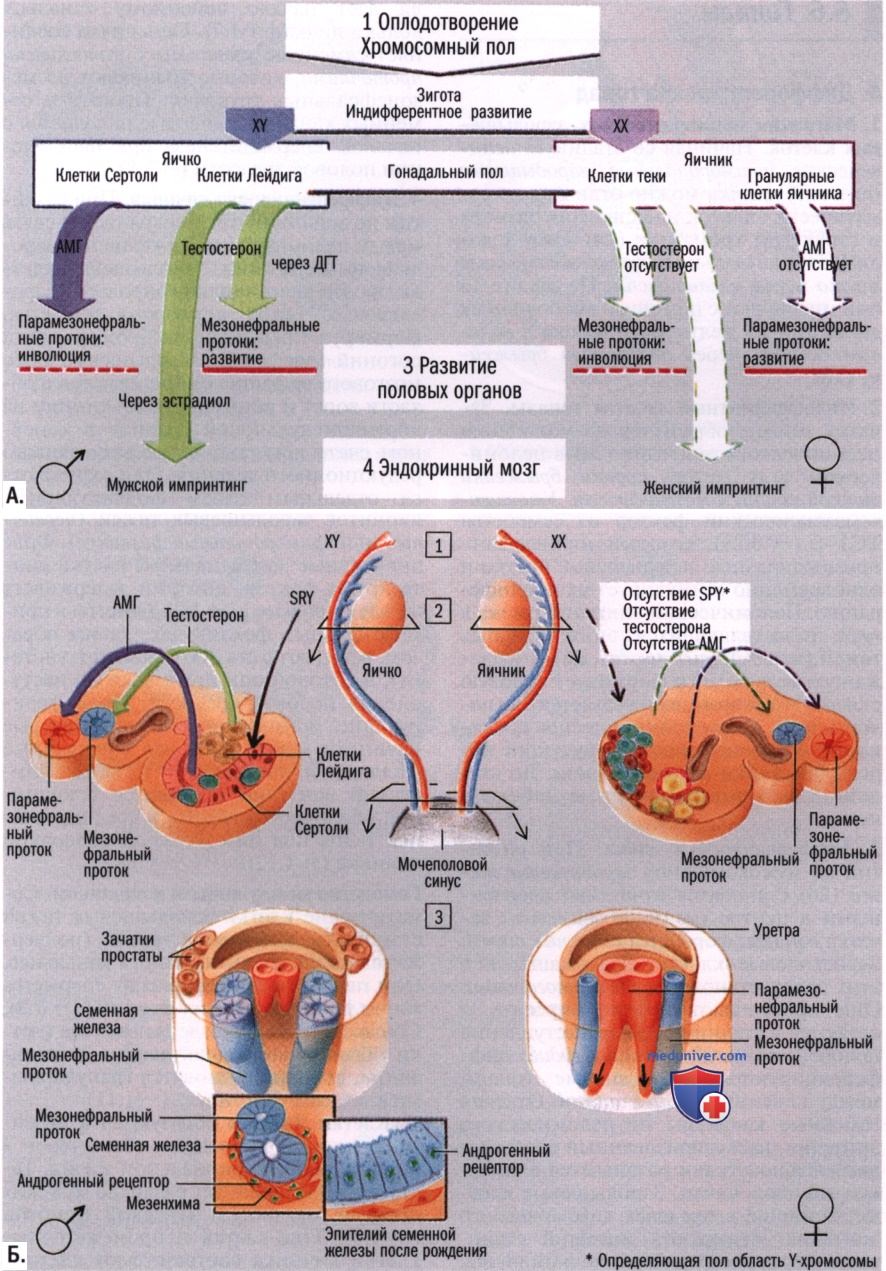
Половая детерминация эмбриона - кратко с точки зрения эмбриологии
А. Стадии половой детерминации. Б. Механизмы регуляции
А. Стадии половой детерминации:
1. Хромосомный пол. Хромосомный пол определяется во время оплодотворения. Он зависит от того, вносит ли гаплоидный сперматозоид Y- или Х-хромосому в новый организм.
2. Гонадальный пол. Если Y-хромосома присутствует, индифферентная гонада на стадии 18 начинает дифференцироваться в яичко. Если Y-хромосомы нет, формируется яичник.
3. Соматический пол. Трансформация индифферентных половых протоков в мужской или женский половые тракты определяется гонадами. Клетки Сертоли яичка производят АМГ, а клетки Лейдига продуцируют тестостерон.
АМГ (антимюллеровский гормон) вызывает инволюцию мюллерова (парамезонефрального) протока. Тестостерон трансформирует мезонефральный проток в придаток яичка и индуцирует развитие мужских половых органов.
В цитоплазме клеток-мишеней фермент 5α-редуктаза редуцирует тестостерон до дигидротестостерона (ДГТ), который связывается с цитоплазматическим андрогенным рецептором и транспортируется как комплекс лиганд-рецепторов к связующим участкам в ядре.
Женские половые органы возникают изначально: при отсутствии тестостерона мезонефральный проток регрессирует, а при отсутствии АМГ парамезонефральные протоки сохраняются и развиваются в маточные трубы, матку и влагалище.
4. Половая детерминация мозга. У млекопитающих мужская или женская детерминация мозга также зависит от тестостерона. Введение экспериментальным животным тестостерона в конце плодного периода приводит к мужскому импринтингу даже в случае женских особей.
Подопытные животные постоянно секретируют пролан А и пролан Б в начале половой зрелости и демонстрируют мужское половое поведение. Без тестостерона пролан А и пролан Б секретируются циклически, и развивается, соответственно, женское половое поведение. В случае мужского импринтинга тестостерон преобразуется нейронами мозга в эстрадиол ферментным комплексом ароматазы.
В нейронах эстрадиол связывается с цитоплазматическим рецептором эстрогена и транспортируется к ядру.
Б. Механизмы регуляции:
1. Экспрессия SRY. Регуляторный ген SRY в Y-хромосоме («определяющая пол область Y-хромосомы») кодирует фактор транскрипции. Он активизируется в течение короткого времени в соматических клетках зародышевых складок, заставляя их дифференцироваться в клетки Сертоли и секретировать АМГ.
2. АМГ и тестостерон. АМГ распространяется из зародышевых складок в прилежащее мезонефральное тело и вызывает дегенерацию парамезонефрального протока. Он действует на мезенхиму, вызывая сокращение клеток, расположенных циркулярно вокруг протока. АМГ — гликопротеин и принадлежит TGF-β-семейству генов.
Тестостерон оказывает трофический эффект на мезонефральный проток; при развитии по женскому пути проток дегенерирует из-за отсутствия тестостерона. (Механизм дегенерации отличен, однако, от наблюдаемого в непосредственно смежном парамезонефральном протоке. В эпителии мезонефрального протока некроз происходит без морфологического участия мезенхимы.)
3. Фазово-специфическое действие тестостерона. Тестостерон также определяет, возникнет ли влагалище или простата и семенная железа. На индифферентной стадии цитоплазматический белок андрогенного рецептора появляется одновременно с эмбриональной мускариновой системой в мезенхимальных клетках при открытии половых протоков в уретру.
Если тестостерон присутствует, зачатки семенных желез растут из мезонефрального протока, а зачатки простаты развиваются из уретры. Без тестостерона половые протоки опускаются каудальнее в виде зачатков влагалища. После рождения андрогенный рецептор исчезает из мезенхимы и проявляется в эпителиальном компоненте других органов. Тестостерон стимулирует дальнейший рост и секреторную функцию желез.
Видео лекция эмбриология человека - сперматогенез, овогенез, этапы эмбириогенеза, оплодотворение, дроблене, гаструляция, органогенез