Введение в эмбриогенез мочеполовой системы - кратко с точки зрения эмбриологии
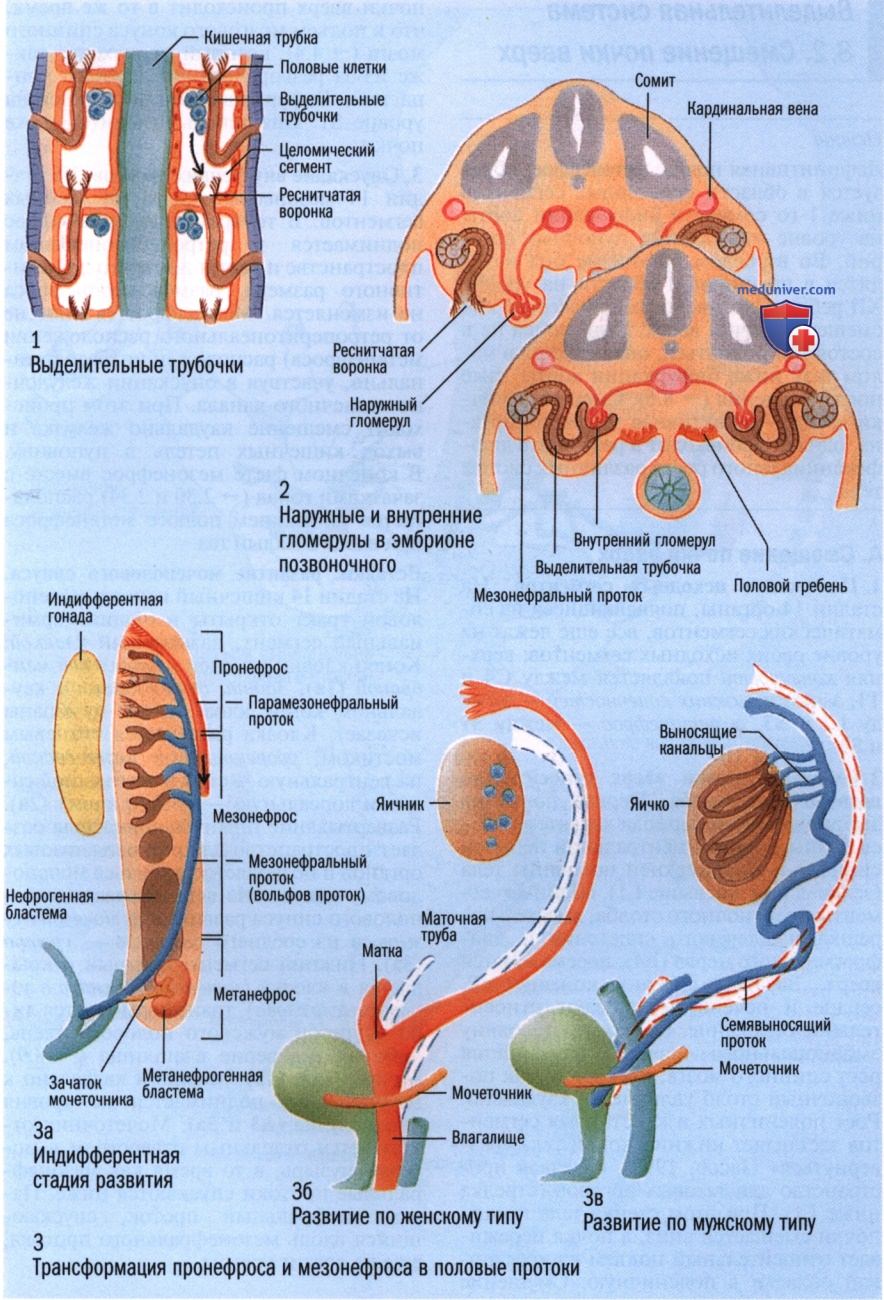
1. Обзор. Использование сегментарных выделительных трубочек в качестве выносящих протоков для зародышевых клеток — филогенетически древний механизм, сохранившийся как у простых, метамерных организмов, таких как земляные черви, так и у млекопитающих.
У млекопитающих маточная труба захватывает яйцо посредством снабженной ресничками воронки, открытой в полость тела. Система транспортировки яйцеклетки через полость тела хотя и примитивна на первый взгляд, однако оптимизирована с наименьшими деталями для каждого вида. Пример — точно настроенная, циклическая гормональная регуляция движения маточной трубы у человека.
Развитие мочевой системы эмбриона происходит посредством пронефроса, мезонефроса и метанефроса — стадий, отражающих филогенетическое развитие этой системы у позвоночных. Пронефрос — первичная сегментарная форма почки. Мезонефрос — доминирующий выделительный орган у рыб. Развитие метанефроса у четвероногих животных связано с удлинением нефрона вокруг петли Генле.
Это позволяет резорбировать воду и концентрировать ее в мочу, что является существенной функцией для жизни на суше.
Отделение метанефроса от мезонефроса сопровождается отделением почек от половых протоков. Принцип строения пронефроса предназначен для женских половых путей, а мезонефроса — для мужских. Разделение происходит путем транслокации мочеточниковых отверстий из мезонефрального (вольфова) протока в мочевой пузырь.
У млекопитающих женского пола нисходящий рост влагалища в конечном счете ведет к полному разделению, тогда как у млекопитающих мужского пола уретра сохраняется как общий выделительный проток. Полное разделение в женских организмах обеспечивает внутреннее оплодотворение и внутриматочное развитие эмбриона.
Термин «парамезонефральный проток» основывается на условии, что у человека пронефрос отсутствует. Тем не менее в человеческом эмбрионе могут наблюдаться пронефральные структуры (Jacob, 1990), и, таким образом, парамезонефральный проток (мюллеров проток) вполне может образоваться из пронефральной трубочки, которая вместо того, чтобы впадать в общий выделительный проток пронефроса и мезонефроса (вольфов проток, мезонефральный проток), опускается к мочеполовому синусу в базальной пластинке последнего.
Нисходящий рост мезонефрального протока к клоаке был впервые описан Каспаром Фридрихом Вольфом в живом эмбрионе курицы в 1759 г. Вольф интерпретировал свое наблюдение как ясное доказательство того, что новые структуры возникают в течение эмбриогенеза (эпигенез). Поэтому он отклонил теорию «гомункулуса» (преформирования), согласно которой эмбрион уже заранее сформировался в сперматозоиде или яйцеклетке и должен просто расти.
В связи с этим он подверг сомнению креационистское убеждение и начал полемику между учеными и креационистами, продолжающуюся по сей день. В своем трактате «История развития половых органов...» (1830) Иоган Мюллер непосредственно не описывал мюллеров проток. Однако он признавал развитие мужских и женских половых протоков из общей индифферентной стадии и общее соответствие этих структур у эмбрионов млекопитающих, включая человека.
2. Смещение почки вверх. Реконструкция мезонефроса, метанефроса и кишечника в истинном масштабе, выполненная Джеймсом Дидушом, художником лаборатории эмбриологии Института Карнеги в Вашингтоне, в работе Shikinami (1926) показывает не только смещение метанефроса вверх, но также и относительные смещения всех крупных систем тела в течение эмбрионального периода.
Это смещение происходит из-за всплесков роста в разное время эмбриогенеза: первоначально мозг и спинной мозг опережают в росте непропорционально большое сердце, что приводит к опусканию сердца. Рост мозга и спинного мозга затем отстает от роста позвоночного столба и осевого скелета. Это приводит к каудальному росту позвоночного столба и опусканию конечностей, так же как подъема мозгового конуса относительно позвоночного столба.
Метанефрос, расположенный ретроперитонеально, поднимается вместе с мозговым конусом. Оба возникают ниже сомита 1 и поднимаются до поясничных сегментов. Бифуркация аорты спускается вместе с позвоночным столбом. Мезонефрос, расположенный интраперитонеально, спускается ниже печени вместе с кишечными петлями.
3. Дифференцировка почки. Ветвление зачатка мочеточника индуцируется метанефрогенической бластемой, а почечных трубочек — зачатком мочеточника, что является классическим примером эпителиального-мезенхимального взаимодействия. Это взаимодействие было изучено в культуре органа путем комбинирования эпителиальных и мезенхимальных компонентов, сосредотачиваясь на вопросе о специфике (ткань хорды может заменить зачаток мочеточника как индуктор) и на вопросе о том, влияет ли прямой клеточный контакт или способная к диффузии молекула на индукцию.
Недавние исследования показывают, что индукция регулируется факторами роста и молекулами клеточной адгезии кадгеринового типа.
4. Пороки развития почки. Дефекты в отделении половых протоков от мочевых путей, филогенетически новый аспект развития, могут вызвать клинически важные синдромы. В течение эмбриональной жизни такие дефекты могут привести к порокам развития метанефроса (аберрация зачатка мочеточника); а после рождения они могут привести к вторичной потере почек вследствие восходящей инфекции (рефлюкс мочи в мочеточник).
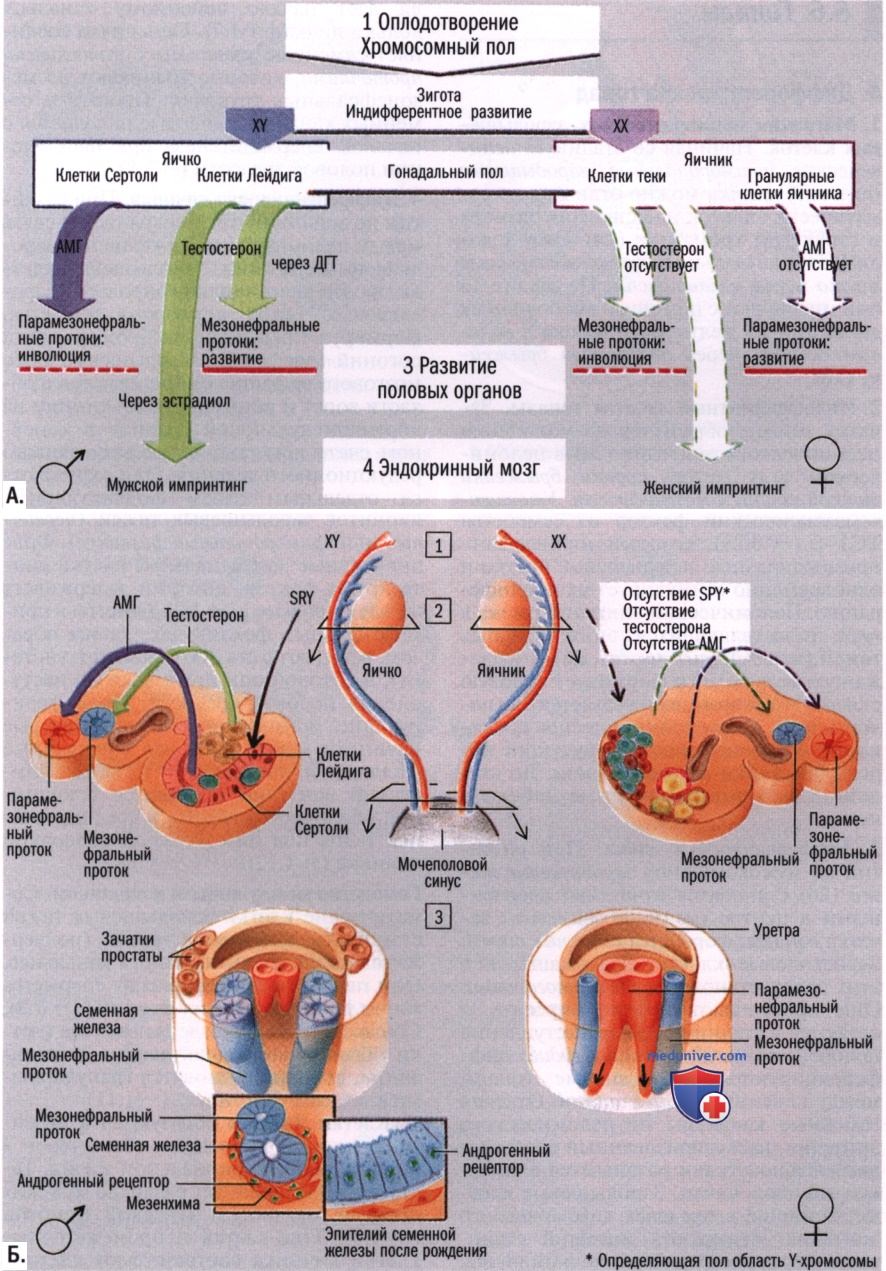
5. Половая детерминация. У млекопитающих регулирующая последовательность в Y-хромосоме (SRY) вызывает каскад половых детерминаций. Доминирование SRY относительно половых гормонов в индукции гонад — специфика млекопитающих, которая очевидно препятствует участию материнских гормонов в детерминации пола эмбриона. У некоторых рыб развитие яичек (молок) может быть индуцировано тестостероном, а яичника — эстрадиолом. У птиц женский пол — гетерогаметный (ZW/ZZ).
Овариальное развитие индуцируется W-хромосомой. Яичко образуется изначально; оно может трансформироваться в яичник путем воздействия эстрадиола.
6. Дифференцировка гонад. Миграция примордиальных зародышевых клеток из желточного мешка до гонад — центральный пункт в зародышевой линии. Термин «зародышевая линия» был предложен в 1880 г. Nussbaum, наблюдавшим миграцию богатых желтком примордиальных зародышевых клеток у низших позвоночных и, таким образом, опровергшим концепцию, по которой половые клетки образуются в специальном «зародышевом эпителии» — утолщенном целомическом эпителии над половым гребнем.
Половой зачаток состоит из сердцевины (medulla) и коры (cortex); сердце-вина дает начало семенным канальцам, в то время как овариальные структуры развиваются в коре. Таким образом, половая железа (ovotestis) с компонентами яичка и яичника истинных гермафродитов имеет внутренние семенные канальцы, окруженные внешними овариальными структурами.
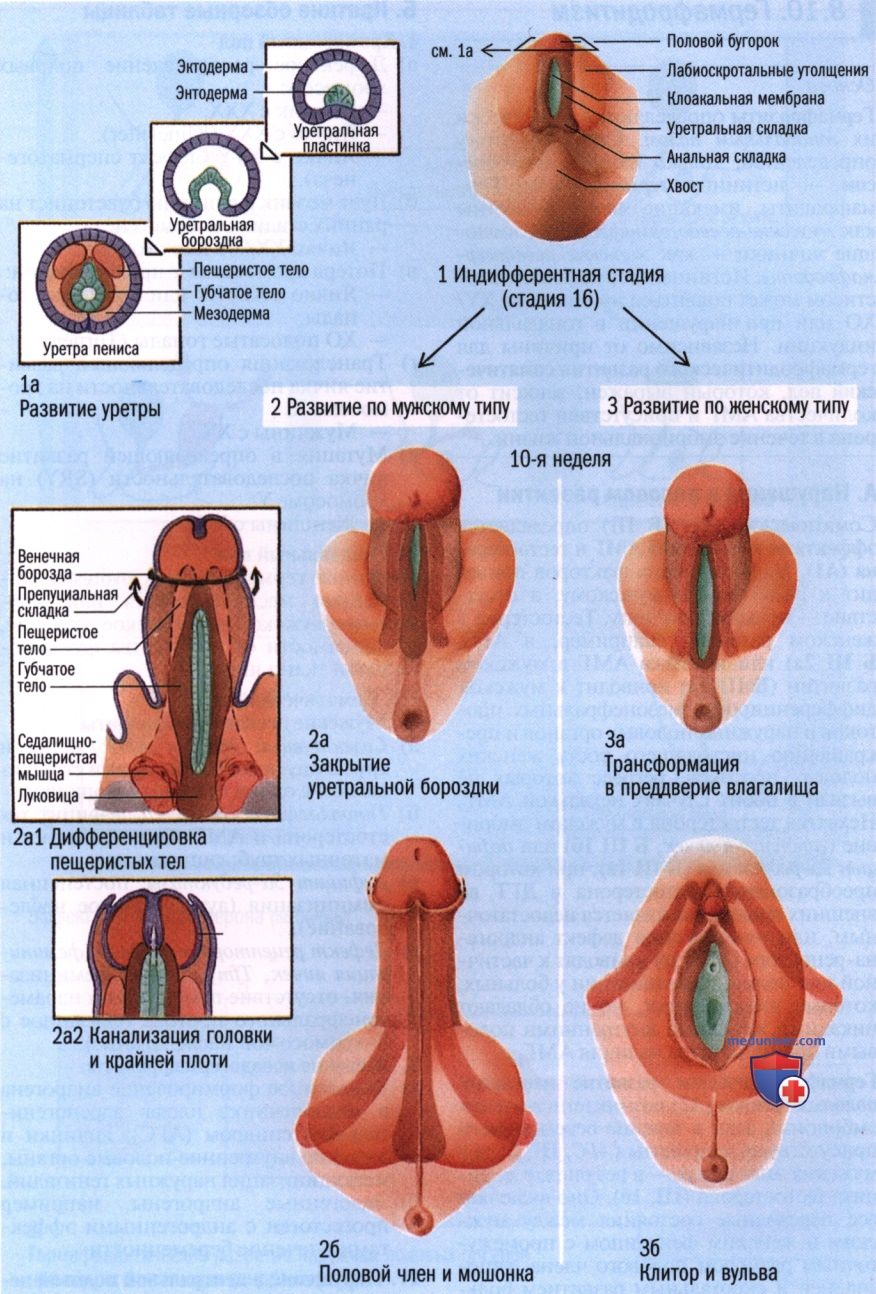
7. Половые протоки. Организация женских гениталий в поперечной плоскости между прямой кишкой и мочевым пузырем напоминает строение индифферентного зачатка. Развитие по мужскому типу определяется опусканием яичка. Оболочки семенного канатика могут развиваться как выпячивания стенки тела в мошонку — выпячивание кожи.
8. Нисходящий рост влагалища. Нисходящий рост влагалища — продолжение каудального роста мезонефрального и парамезонефрального протоков. Дефекты в этом процессе могут привести ко многим порокам развития в этой области, типа добавочного мочеточника.
9. Наружные половые органы. Головка клитора и полового члена развиваются из полового бугорка. Вторичная реканализация головки полового члена заставляет кавернозное тело на верхушке полового бугорка (половой член) отделиться от кавернозных тел полового бугорка (corpora cavernosa) и объединиться вторично с кавернозным телом мочеиспускательных складок (corpus spongiosum).
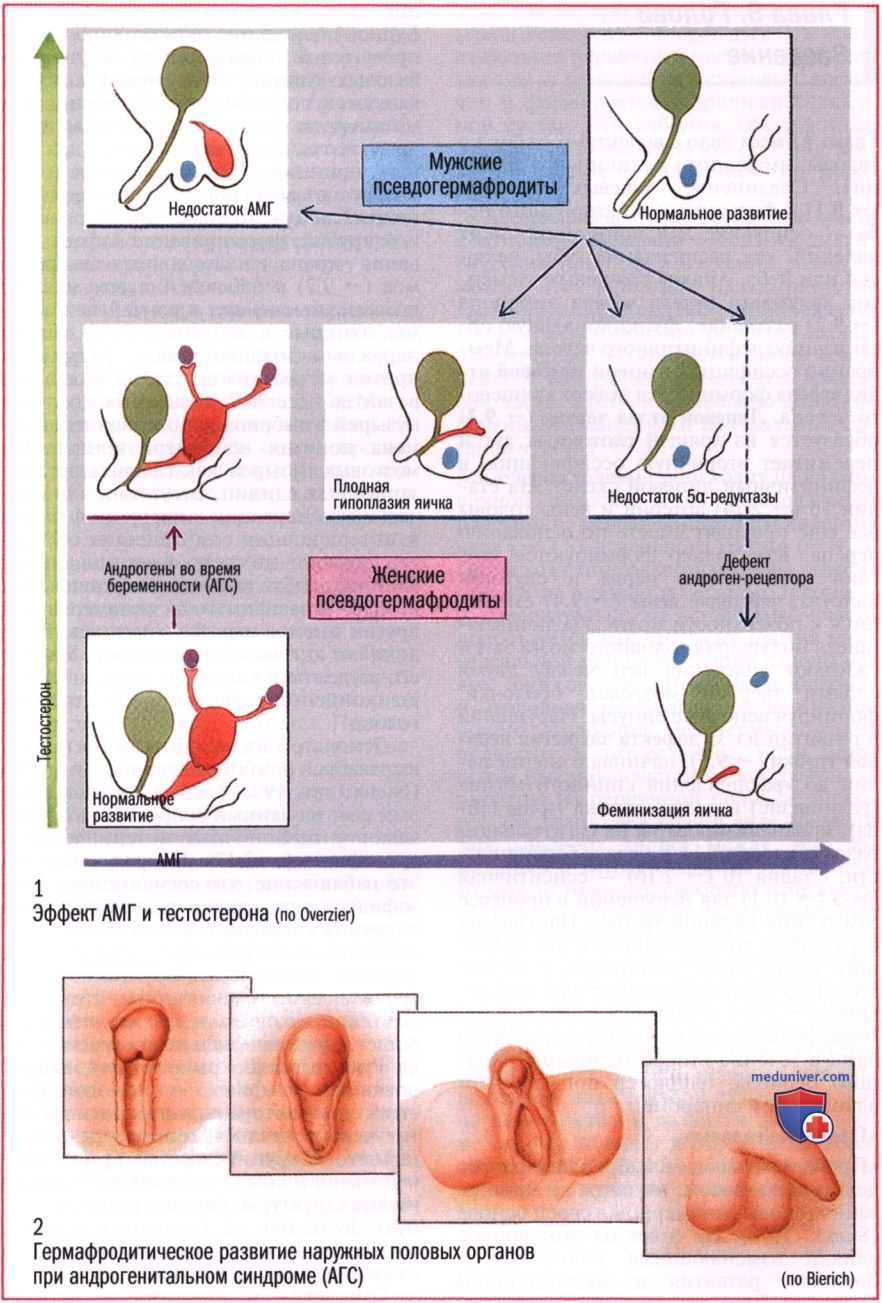
10. Пороки развития половых органов. Половые органы не существенны для жизнеспособности эмбриона. Поэтому все мыслимые расстройства в каскаде детерминации, показанном на рисунке выше, встречаются в виде различных пороков развития у пациентов, потому что они совместимы с жизнью после рождения.