Микробы кишечника (микробиом) как причина изменения обмена веществ (метаболизма) - по руководству США
а) Изменения метаболизма углеводов, липидов и аминокислот. Микробиом кишечника связан с изменениями метаболизма углеводов и липидов. В исследовании, где стерильные мыши получили микробиоту от нормальных мышей, у мышей-реципиентов наблюдалось 60% увеличение жировой массы тела, а также резистентности к инсулину.
Авторы исследования связали данные результаты с увеличением биодоступности моносахаридов и последующей индукцией липогенеза в печени de novo. В печени животных, получивших коррекцию (то есть животных, получивших трансплантацию микробиоты от нормальных мышей), были выявлены повышенные уровни триглицеридов в связи с синтезом жирных кислот de novo.
Гипертрофия и накопление триглицеридов в адипоцитах были связаны с подавлением индуцированного голоданием фактора адипоцитов (Fiaf), циркулирующего ингибитора липопротеинлипазы (LPL), условной микробиотой, что приводило к запасанию жира в белой жировой ткани.
Холин, получаемый из таких продуктов питания, как яйца и красное мясо, необходим для липидного обмена и считается неотъемлемой частью мембран клеток. Исследования как на животных, так и на людях показали, что микробная активность пищевого холина может изменять распределение микробиоты кишечника, что затем влияет на развитие ожирения.
Трансформация пищевого холина в триметиламин-N-оксид связана с сердечно-сосудистыми заболеваниями и атеросклерозом, что предполагает возможную корреляцию между потреблением пищевого холина и микробиотой кишечника, а также более высокую вероятность развития ожирения и метаболического синдрома.
Подобным образом метаболизм незаменимых аминокислот связан с инсулинорезистентностью и ожирением. Гены, функционирующие в данных путях метаболизма, были более активными у стерильных мышей, получивших микробиом кишечника от аналогичных мышей, страдающих ожирением, по сравнению со стерильными мышами, получившими микробиом от аналогичных мышей с нормальной массой тела. Было выявлено влияние на метаболизм незаменимых аминокислот, таких как лизин, фенилаланин, лейцин, изолейцин и валин, а также заменимых аминокислот, включавших тирозин, аргинин и цистеин.
Однако при сравнении с микробиомом мышей-доноров, страдающих ожирением, в микробиоме кишечника, перенесенном от мышей с нормальной массой тела, имелось большее количество генов, отвечающих за распад и ферментацию пищевых полисахаридов.
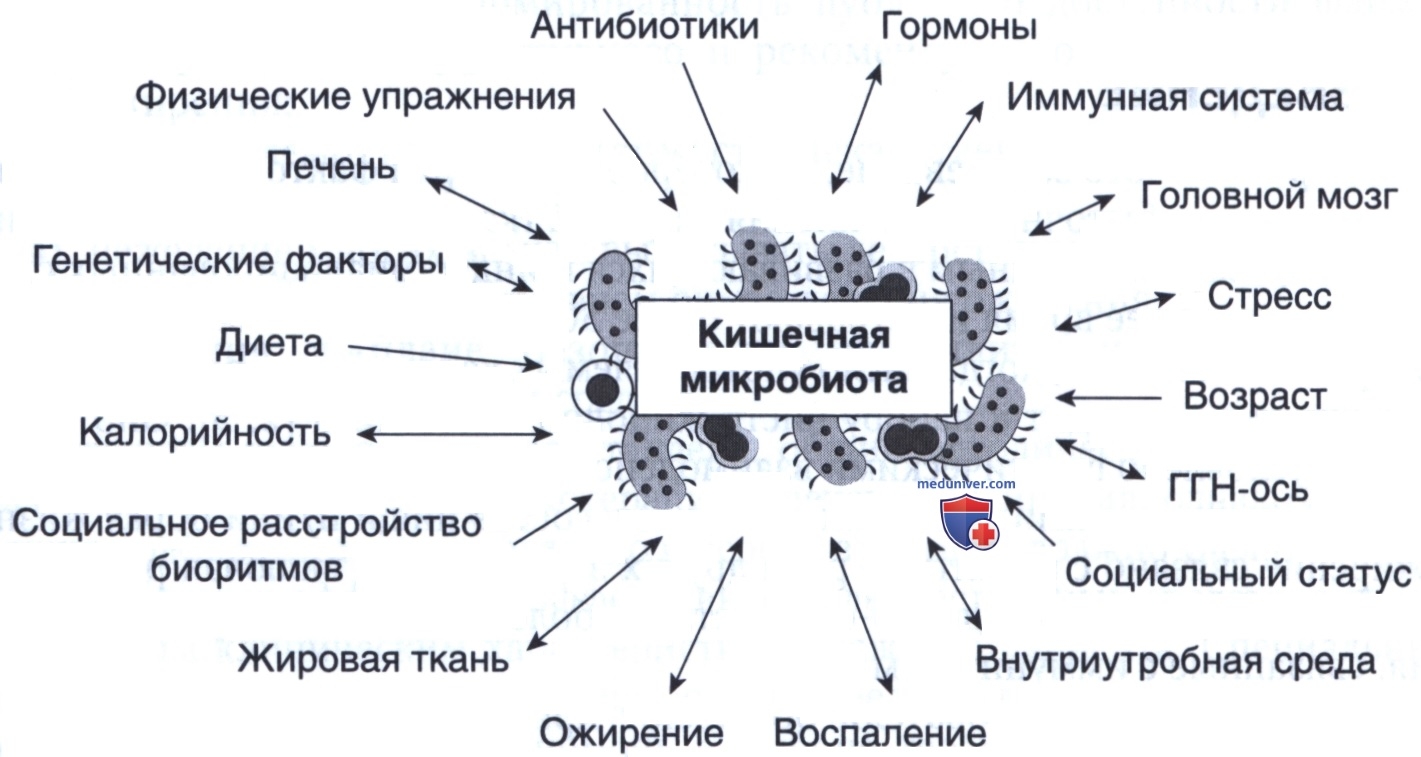
Факторы окружающей среды и двустороннее взаимодействие с системами хозяина формируют микробиом кишечника. Исследования, проведенные в последние десятилетия, показали, что многие факторы окружающей среды, включая рацион питания, воздействие антибактериальных препаратов, число употребляемых калорий и упражнения, могут сильно повлиять на состав микробиома кишечника (как численно, так и функционально). В дополнение к факторам окружающей среды дальнейшее исследование выявило двустороннее взаимодействие между системами органов хозяина и микробиомом кишечника при формировании метаболизма хозяина. ГГН — гипоталамо-гипофизарно-надпочечниковая ось
б) Влияние микробиоты кишечника на липиды плазмы. Дислипидемия означает наличие патологических количеств липидов в крови и коррелирует с ожирением и метаболическим синдромом. Дислипидемия способствует набору веса и метаболическим нарушениям. Обширные исследования показали, что микробиота кишечника оказывает влияние на метаболизм липидов в организме хозяина.
Еще в 1960-х гг. Востман и соавт. предположили, что, хотя стерильные животные лучше абсорбируют холестерин, полученный из пищи, чем обычные животные из группы контроля, у них все же наблюдаются более низкие уровни холестерина в плазме крови.
В последнее время ученые возобновили изучение данного вопроса и установили, то при сравнении стерильных мышей и обычных мышей, получавших рацион с большим количеством жиров, у стерильных мышей отмечалось повышенное выведение липидов с калом и сниженный уровень СЖК в плазме, а также уровней триглицеридов в печени. Нарушение метаболизма холестерина может быть обусловлено снижением трансформации холестерина кишечными бактериями.
В 1930-е гг. ученые описали трансформацию холестерина в насыщенный продукт копростанол посредством действия микроорганизмов в кишечнике. Копростанол трудно абсорбируется в кишечнике человека; обратная связь наблюдается между уровнями холестерина в сыворотке и соотношением копростанола и холестерина в кале человека. Трансформация холестерина в копростанол микробиотой кишечника может приводить к уменьшению захвата холестерина, что способствует холестеринемии.
В дополнение к холестерину при сравнении обычных и стерильных мышей было показано, что микробиота кишечника изменяла многие виды липидов в печени, жировой ткани и сыворотке, при этом наибольшее влияние оказывалось на фосфатидилхолин и триглицериды. Фосфатидилхолин является значимым при изучении роли микробиоты кишечника в сердечно-сосудистых заболеваниях; микробиота кишечника отвечает за превращение фосфатидилхолина и пищевого холина в триметиламин; затем абсорбированный триметиламин метаболизируется до триметиламина оксида, проатеросклеротического метаболита, под действием печеночного фермента флавин-монооксигеназы.
Микробиота кишечника может также участвовать в метаболизме желчных кислот, которые помогают контролировать уровень липидов сыворотки крови. Желчные кислоты считаются особенно эффективными детергентами, стимулирующими растворение и захват пищевых липидов в кишечнике. Желчные кислоты способны избежать попадания в энтерогепатическую циркуляцию и вместо этого подвергнуться метаболизму бактериями в толстой кишке — процессу, отвечающему за наличие более 20 различных вторичных желчных кислот в кале человека.
Когда фермент гидролаза солей желчных кислот расщепляет желчные кислоты, это вызывает изменение уровней холестерина в крови. Деконъюгация желчных кислот позволяет глицину и таурину отделяться от стероидного компонента молекулы, отвечающей за образование СЖК, которые абсорбируются не сразу в отличие от конъюгированных желчных кислот. Это приводит к выведению данных деконъюгированных кислот с калом. Затем холестерин фрагментируется для компенсации переработанных желчных кислот, что приводит к пониженным уровням холестерина сыворотки крови.