а) Строение и физиология. Семейство Kir подразделяется на семь подсемейств (Kir1-Kir7). Подсемейство Kir2 отвечает за IK1 у человека. Подсемейство Kir2 состоит из шести членов (Kir2.1-Kir2.6), из которых только три экспрессируются в миоцитах сердца человека (Kir2.1, Kir2.2 и Kir2.3, кодируемые KCNJ2, KCNJ12 и KCNJ4, соответственно).
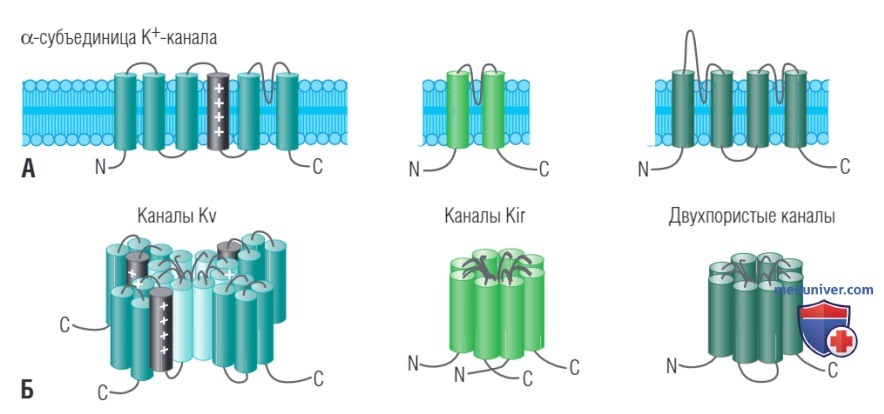
Каналы Kir образуются в результате совместной сборки четырех α-субъединиц (см. рис. 1). Каждая α-субъединица (Kir2.x) IK1 состоит из двух трансмембранных доменов (M1 и М2), соединенных порообразующей Р-петлей (Н5) вместе с цитоплазматическими N- и С-концами. Тетрамерный комплекс каналов Kir2 может быть образован идентичными (гомотетрамеры) или разными (гетеротетрамеры) α-субъединицами.
Рисунок 1. Молекулярное строение сердечных K+-каналов. Указаны аминоконцы (N) и карбоксильные концы (С). (А) Управляемые напряжением (Кv), внутренний выпрямитель (Kir) и двухпористые α-субъединицы представляют собой интегральные мембранные белки с шестью, двумя и четырьмя межмембранными доменами. (Б) Эти α-субъединицы собираются в виде тетрамеров или димеров с образованием К+-селективных пор
Каналы Kir проявляют сильное свойство входящего выпрямления, поскольку проводимость к К+ изменяется при другом Em. Как уже отмечалось, выпрямление описывает свойство ионного канала позволять токам преимущественно течь в одном направлении или ограничивать токи от протекания в другом направлении.
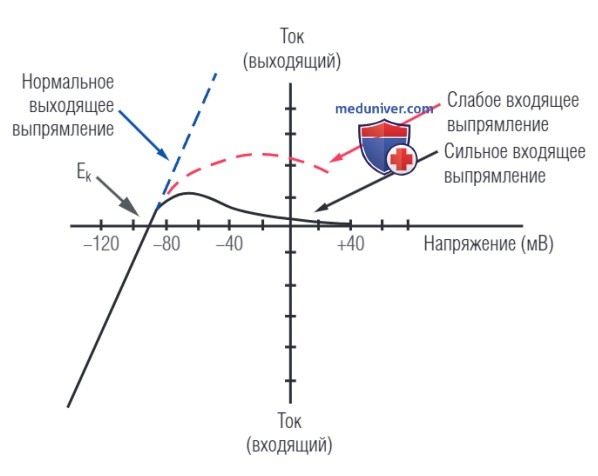
Канал, который подвержен эффекту входящего выпрямления, легче пропускает ток (положительный заряд) в клетку. В случае каналов Kir входящее выпрямление представляет собой сильно зависящее от напряжения снижение выхода К+ (т.е. уменьшение внешнего тока) при деполяризации мембраны, что создает характерную область так называемой отрицательной наклонной проводимости (рис. 2). При Еm, более отрицательном к реверсивному потенциалу К+ (ЕK = -90 мВ), проводимость IK1 намного больше, чем у любого другого тока, и поэтому она удерживает Еm близко к ЕK.
Рисунок 2. Идеализированное соотношение тока и напряжения сильного и слабого каналов Kir. Оба значительно проводят внутренние токи при диастолических мембранных потенциалах, более отрицательных по сравнению с обратным потенциалом для К+ (ЕK = -90 мВ). Однако мощные силы входящего выпрямителя пропускают мало или вообще не пропускают ток при потенциалах плато потенциала действия.
При деполяризации каналы IK1 закрываются почти сразу и таким образом ограничивают выход К+ при мембранных потенциалах более положительных, чем ЕK. Они остаются закрытыми на протяжении всего плато потенциала действия и открываются снова при отрицательных значениях потенциала действия до -20 мВ. Таким образом, каналы IK1 также активно проводят внешний ток при Еm между -40 и -90 мВ. В пределах этого диапазона напряжений внешний IK1 больше при более отрицательных потенциалах. Таким образом, IK1 также вносит свой вклад в терминальную фазу 3 реполяризации.
Поскольку Еm отрицательный к ЕK и не достигается в кардиомиоцитах, только выходящий наружу IK1 играет роль в формировании потенциала действия.
Явление входящего выпрямления каналов IK1 является результатом высокоаффинной и сильно зависящей от напряжения блокады внутренней поры канала (в месте, имеющим кольцо отрицательных зарядов) цитозольными Mg2+, Са2+ и положительно заряженными полиаминами (спермин, спермидин, путресцин), которые закупоривают пору канала при деполяризованных потенциалах, что приводит к снижению внешних токов. Эти вещества вытесняются входящими К+ при гиперполяризованных потенциалах. Данная зависящая от напряжения блокада полиаминами приводит к тому, что ток хорошо проводится только во внутреннем направлении.
Таким образом, каналы IK1 регулируются напряжением, несмотря на отсутствие классического механизма определения напряжения каналов Кv.
Снижение общей проводимости мембраны и ограничение выхода К+ во время потенциала действия с помощью внутреннего выпрямления является важным энергосберегающим механизмом, т.к. восстановление покоящегося состояния мембраны требует притока вытесненных К+ посредством Na+/K+-Hacoca за счет гидролиза АТФ. Уникальным свойством IK, является необычная зависимость выпрямления от внеклеточной концентрации К+.
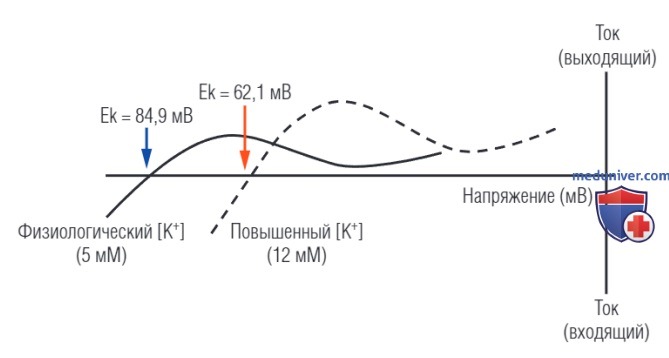
В частности, при увеличении внеклеточного К+ соотношение ток-напряжение IK1 смещается почти параллельно ЕK и приводит к явлению кроссовера (рис. 3). Одним из важных следствий такого поведения является то, что при потенциалах, положительных к кроссоверу, проводимость К+ увеличивается, а не уменьшается. Это противоречит ожиданию деполяризации клеточной мембраны, основанной на уменьшении движущей силы для К+ (из-за менее отрицательного ЕK) в результате повышенной внеклеточной концентрации К+.
Рисунок 3. Соотношение тока и напряжения для каналов Kir при двух различных внеклеточных концентрациях К+. ЕK рассчитывается по уравнению Нернста с использованием внеклеточного [К+] в количестве 5 или 12 мМ и внутриклеточного [К+].
в) Функция. IK1 устанавливает и стабилизирует Еm и регулирует клеточную возбудимость миоцитов предсердий и желудочков во время фазы 4. Он также вносит свой вклад в терминальную часть фазы 3 реполяризации. В дополнение к вкладу IK1 в формировании волны Т на ЭКГ, данные свидетельствуют о том, что волна U сильно модулируется IK1.
Каналы IK1 при деполяризации закрываются. Сильное внутреннее выпрямление IK1 ограничивает внешний ток во время положительной фазы потенциала действия (фазы 0, 1 и 2), таким образом позволяя реализоваться деполяризации мембраны после активации Na+-канала, замедляя реполяризацию мембраны и помогая поддерживать длительность потенциал действия сердца. Это также дает энергетическую эффективность в создании потенциала действия.
Плотность IK1 в миоцитах желудочков значительно выше, чем в миоцитах предсердий, что объясняет более выраженную фазу реполяризации в желудочках (где более выраженный IK1 играет большую роль в ускорении терминальной части реполяризации) и менее выраженную фазу в предсердиях. Более высокая экспрессия канала IK1 в желудочке защищает клетку желудочка от активности водителя ритма. Напротив, IK1 почти отсутствует в клетках синусового и атриовентрикулярного узлов, что позволяет сильнее деполяризовать диастолические потенциалы покоя по сравнению с миоцитами предсердий и желудочков.
Кроме того, наблюдалась зависимая от локализации экспрессия специфических изоформ Kir2 (Kir2.1, Kir2.2, Kir2.3).
Быстрая частота сердечных сокращений увеличивает концентрацию К+ в узком межклеточном пространстве до нескольких миллимолей (вторично по отношению к выходу К+ через IKr и IKs во время повторяющихся потенциалов действия) и увеличивает IK1, что приводит к сокращению продолжительности потенциала действия, что может компенсировать способность блокаторов IKr продлевать продолжительность потенциала действия в этих условиях.
г) Регуляция. β-адренергическая стимуляция ингибирует в миоцитах желудочков через ПКА-опосредованное фосфорилирование канала. В миоцитах предсердий al-адренергическая стимуляция снижает IK1 через ПКА-зависимые пути.
Сверхэкспрессия Kir2 увеличивает плотность IK1, сокращает длительность потенциала действия и гиперполяризует покоящийся Еm. Напротив, подавление IK1 увеличивает продолжительность потенциала действия и нарушает удерживание в определенном диапазоне покоящегося Еm, тем самым ускоряя спонтанную кардиостимуляторную активность предсердных и желудочковых кардиомиоцитов.
Фосфолипид фосфатидилинозитол 4,5-бисфосфат (PIP2) усиливает IK1 и модулирует различные свойства каналов Kir2, например, чувствительность к pH. Кроме того, повышенный уровень холестерина в мембране снижает IK1. Различные внутриклеточные катионы могут блокировать каналы Kir2, такие как Са2+ и Н+ (т.е. внутриклеточный pH).
д) Фармакология. Барий (Ва2+) является мощным блокатором IK1. Блокирование IK1 внеклеточным Ва2+ приводит к деполяризации потенциала покоя и пролонгации слабого потенциала действия. Терикалант и хлорохин (противомалярийный препарат) являются сильными ингибиторами IK1, но также могут блокировать другие К+-каналы.
Селективные блокаторы каналов Kir2 доступны только в экспериментальных целях. Блокаторы IK1 продлевают длительность потенциала действия предсердий и желудочков и эффективны против различных типов экспериментальной желудочковой тахикардии, реализующейся по механизму обратного входа. Кроме того, блокаторы IK1 вызывают деполяризацию мембран, эффект, который замедляет скорость проводимости в результате зависящей от напряжения инактивации Na+-каналов и продлевает интервал QT; оба действия являются проаритмическими.
Агонисты IK1 включают флекаинид, арахидоновую кислоту тенидап (противовоспалительное средство) и закоприд (желудочно-кишечное прокинетическое средство).
е) Наследственные каналопатии:
1. Синдром удлиненного интервала QT. Мутации KCNJ2 (кодирующие Kir2.1), приводящие к доминирующим негативным эффектам на ток ионов, были связаны с синдромом Андерсена-Тавила (LQT7), редким аутосомно-доминантным заболеванием, характеризующимся триадой симптомов: аномалиями развития скелета, периодическим параличом и желудочковыми аритмиями (каналы Kir2.1 экспрессируются преимущественно в скелетных мышцах, сердце и головном мозге).
По сравнению с другими типами LQTS, LQT7 ассоциируется с более выраженными волнами U, более мягкой степенью удлинения интервала QT, а также меньшим риском появления злокачественных желудочковых аритмий.
Нарушение функции IK1 потенциально может привести к удлинению терминальной фазы реполяризации и интервала QT, что может предрасполагать к появлению ранних постдеполяризаций и задержанных постдеполяризаций, опосредующих желудочковые аритмии. Однако, в отличие от других типов LQTS, в которых постдеполяризация возникает в результате реактивации Са2+-каналов L-типа, ранние постдеполяризации и задержанные постдеполяризации, генерируемые при LQT7, вероятно, вторичны по отношению к деполяризации, вызванной Na+/Са2+-обменником.
Считается, что различное происхождение триггерного импульса ответственно за наблюдаемое расхождение в аритмогенезе и отличающихся клинических особенностей различных типов LQTS. Кроме того, вполне вероятно, что удлинение длительности потенциала действия при LQT7 однородно по всей стенке желудочка (т.е. трансмуральная дисперсия реполяризации менее заметна, чем при других типах LQTS), и это потенциально может объяснить низкую частоту развития тахикардии torsades de pointes.
2. Катехоламинергическая полиморфная желудочковая тахикардия. Мутации потери функции KCNJ2 были обнаружены у пациентов с катехоламинергической полиморфной желудочковой тахикардией (КПЖТ) и могут представлять собой фенокопии КПЖТ. У этих пациентов были выявлены выраженные волны LJ на ЭКГ, желудочковая эктопия и полиморфная желудочковая тахикардия, но не было выявлено дисморфических признаков или аномалий скелетных мышц.
Уменьшение IK1 может вызвать аритмию, позволяя внутренним токам, которые больше не уравновешиваются сильным внешним IK1, постепенно деполяризовать Em во время фазы 4. Деполяризация мембраны во время фазы 4 индуцирует аритмию, способствуя спонтанной возбудимости.
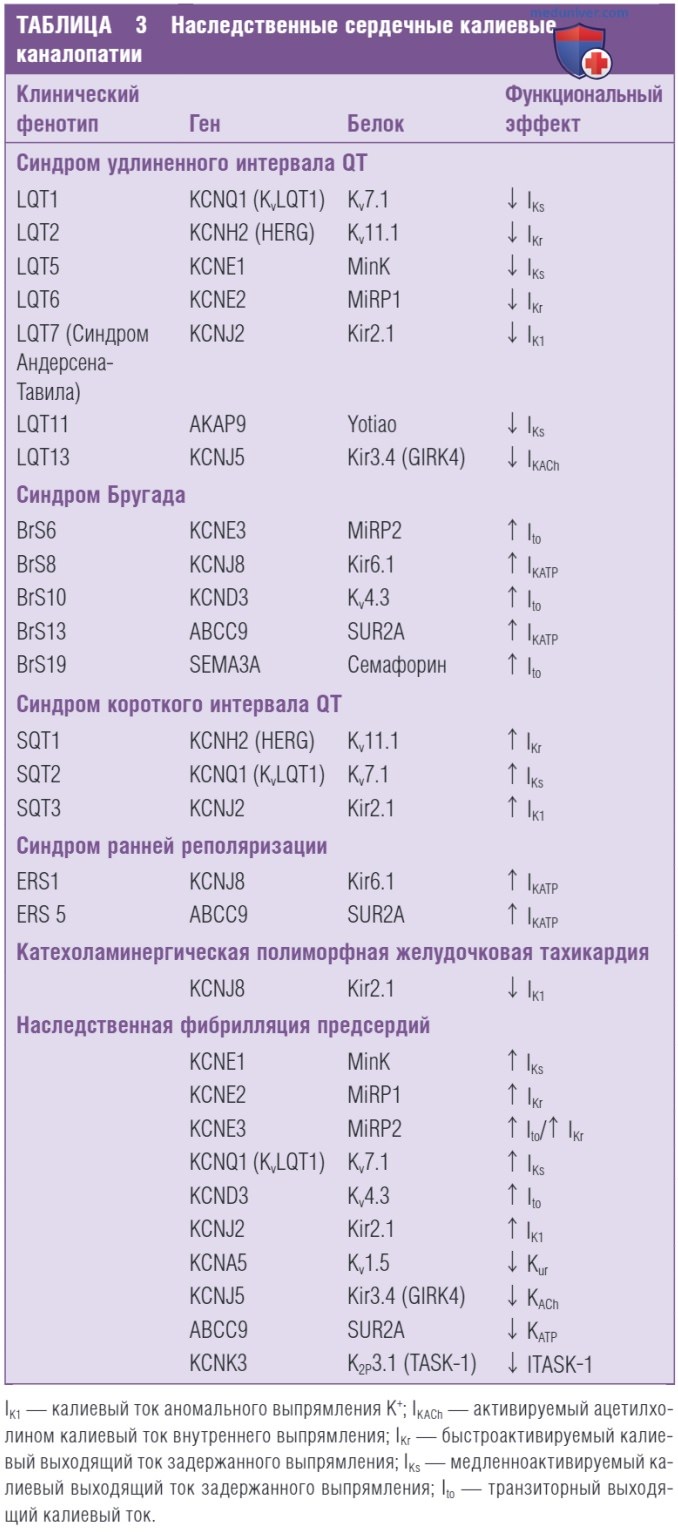
3. Синдром короткого интервала QT. Мутация усиления функции KCNJ2 была идентифицирована и связана с SQTS типа 3 (SQT3) (см. табл. 3). Мутация вызывает значительное увеличение внешнего IK1 при потенциалах от -75 мВ до -45 мВ, что приводит к ускорению терминальной фазы реполяризации и, как следствие, к укорочению длительности потенциала действия и интервала QT и асимметричным волнам Т на ЭКГ с быстрой терминальной фазой.
4. Наследственная фибрилляция предсердий. Мутация усиления функции KCNJ2 была связана с наследсвтенной фибрилляцией предсердий. Пораженные элементы имели нормальные интервалы QT. Предполагалось, что эта мутация вызывает фибрилляцию предсердий путем сокращения длительности потенциала действия предсердий и облегчения повторного вхождения волн возбуждения.
ж) Приобретенные заболевания. IK1 понижается у пациентов с тяжелой сердечной недостаточностью и кардиомиопатией. Сниженная активность регуляции IK1 вызывает деполяризацию мембран и увеличение длительности потенциала действия, а также может способствовать спонтанной возбудимости и вызывать аритмию (как раннюю постдеполяризацию, так и задержанную постдеполяризацию).
Миоциты желудочков у пациентов с идиопатической дилатационной кардиомиопатией демонстрируют сниженную активность каналов, большую продолжительность потенциала действия и более низкий мембранный потенциал покоя (Еm), чем у пациентов с ишемической кардиомиопатией. Повышенная активность регуляции IK1 может наблюдаться при гипертрофии желудочков.
Предсердный IK1 повышается у пациентов с хронической фибрилляцией предсердий, что приводит к более отрицательным потенциалам покоя и, вместе со снижением ICaL объясняет укорочение потенциала действия при фибрилляции предсердий.