а) Строение и физиология. АТФ-чувствительные К+-каналы (каналы КATP) сердца, также называемые аденозиндифосфат [АДФ]-активированными К+-каналами, формируются уникальной комбинацией двух разнородных белков: четырех гюрообразующих α-субъединиц (Kir6) и четырех регуляторных ABC-белков (SUR субъединиц).
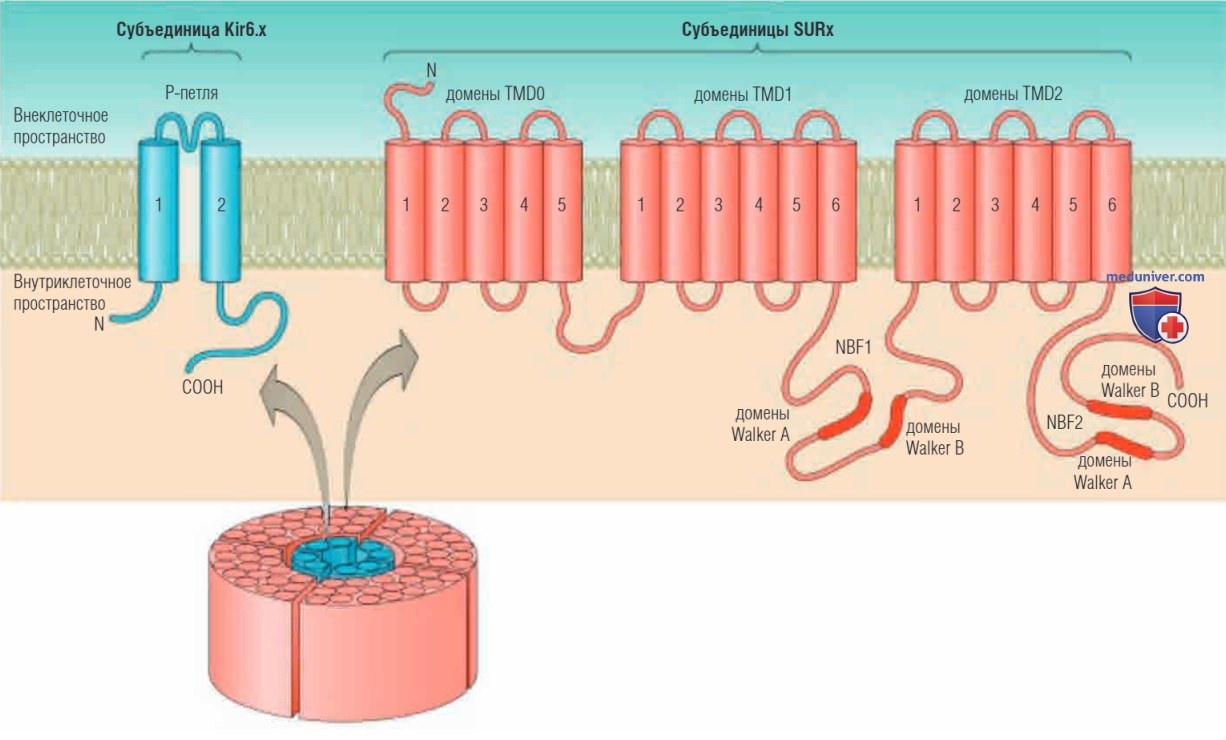
Два гена Kir6: KCNJ8 (кодирующий Kir6.1) и KCNJ11 (кодирующий Kir6.2), а также 2 гена SUR, АВСС8 (кодирующий SUR1) и АВСС9 (кодирующий SUR2) кодируют субъединицы КATP млекопитающих (рис. 1). Альтернативный сплайсинг продуктов мРНК приводит к появлению множества вариантов SUR (например, SUR2A и SUR2B), которые придают каналам КATP различные функциональные и фармакологические свойства.
Рисунок 1. Мембранная топология и структурная организация субъединиц чувствительного к аденозинтрифосфату К+-канала. Канал состоит из четырех членов подсемейства Kir6 (Kir6.1 и/или Kir6.2) и четырех членов семейства рецепторов сульфонилмочевины (SUR1 и/или SUR2; или варианты соединения этих субъединиц). Субъединица Kir6.x имеет две области, охватывающие мембраны (М1 и М2), с внутриклеточными NH2 и СООН-концами. Субъединицы SURx имеют 17 трансмембранных областей, расположенных в трех доменах: TMDO, TMD1 и TMD2. Внутриклеточная нуклеотидная связывающая складка (NBF1) с доменами Walker А и Walker В располагается между TMD1 и TMD2. Вторая внутриклеточная нуклеотидная связывающая складка (NBF2) находится на СООН-конце белка. Считается, что NBF1 связывает (и гидролизует) Mg-АТФ, тогда как Mg-АДФ связывается в основном с NBF2 для стимулирования активности канала. АТФ блокирует канал путем прямого связывания с внутриклеточными доменами Kir6.x, тогда как комплексы нуклеотидов Mg2+ регулируют активность канала путем связывания с внутриклеточными нуклеотидными связывающими складками (NBF1 и NBF2) субъединиц SURx. АДФ — аденозиндифосфат; АТФ — аденозинтрифосфат
Каналы КATP встречаются практически во всех видах сердечной ткани и в меньшей степени в гладких мышцах сосудов. Современные данные свидетельствуют о том, что каналы КATP в миоцитах желудочков состоят в основном из изоформ Kir6.2 и SUR2A, тогда как каналы КATP в миоцитах предсердий состоят в основном из субъединиц Kir6.2 и SUR1. Субъединицы Kir6.1 могут способствовать образованию каналов КATP в клетках волокон Пуркинье, в клетках синоатриального и атриовентрикулярного узлов.
Субъединицы Kir6 имеют два трансмембранных домена (M1, М2), соединенных внеклеточной петлей, которая генерирует узкую часть поры и контролирует ионную селективность, и большие цитоплазматические домены, которые обеспечивают сайты связывания АТФ.
Семейство АТФ-связывающих кассетных транспортеров состоит из семи подсемейств (от АВСА до ABCG) с 48 членами подсемейства. Большинство белков АВС транспортируют различные молекулы через клеточные мембраны за счет гидролиза АТФ. Субъединицы SUR значительно крупнее субъединиц Kir6 и имеют 17 трансмембранных областей, расположенных в трех трансмембранных доменах (TMDO, TMD1 и TMD2).
TDM1 и TMD2 содержат по шесть трансмембранных сегментов и нуклеотид-связывающих доменов на цитоплазматической стороне (известные как нуклеотид-связывающие складки [NBFs], которые содержат характерные мотивы Walker А и В). TMD0 содержит пять трансмембранных сегментов, а также имеет решающее значение для транспортировки и стробирования канального комплекса. Субъединицы SUR обеспечивают нуклеотид-о-посредованную регуляцию КATP и играют важное значение в его роли сенсора метаболического статуса.
Субъединицы SUR2A также чувствительны к сульфонилмочевинам, Mg-АТФ, Mg-АДФ и некоторым другим фармакологическим открывателям каналов. Кроме того, субъединица SUR2A содержит АТФазу для гидролиза АТФ, которая блокирует проникновение K+ через α-субъединицу Kir6.2. Субъединицы Kir6 уникальны среди субъединиц К+-канала, поскольку наличие вспомогательной субъединицы SUR является абсолютным требованием для формирования функционального канала. Детали физической связи между субъединицами Kir6 и SUR остаются неясными.
КATP — это активируемый рецептором слабый внутренний выпрямительный канал, регулируемый внутриклеточными концентрациями АТФ и АДФ. Увеличение отношения АТФ к АДФ закрывает канал, а уменьшение открывает его, связывая метаболическое состояние с клеточным Em. Кроме того, физиологические уровни внутриклеточных Na+ и Mg2+, а также естественных внутриклеточных полиаминов (например, спермина, спермидина и путресцина) способствуют внутреннему выпрямлению канала КATP.
б) Функция. IKATP ингибируется внутриклеточным АТФ и активируется Mg-АДФ, так что активность канала регулируется соотношением АТФ/АДФ, связывая клеточный метаболизм с Em. Реагируя на уровень цитоплазматических нуклеотидов, активность канала КATP обеспечивает уникальную связь между клеточной энергетикой и электрической возбудимостью и, следовательно, сократительной способностью.
В нормальных метаболических условиях сарколеммальные каналы КATP преимущественно закрыты (ингибируются внутриклеточным АТФ) и не вносят существенного вклада в потенциал сердечного действия, Еm покоя или клеточную возбудимость. Однако при воздействии сильного метаболического стресса, такого как аноксия, метаболическое торможение или ишемия, каналы КАТР активируются (вторично по отношению к снижению внутриклеточного уровня АТФ) и проводят наружу реполяризующий ток K+ (IKATP), что приводит к сокращению продолжительности потенциала действия и уменьшению притока Са2+ через Са2+-каналы L-типа.
Снижая поступление Са2+, IKATP угнетает сократительную способность мышц, тем самым экономя дефицитные энергетические ресурсы и предотврщая влияние повреждающих эффектов внутриклеточной перегрузки Са2+.
Соответственно, каналы KATP сердца действуют как мембранные метаболические сенсоры, которые принимают энергетические сигналы клеточного стресса и обеспечивают адаптивный ответ на острый стресс, способный контролировать продолжительность потенциала сердечного действия и связанные с ним клеточные функции, а также регулировать клеточную возбудимость в соответствии с потребностями.
Кроме того, активация IKATP играет важную роль в ишемическом прекондиционировании; короткие периоды ишемии миокарда обеспечивают защиту от последующей длительной ишемии, уменьшая размер поврежденной области после инфаркта миокарда, тяжесть оглушения миокарда и риск сердечных аритмий.
Экспериментальные исследования показали, что открыватели каналов КATP воспроизводят эффекты прекондиционирования, в то время как блокаторы IKATP предотвращают защитные эффекты ишемического прекондиционирования. Роль сарколеммальных каналов IKATP в ишемическом прекондиционировании по сравнению с митохондриальными каналами IKATP (которые, по-видимому, фармакологически отличаются от сарколеммальных каналов IKATP) активно обсуждается.
С другой стороны, активация IKATP также приводит к сокращению длительности потенциала действия, накоплению внеклеточного К+, деполяризации мембран и замедлению скорости проводимости — эффектам, которые делают сердце в момент ишемии уязвимым для реципрокной аритмии.
Каналы КATP были дополнительно вовлечены в адаптивный сердечный ответ на хроническую патофизиологическую гемодинамическую нагрузку. Дефицит канала КATP влияет на структурное ремоделирование, делает сердце уязвимым к Са2+-зависимой дезадаптации и предрасполагает к сердечной недостаточности.
В сосудистой сети активация каналов КATP приводит к гиперполяризации мембранного потенциала, что приводит к ингибированию чувствительных к напряжению Са2+-каналов и снижению внутриклеточного Са2+ с последующей вазодилатацией.
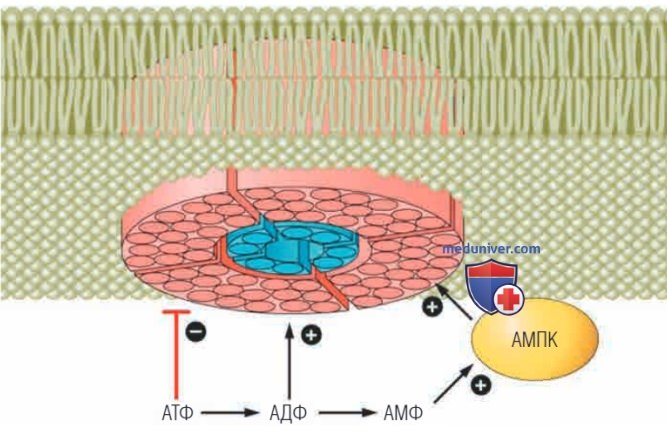
в) Регуляция. АТФ (с Mg2+ или без него) ингибирует IKATP, взаимодействуя непосредственно с Kir6.2 и стабилизируя закрытое состояние канала. Кроме того, в присутствии Mg2+, АТФ и АДФ могут активировать канал через взаимодействие с субъединицей SUR2A. Ингибирование связыванием АТФ с Kir6.2 и активация Mg-нуклеотидами является основным физиологическим регуляторным механизмом (рис. 2).
Рисунок 2. Регуляция АТФ-чувствительных К+-каналов (КATP) внутриклеточными нуклеотидами. Канал КATP состоит из четырех субъединиц Kir6.x и четырех субъединиц SURx (соответственно, синего и оранжевого цвета). Активность каналов ингибируется внутриклеточной аденозинтрифосфатазой (АТФ). В присутствии магния (Мд)-АТФ аденозиндифосфат (АДФ) стимулирует открытие канала КATP, так что канал регулируется соотношением АДФ к АТФ. Даже небольшое снижение уровня АТФ во время метаболического стресса приводит к относительно значительному увеличению уровня аденозинмонофосфата (АМФ), что может косвенно дополнительно стимулировать открытие канала КATP и способствовать поверхностному перемещению за счет действия трехмерной АМФ-активированной протеинкиназы (АМПК) и аденилаткиназы
Чувствительность канала КATP к АТФ не фиксирована, она может быть модулирована другими клеточными факторами. Нуклеотиддифосфаты, лактат, производные кислорода свободные радикалы и стимуляция рецепторов аденозина al снижают чувствительность КАТР к ингибированию внутриклеточным АТФ. Кроме того, фосфолипид PIP2 непосредственно взаимодействует с субъединицей Kir6.2, стабилизируя открытое состояние канала, и антагонизирует АТФ-ингибирование IKATP.
г) Фармакология. Каналы КATP могут быть ингибированы или активированы различными лекарственными средствами. Все они действуают на субъединицу SUR. Открыватели каналов КATP (пинацидил, кромакалим, римакалим и никорандил) связываются в двух различных областях субъединиц SUR2A и могут оказывать кардиопротекторное действие у пациентов с острым инфарктом миокарда. Однако открыватели каналов КATP также активируют сосудистый КATP (Kir6.1/SUR2B) и оказывают гипотензивные эффекты, которые ограничивают их использование при лечении ишемии миокарда.
Кроме того, поскольку плотность IKATP больше в эпикарде, открыватели каналов КATP производят более заметное сокращение длительности потенциала действия в эпикардиальных клетках, что приводит к заметному рассеиванию реполяризации и развитию экстрасистолической активности через механизм повторного входа фазы 2. С другой стороны, открыватели каналов КATP сокращают продолжительность потенциала действия (и интервал QT), уменьшают трансмуральную дисперсию реполяризации и подавляют раннюю и позднюю постдеполяризации, проявляющиеся у пациентов LQT1.
Таким образом, открыватели каналов КАТР потенциально могут предотвратить спонтанное развитие тахикардии torsades de pointes, когда врожденный или приобретенный LQTS вторичен по отношению к сниженному IKr или IKs. Открыватели каналов КATP могут быть полезны при моделировании ишемического прекондиционирования, а также могут оказывать защитные свойства в условиях острой ишемии.
Блокаторы IKATP (например, сульфонилмочевины и различные антиаритмические препараты) предотвращают укорочение длительности потенциала действия и потенциально могут предотвращать фибрилляцию желудочков во время ишемии миокарда. Тем не менее, они также могут быть аритмогенными. Кроме того, поскольку каналы КATP присутствуют в β-клетках поджелудочной железы и гладких мышц сосудов, блокаторы IKATP могут вызывать гипогликемию и коронарную вазоконстрикцию, эффекты, которые могут препятствовать их потенциальной пользе в качестве антиаритмических средств.
С другой стороны, кардиоселективные блокаторы IKATP (кламикалант, HMR 1098) ингибировали вызванное гипоксией сокращение продолжительности потенциала действия и предотвращали фибрилляцию желудочков, индуцированную окклюзией коронарных артерий у собак после инфаркта в дозах, не влияющих на высвобождение инсулина, кровяное давление или коронарный кровоток. Таким образом, эти препараты могут представлять собой новый терапевтический подход к лечению желудочковых аритмий у пациентов с ишемической болезнью сердца.
До сих пор неясно, оказывает ли открытие каналов КATP полностью проаритмический или антиаритмический эффект. Повышенная проводимость К+ должна стабилизировать Em во время ишемического повреждения и уменьшить степень выраженности инфаркта и эктопической активности водителя ритма. С другой стороны, открытие канала КATP ускоряет реполяризацию потенциала действия, возможно, способствуя повторному входу.
в) Наследственные каналопатии. Мутации усиления функции в KCNJ8 (Kir6.1) и АВСС9 (SUR2A) были связаны с синдромами волны J (синдромы Бругада и ранней реполяризации). Полиморфизмы каналов КATP и пор также были связаны с ВСС.
У пациентов с идиопатической дилатационной кардиомиопатией и нарушениями ритма были обнаружены мутации в АВСС9, приводящие к снижению активности АТ-Фазы внутренних каналов, метаболическому разобщению и дисфункции каналов КATP. Эти мутации придают восприимчивость к Са2+-зависимому дезадаптивному ремоделированию, прогрессирующему до кардиомиопатии и застойной сердечной недостаточности. Кроме того, мутация АВСС9 с потерей функции была связана с предрасположенностью к адренергической форме мерцательной аритмии.
Мутации усиления и потери функции в KCNJ11 (Kir6.2) и АВСС8 (SUR1), которые кодируют преобладающие субъединицы канала КATP в клетках поджелудочной железы и нейронах, в настоящее время идентифицированы как причинные при неонатальном сахарном диабете человека и врожденном гиперинсулинизме. Хотя каналы КATP (Kir6.2/SUR2A) сердца имеют ту же субъединицу Kir6.2, что и панкреатические каналы КATP (Kir6.2/SUR1), сообщений о каких-либо сердечных аномалиях у пациентов с неонатальным сахарным диабетом нет; это открытие говорит о том, что важную роль играют факторы, отличные от чувствительности к нуклеотидам.
Еще совсем недавно мутации с усилением функции в KCNJ8 (Kir6.1) и АВСС9 (SUR2A) связывали с синдромом Канту (синдром гипертрихоза-остеохондродисплазии-кардиомегалии), редким полиорганным заболеванием, характеризующимся множественными сердечно-сосудистыми аномалиями (увеличение сердца, гипертрофия желудочков, перикардиальный выпот, легочная гипертензия, вторичная по отношению к частичной обструкции легочных вен, открытый артериальный проток и двустворчатые аортальные клапаны со стенозом и без него).
Помимо этого, зачастую у пациентов наблюдаются врожденный гипертрихоз, характерный акромегалоидный внешний вид лица (включающий широкую переносицу, широкий рот с полными губами и макроглоссию) и скелетные аномалии (утолщение голени, широкие ребра, сколиоз и расширение метафизов). Следует отметить, что открыватели каналов КATP, такие как диазоксид и миноксидил, также могут приводить к таким побочным эффектам, как гипертрихоз, перикардиальный выпот, отек и даже огрубение черт лица.
г) Приобретенные заболевания. Метаболическая дисрегуляция IKATP, ввиду болезни вызванная структурным ремоделированием, способствует развитию сердечной недостаточности.
Эффекты модуляции Kir6.2 при ФП широко не изучались. Однако данные свидетельствуют о снижении уровня IKATP у пациентов с хронической ФП, что свидетельствует о том, что регуляция этого тока может не вносить существенного вклада в связанное с ФП ионное ремоделирование.