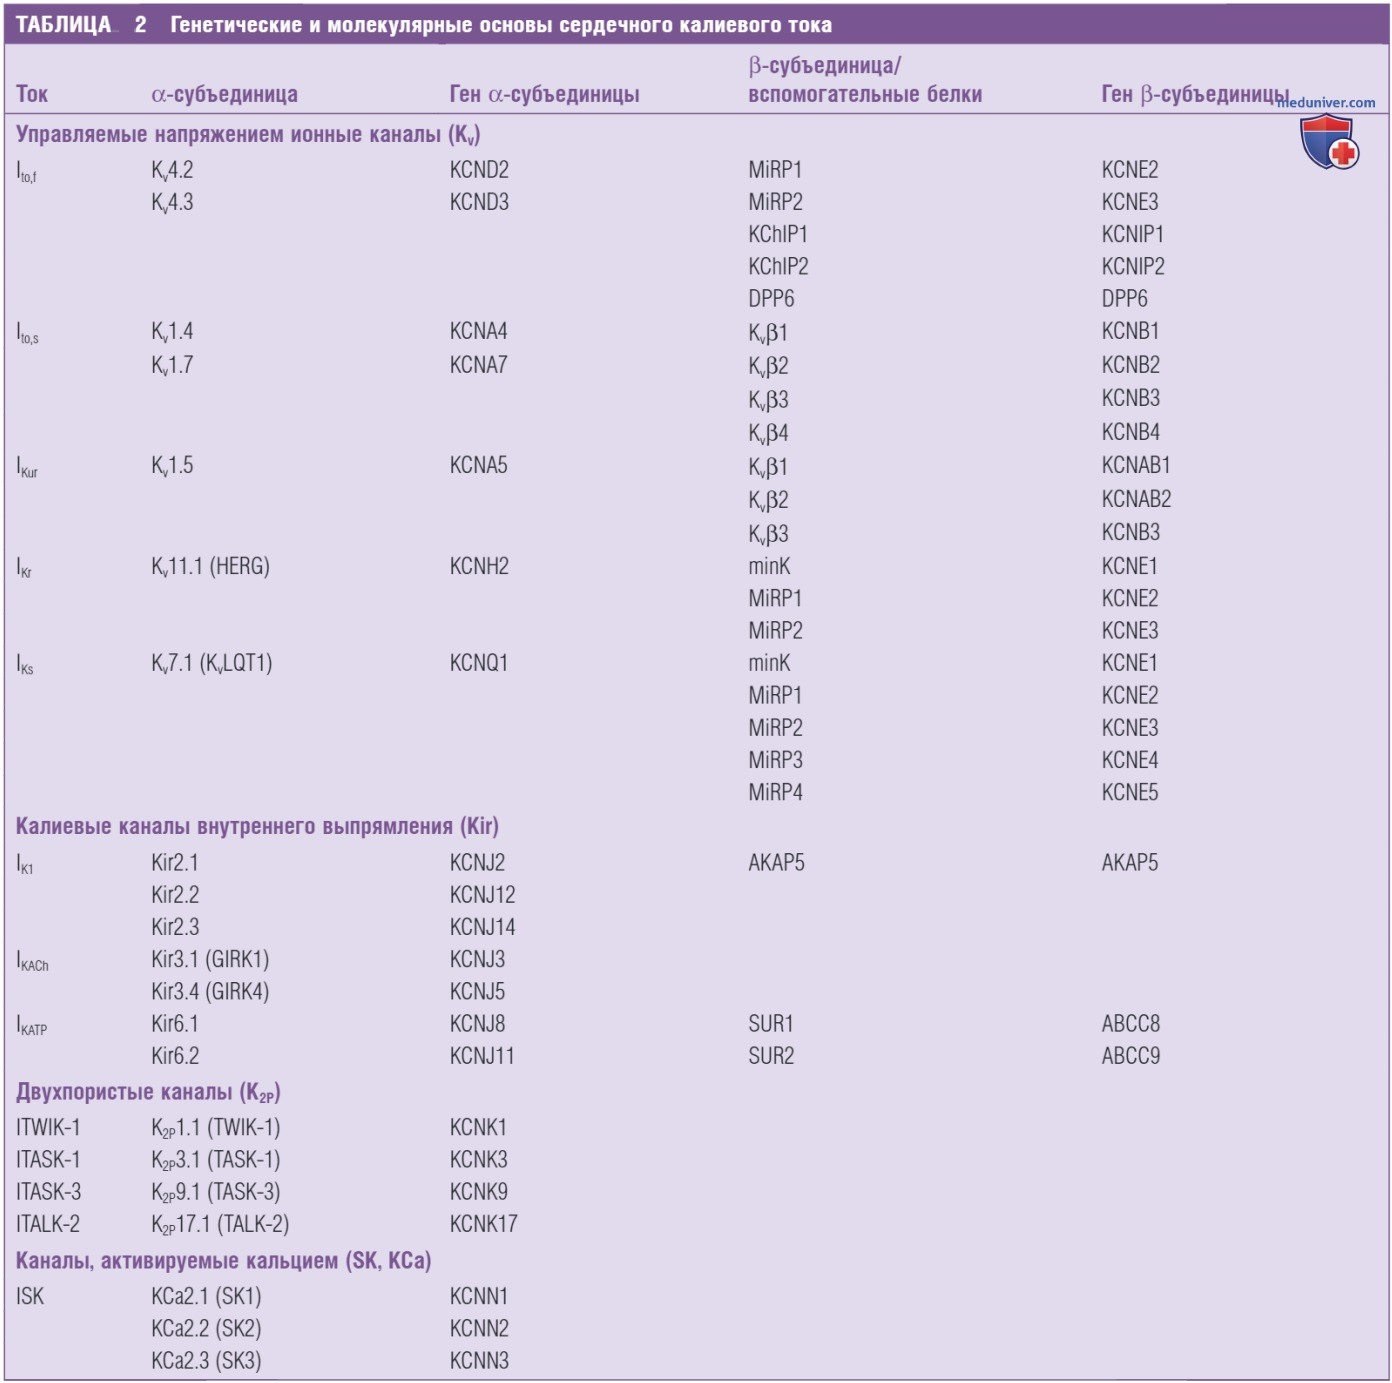
а) Структура и физиология. IKs образуется путем совместного соединения четырех порообразующих α-субъединиц (Кv7.1, также известных как KvLQT1, кодируемых геном KCNQT) и β-субъединиц (minK, кодируемых геном KCNE1).
IKs — это К+-селективный ток, который очень медленно активируется в ответ на деполяризацию мембраны до потенциалов, превышающих -30 мВ, и достигает половины максимума активации, близкого к +20 мВ. IKs имеет линейную зависимость ток-напряжение, его временной ход активации чрезвычайно медленный.
Медленнее, чем у любого другого известного тока К+, а установившаяся амплитуда достигается только при чрезвычайно длительной деполяризации мембраны.
Инактивация каналов KCNQ1 достигает половины своего максимума при -18 мВ. Достигнув своего максимума, инактивация уменьшает полностью активированный ток примерно на 35%. Кроме того, в отличие от инактивации других каналов Kv, начало инактивации IKs происходит с задержкой (задержка составляет примерно 75 мсек при +40 мВ).
Напротив, когда инактивация индуцируется после временного восстановления каналов до открытого состояния, начало инактивации происходит в 10 раз быстрее. Молекулярный механизм инактивации канала KCNQ1 неизвестен, но в отличие от классической инактивации С/Р-типа, инактивация KCNQ1 не зависит от концентрации К+.
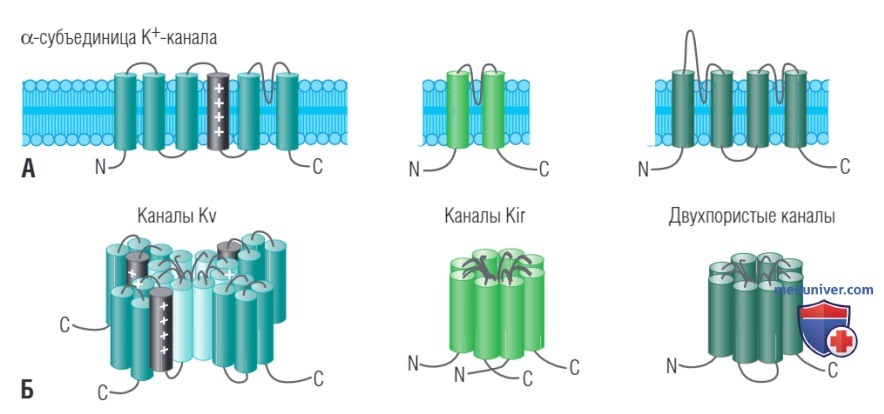
Молекулярное строение сердечных K+-каналов. Указаны аминоконцы (N) и карбоксильные концы (С). (А) Управляемые напряжением (Кv), внутренний выпрямитель (Kir) и двухпористые α-субъединицы представляют собой интегральные мембранные белки с шестью, двумя и четырьмя межмембранными доменами. (Б) Эти α-субъединицы собираются в виде тетрамеров или димеров с образованием К+-селективных пор
б) Функция. IKs способствует реполяризации предсердий и желудочков человека, особенно при длительных потенциалах действия. IKs постепенно увеличивается во время фазы плато, потому что его активация очень сильно замедляется. Как следствие, вклад IKs в чистый реполяризующий ток наиболее велик в конце фазы плато потенциала действия сердца.
IKs экспрессируется во всех типах клеток, но его экспрессия снижена в клетках миокарда (среднего слоя сердечной стенки). Клетки миокарда обладают наибольшей длительностью потенциала действия по всей его стенке.
IKs играет важную роль в определении зависимого от частоты укорочения потенциала действия и интервала QT. По мере увеличения частоты сердечных сокращений IKs увеличивается, потому что деактивация канала происходит медленно и не в полной мере во время укороченной диастолы. Это позволяет каналам IKs удерживаться в открытом состоянии во время быстрого сердечного ритма и способствовать более быстрой реполяризации.
Важно отметить, что IKs увеличиваются, тогда как другие реполяризующие токи (например IKr) уменьшаются, что потенциально служит гарантией потери реполяризующей мощности. Таким образом, несколько избыточных механизмов способствуют реполяризации, образуя резерв реполяризации, в котором IKs играет важную роль.
в) Регуляция. IKs заметно усиливается β-адренергической стимуляцией через фосфорилирование каналов протеинкиназой А (требующей А-киназы якорного белка 9 [АКАР9, также известного как "Yotiao"]) и протеинкиназой С (требующей minK). Это приводит к зависящему от скорости укорочению длительности потенциала действия, например, наблюдаемому при вызванной физической нагрузкой синусовой тахикардии. IKs также модулируется α-адренорецепторами с помощью протеинкиназы С.
Снижение внеклеточных концентраций К+ и Са2+ увеличивает IKs.
Совместная экспрессия Kv7.1 с minK регулирует движение и поведение α-субъединиц и приводит к семикратному увеличению IKs, заметному замедлению временного хода активации и удалению (или значительному замедлению) инактивации каналов Kv7.1.
Как уже отмечалось, IKr и IKs функционально связаны; когда IKr уменьшается, потенциал действия продлевается, что приводит к увеличению активации IKs для предотвращения избыточной задержки реполяризации. Следовательно, длительность потенциала действия очень сильно зависит от регуляции IKs и IKr.
г) Фармакология. IKs устойчив к метансульфонанилидам (альмокаланту, дофетилиду, Д-соталолу, е-4031, ибутилиду и МК-499), но избирательно блокируется хроманолами, индапамидом, тиопентоном, пропофолом и бензодиазепинами. IKs также блокируется, хотя и неселективно, амиодароном, дронедароном и азимилидом.
β-Субъединицы (minK) модулируют эффекты блокаторов и агонистов IKs. Фактически, совместная экспрессия Kv7.1 с minK увеличивает сродство к некоторым IKs-блокаторам в 6-100 раз.
Селективные блокаторы IKs увеличивают длительность потенциала действия и интервала QT и подавляют электрически индуцированные желудочковые тахиаритмии у животных с острой ишемией коронарных артерий и физической нагрузкой, наложенной на леченный инфаркт миокарда.
Блокада IKs, по-видимому, обладает меныпей проаритмической активностью по сравнению с блокадой IKr, что, вероятно, является результатом меньшей медикаментозной дисперсии при реполяризации. Кроме того, поскольку IKs накапливается при быстрой скорости движения из-за его медленной дезактивации, можно ожидать, что блокаторы IKs будут более эффективны в продлении длительности потенциала действия и рефрактерности при тахиаритмиях с меньшими побочными эффектами при нормальной скорости синусового ритма.
Кроме того, поскольку активация IKs происходит примерно при 0 мВ и это напряжение является более положительным, чем напряжение плато потенциала действия в клетках волокон Пуркинье, не следует ожидать, что блокада IKs пролонгирует длительность потенциала действия на этом уровне.
И наоборот, в миоцитах желудочков напряжение плато является более положительным (приблизительно +20 мВ), что позволяет IKs быть существенно более активированным, так что можно ожидать, что блокада IKs заметно увеличит продолжительность потенциала действия.
β-Адренергические агонисты увеличивают плотность IKs и производят зависящее от скорости укорочение продолжительности потенциала действия, а также могут уменьшать антиаритмические эффекты блокаторов IKs. Кроме того, при наличии блокады IKs изопротеренол, по-видимому, сокращает продолжительность потенциала действия эпикардиальных и эндокардиальных клеток, но не клеток миокарда, эффект, который может усиливать трансмуральную дисперсию реполяризации и ускорять развитие пируэтной тахикардии.
Эти наблюдения могут объяснить терапевтическое действие бета-блокаторов у пациентов с синдромами LQTS, связанными с ослаблением IKs, и повышенным риском фатальных сердечных аритмий при физической нагрузке или стрессовых ситуациях, повышающих симпатическую активность у этих пациентов.
д) Наследственные каналопатии. Мутации KCNQ1 и KCNE1 могут приводить к синтезу дефектного белка и опосредовать несколько форм наследственных аритмий, включая LQTS (включающий аутосомно-доминантный синдром Романо-Уорда и аутосомно-рецессивный синдром Джервелла-Ланге-Нильсена), SQTS и семейную фибрилляцию предсердий.
1. Синдром удлиненного интервала QT. Наиболее распространенный тип LQTS, LQT1, вызван мутациями, ведущими к потере функционирования каналов, в гене KCNQ1 (КvLQT1). На сегодняшний день зарегистрировано более 200 мутаций этого гена. Они включают множество синдромов Романо-Уорда (аутосомно-доминантные) и составляют примерно 45% всех генотипов LQTS.
Лица с менее распространенным LQTS типа 5 (LQT5) опосредуют потерю функционирования каналов, а именно аутосомно-доминантные мутации в гене KCNE1, демонстрирующие фенотип, аналогичный тому, который наблюдается у пациентов с LQT1.
Мутации, ведущие к потере функционирования каналов в обоих аллелях KCNQ1 или KCNE1 (т.е. унаследованные от обоих родителей, аутосомно-рецессивные) вызывают очень редкий синдром Джервелла-Ланге-Нильсена типа 1 или 2 соответственно. Синдром Джервелла-Ланге-Нильсена характеризуется серьезным удлинением интервала QT, высоким риском внезапной смерти и врожденной глухотой; глухота возникает из-за недостаточной секреции эндолимфы (KCNQ1 и KCNEI также экспрессируются во внутреннем ухе, где они обеспечивают секрецию эндолимфы).
LQT11 вызван мутациями потери функции в гене АКАР9, который кодирует А-киназный якорный белок (Yotiao), являющийся неотъемлемой частью макромолекулярного комплекса IKs. Присутствие Yotiao необходимо для физиологической реакции канала IKs на β-адренергическую стимуляцию. Мутация в АКАР9 (Yotiao) в связывающем домене канала IKs (Kv7.1) уменьшает взаимодействие между каналом IKs и Yotiao.
Это, в свою очередь, снижает цАМФ-индуцированное фосфорилирование канала и предотвращает функциональный ответ канала IKs на цАМФ и адренергическую стимуляцию (т.е. предотвращает увеличение величины IKs и сокращение длительности потенциала действия в ответ на симпатическую стимуляцию). Конечным результатом является ослабление IKs, приводящее к задержке реполяризации желудочков и удлинению интервала QT.
Мутации в LQT1, LQT5 и LQT11 приводят к ослаблению IKs, что вызывает удлинение реполяризации, длительности потенциала действия и интервала QT, что может быть особенно заметно в периоды повышенной симпатической активности, например при физической нагрузке, когда IKs становится преобладающим током реполяризации, а не IKr.
При LQT1 желудочковые аритмии обычно провоцируются эмоциональным или физическим стрессом, вероятно, потому что мутантный IKs недостаточно увеличивается (т.е. имеет меньший резерв реполяризации) во время β-адренергической стимуляции. Соответственно, β-адреноблокаторы подавляют аритмические явления в LQT1.
2. Синдром короткого интервала QT. SQT2 вызывается мутациями в гене KCNQ1 (KvLQT1). Мутация усиления функции KCNQ1 вызывает сдвиг вольт-амперной зависимости активации IKs на -20 мВ и ускорение кинетики активации, что приводит к усилению IKs и сокращению длительности потенциала действия и интервала QT. Мутации усиления функции KCNQ1, вероятно, предрасполагают к фибрилляции предсердий и фибрилляции желудочков за счет укорочения рефрактерности и облегчения повторного входа импульса.
3. Наследственная фибрилляция предсердий. Мутации усиления функции KCNQ1 были связаны с наследственной фибрилляцией предсердий, с фенотипом SQTS или без него. Кроме того, мутации с усилением функции в KCNE1, KCNE2 и KCNE5, которые кодируют β-субъединицы IKs, были также связаны с наследственной фибрилляцией предсердий. У пациентов с наследственной ФП было выявлено несколько мутаций, приводящих к потере функции каналов.
Объяснения тому, как мутации усиления и потери функции в одном и том же канале могут приводить к одному и тому же типу аритмии, пока не найдено.
е) Приобретенные заболевания. Сердечная недостаточность снижает IKs в миоцитах предсердий, желудочков и синусовых узлах. Учитывая, что IKr остается неизменным, снижение IK может в значительной степени объяснить длительную продолжительность потенциала действия при сердечной недостаточности.
Плотность IKs и уровень мРНК KCNQ1/KCNE1 снижаются в миоцитах пограничных зон инфаркта через 2 дня после инфаркта миокарда. Однако экспрессия KCNQ1 восстанавливается через 5 дней после инфаркта миокарда, в то время как экспрессия KCNE1 остается сниженной.