Триггерная активность — это генерация импульса, вызванная постдеполяризацией, которая является следствием предшествующего импульса или их серии. Постдеполяризация — это деполяризующее изменение мембранного потенциала, следующее за подъемом предыдущего потенциала действия.
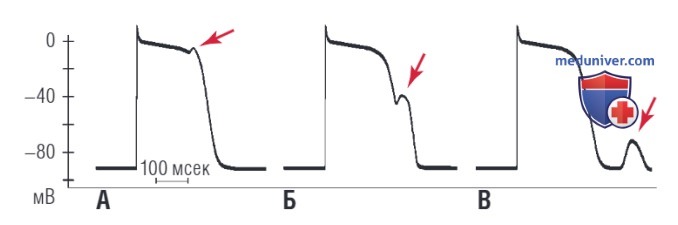
Постдеполяризация может происходить во время фазы реполяризации (ранняя постдеполяризация [РПД]) или после ее завершения (поздняя постдеполяризация [ППД]) (рис. 1). Постдеполяризация, значения которой достаточно для достижения порогового потенциала и активации регенеративного входящего тока, вызывает генерацию нового потенциала действия, который называется триггерным.
Рисунок 1. Типы постдеполяризаций. Постдеполяризации указаны стрелками. Потенциалы действия кардиомиоцитов Пуркинье показаны с ранней постдеполяризацией (РПД) фазы 2 (А) и РПД фазы 3 (Б), а также замедленной постдеполяризацией (В), которые происходят после полной реполяризации
В отличие от автоматизма, триггерная активность не является самогенерирующимся ритмом и возникает в ответ на предыдущий импульс (триггер). Автоматические ритмы могут возникать de novo в отсутствие какой-либо предшествующей электрической активности.
Поздняя постдеполяризация (ППД) — это изменение мембранного потенциала после реполяризации мембраны (т.е. во время фазы 4). То, что ППД является преходящим явлением, отличает ее от нормальной спонтанной диастолической (пейсмейкерной) деполяризации, во время которой мембранный потенциал постепенно изменяется до возникновения следующего потенциала действия.
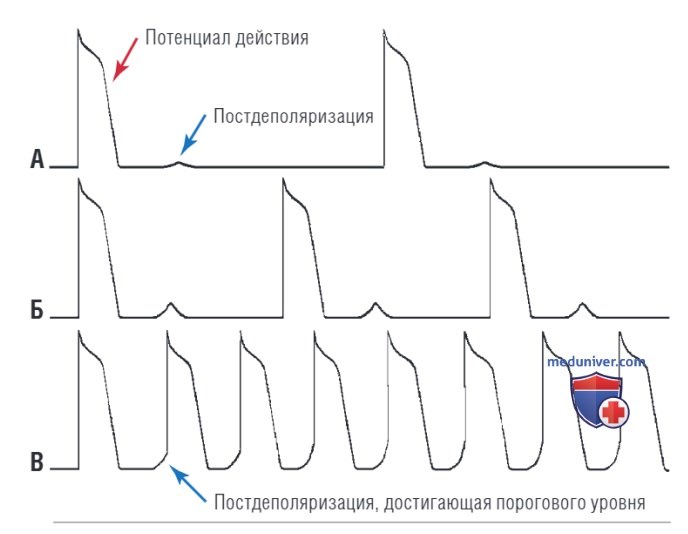
ППД может достигать или не достигать порогового уровня. При подпороговых ППД не возникают потенциалы действия и не развиваются нарушения ритма. Когда ППД достигает порогового уровня, возникает только один потенциал действия (рис. 2). За возникшим потенциалом действия может последовать ППД, уровень которой либо достигнет, либо не достигнет порога.
Рисунок 2. Поздние постдеполяризации (ППД). (А) ППД следует за потенциалом действия с медленной скоростью. (Б) При более высоких скоростях ППД возникает немного раньше и выше по амплитуде. (В) При еще более высоких скоростях ППД возникает еще раньше и в итоге достигает порогового уровня, что приводит к продолжительной генерации импульсов
Вследствие этого ППД будет или не будет инициировать возникновение нового потенциала действия. За первым возникшим потенциалом действия часто следует кратковременная или чуть более продолжительная последовательность дополнительно возникающих потенциалов действия, каждый из которых возникает вследствие ППД, вызванной предыдущим потенциалом действия.
а) Изменения ионных токов в основе поздних постдеполяризаций. Причины возникновения ППД могут быть разными. ППД возникают на фоне перегрузки Са2+, развивающейся в цитоплазме и саркоплазматическом ретикулуме. Во время фазы плато нормального потенциала действия Са2+ входят через потенциал-зависимые Са2+-каналы L-типа (ICaL).
Несмотря на то что повышения внутриклеточного уровня Са2+ недостаточно для того, чтобы начался процесс сокращения, небольшое количество Са2+, поступающих в клетку через ICaL, запускает значительный выход Са2+ из саркоплазматического ретикулума (основной источник Са2+) в цитозоль. Это приводит к открытию каналов с RyR2-рецепторами (располагающихся в мембране саркоплазматического ретикулума), и этот процесс известен как Са2+-индуцированное высвобождение Са2+.
Во время диастолы большая часть избыточного уровня Са2+ в цитозоле повторно поступает в саркоплазматический ретикулум при участии кальциевой АТФазы (SERCA) саркоплазматического/эндоплазматиче-ского ретикулума, активность которой контролируется фосфопротеином фосфоламбаном. Часть Са2+ выводится из клетки через Na+/Ca2+-обменник. Это необходимо, чтобы уравновесить количество Са2+, поступающих через ICaL.
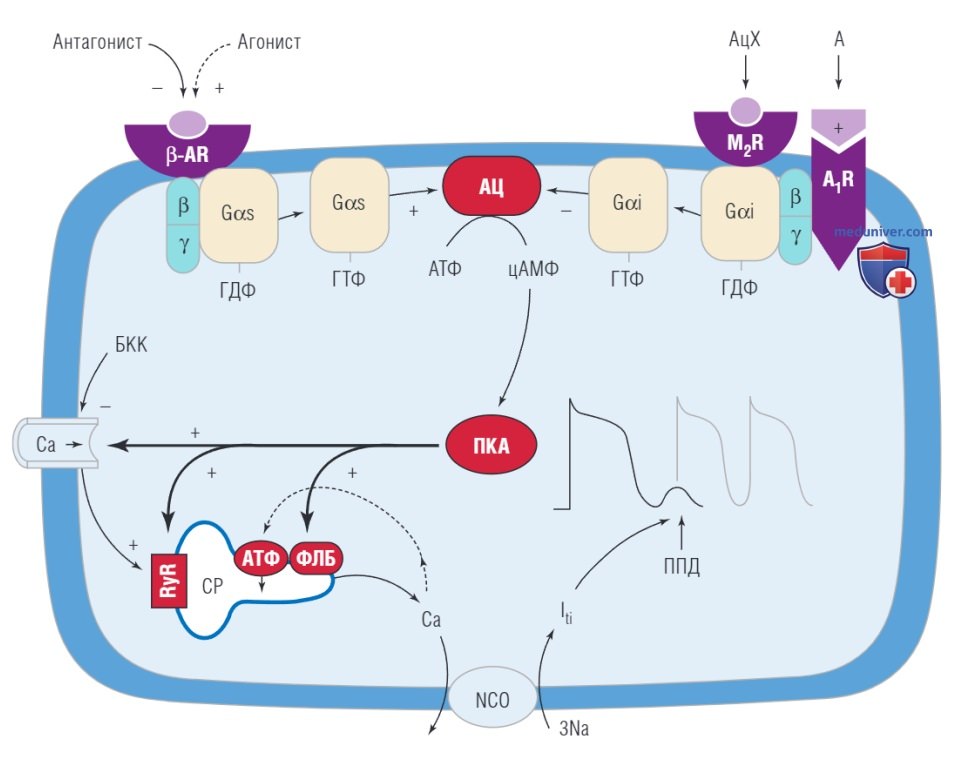
Повторяющиеся циклы высвобождения и обратного захвата Са2+ лежат в основе периодических повышений концентрации Са2+ в цитозоле и, как следствие, сокращений кардиомиоцитов и упорядоченного сердечного цикла (рис. 3).
При различных патологических состояниях концентрация Са2+ в саркоплазматическом ретикулуме во время реполяризации может повышаться до критического уровня (т.е. перегрузка Са2+). Повторное спонтанное высвобождение Са2+ из саркоплазматического ретикулума происходит после деполяризации мембраны, и не является составляющей электромеханического сопряжения. Этот вторичный выброс Са2+ приводит к несогласованным во времени переходам Са2+ и сокращениям кардиомиоцитов.
Спонтанные Са2+ токи могут быть аритмогенными. Они индуцируют зависимые от Са2+ деполяризующие мембранные токи (входящий ток [Iti]). Эти токи возникают в основном на фоне активации Na+/Са2+-обмен ника. Повышение внутриклеточного уровня Са2+ может стимулировать Na+/Са2+-обменник (INa-Ca), который переносит три Na+ в обмен на один Са2+; направление зависит от концентраций Na+ и Са2+ с обеих сторон мембраны и разницы Em.
Как в состоянии покоя Еm, так и во время спонтанного высвобождения Са2+ из саркоплазматического ретикулума этот обменник перекачивает три Na+ в клетку и один Са2+ из клетки и генерирует входящий ток Na+, вызывая временные колебания мембранного потенциала (ППД). После одной или нескольких ППД внутриклеточный уровень Са2+ может снизиться, потому что Na+/Са2+-обменник вытесняет Са2+ из клетки, и колебания мембранного потенциала прекращаются.
Когда ППД имеют низкую амплитуду (подпороговые ППД), они обычно никак не проявляют себя и не являются клинически значимыми. Однако при патологических состояниях (например, при ишемии миокарда, ацидозе, гипомагниемии, токсическом действии препаратов наперстянки или повышенном содержании катехоламинов) амплитуда Са2+-опосредованной деполяризации мембраны повышается и может достигать порогового уровня (надпороговая ППД). В этом случае будет генерироваться потенциал действия по механизму триггерной активности.
Дальнейшее развитие этого процесса может привести к стойкой тахикардии. Триггерная активность, при наличии прочих условий, может спровоцировать реентри.
Вероятно, наиболее существенным фактором, при котором подпороговые ППД достигают порогового значения, является уменьшение инициирующей ДЦ, поскольку это увеличивает как амплитуду, так и скорость ППД. Следовательно, возникновению нарушений ритма, вызываемых ППД, может способствовать спонтанное или вызванное стимуляцией увеличение частоты сердечных сокращений.
Подпороговые ППД также могут играть роль в аритмогенезе. За счет частичной деполяризации мембраны происходит инактивация некоторого количества Na+-ка налов и снижается их способность к активации во время последующего (триггерного или нетриггерного) потенциала действия. Возникающая в результате этого локальная электрическая дисперсия (возбудимости или рефрактерности) может способствовать формированию в миокарде зон с однонаправленной блокадой проведения возбуждения, что является одним из условий для формирования реентри.
б) Роль ППД в аритмогенезе. Надпороговые ППД могут инициировать генерацию потенциала действия и стать причиной фокальных нарушений ритма сердца (триггерных предсердных/желудочко-вых экстрасистол или тахикардии), в основе которых лежит триггерная активность. Когда возбуждение при триггерной активности достигает предрасположенных участков миокарда, триггерный потенциал действия может становиться триггером для развития реентри.
Как надпороговые, так и подпороговые ППД могут способствовать формированию предрасположенных зон миокарда, а также развитию реентри локально путем снижения возбудимости, достаточного для того, чтобы вызвать локальную блокаду проведения последующего нетриггерного потенциала действия. Кроме того, когда в одной и той же области миокарда возникают как подпороговые, так и надпороговые ППД, сочетание триггеров и предрасположенных зон миокарда может привести к возникновению реентри. ППД потенциально могут генерировать как предрасположенные зоны миокарда, являющиеся условием для реентри, так и запускать реентри в качестве триггера.
В некоторых областях миокарда надпороговые ППД могут вызывать генерацию потенциала действия, тогда как в других областях подпороговые ППД будут способствовать локальной блокаде проведения возбуждения. Когда триггерный потенциал действия достигает зоны миокарда с блокадой проведения возбуждения, выполняются все необходимые условия для реентри.
Полагают, что триггерная активность вследствие ППД лежит в основе механизма тахиаритмий, связанных с ИМ, реперфузионным повреждением, токсическим действием препаратов наперстянки и некоторыми идиопатическими ЖТ, а также некоторых нарушений ритма, связанных с наследственными каналопатиями. Наибольшая вероятность возникновения ППД наблюдается при быстром спонтанном или навязываемом ритме, а также при учащении преждевременных импульсов.
1. Препараты наперстянки. Применение препаратов наперстянки вызывает ППД-зависимые нарушения ритма сердца, в основе которых лежит триггерная активность, через подавление работы K'/Na’-насоса. При применении токсических доз этот эффект способствует накоплению Na+ внутри клетки, следовательно, усилению работы Na+/Ca2+-обменника в обратном режиме (три Na+ из клетки в обмен на один Са2+ в клетку) и накоплению с внутренней стороны мембраны Са2+.
При применении токсических доз препаратов наперстянки могут спонтанно возникать желудочковые нарушения ритма, вызываемые ППД. Триггерные желудочковые нарушения ритма, вызванные препаратами наперстянки, также могут быть вызваны учащением ритма. Аккумуляция токсического эффекта способствует увеличению длительности серии повторяющихся ответов, провоцируемых учащающейся стимуляцией.
2. Катехоламины. Эффекты катехоламинов могут способствовать развитию ППД за счет усиления внутриклеточной перегрузки Са2+. Эти процессы могут реализовываться при участии следующих механизмов: (1) увеличение ICaL за счет стимуляции β-адренорецепторов и увеличения цАМФ, что приводит к увеличению притока из внеклеточного пространства Са2+ и внутриклеточной перегрузки Са2+ (см. рис. 3); (2) усиление активности Na+/Са2+-обменника, которое приводит к повышению вероятности ППД-опосредованной триггерной активности; (3) усиление обратного захвата Са2+ саркоплазматическим ретикулумом, что приводит к увеличению концентрации Са2+ в саркоплазматическом ретикулуме и последующему высвобождению большего количества Са2+ во время сокращения кардиомиоцита; (4) повышение частоты сердечных сокращений.
Стимуляция симпатической иннервации может привести к развитию триггерных предсердных и желудочковых нарушений ритма сердца и, возможно, лежит в основе некоторых желудочковых аритмий, которые возникают во время физической нагрузки, а также во время ишемии и ИМ.
3. Ишемия миокарда. ППД и нарушения ритма, в основе которых лежит триггерная активность, в ишемизированной области миокарда также связаны с повышением внутриклеточного уровня Са2+. Предполагают, что накопление лизофосфоглицеридов в ишемизированной области миокарда с последующей перегрузкой Na+ и Са2+ лежит в основе механизма ППД и триггерной активности. Кардиомиоциты в подвергшихся ишемии участках или поврежденных участках могут обладать способностью к спонтанному высвобождению Са2+ из саркоплазматического ретикулума.
Это может провоцировать волнообразные повышения внутриклеточного уровня Са2+ и, как следствие, нарушения ритма.
4. Мутации генов. ППД могут быть вызваны генетическими дефектами, в результате которых нарушается способность саркоплазматического ретикулума к обратному захвату Са2+ во время фазы расслабления кардиомиоцита. Установлено, что мутации гена, кодирующего RyR2 в кардиомиоцитах, связаны с синдромом катехоламинергической полиморфной ЖТ и фибрилляцией желудочков (ФЖ) при укорочении интервала QT. Полагают, что в основе развития нарушений ритма при этом синдроме лежат изменение внутриклеточного уровня Са2+, а также, вероятно, ППД (см. рис. 3).
5. Фармакологические препараты. Эффекты введения некоторых фармакологических препаратов могут подавлять вызванную ППД триггерную активность с помощью различных механизмов, включая уменьшение входящего тока Са2+ и внутриклеточной перегрузки Са2+ (блокаторы Са2+ каналов, блокаторы β-адренорецепторов), снижение высвобождения Са2+ из саркоплазматического ретикулума (кофеин, рианодин, тапсигаргин, циклопиазоновая кислота) и уменьшение поступающего внутрь INa (тетродотоксин, лидокаин, фенитоин).
6. Свойства поздней постдеполяризации. На амплитуду ППД и вероятность триггерной активности влияет уровень мембранного потенциала, при котором возникает потенциал действия. Снижение мембранного потенциала при ППД может повлечь за собой инактивацию Na+-каналов и, следовательно, замедление проведения возбуждения.
Продолжительность потенциала действия является критическим фактором, определяющим возникновение ППД. Чем продолжительнее потенциал действия и, следовательно, чем больше входит Са2+ в клетку, тем с большей вероятностью могут возникать ППД. Введение лекарственных препаратов, в результате чего повышается продолжительность потенциала действия (например, антиаритмические препараты класса IA), может приводить к увеличению амплитуды ППД, тогда как эффекты лекарственных препаратов, которые сокращают продолжительность потенциала действия (например, антиаритмические препараты класса IB), могут вызывать снижение амплитуды ППД.
Количество потенциалов действия, предшествующих ППД, влияет на амплитуду ППД (т.е. после периода покоя новый потенциал действия может вызывать либо не вызывать небольшую ППД). При продолжении стимуляции амплитуда ППД будет увеличиваться, и в итоге может развиться триггерная активность.
Амплитуда ППД и интервал сцепления между первым и последним триггерными импульсами, которые их вызвали, напрямую связаны с ДЦ стимуляции, при которой возникают триггерные импульсы. Сокращение базовой ДЦ стимуляции (даже одного цикла запуска; т.е. преждевременного импульса), помимо увеличения амплитуды ППД, приводит к уменьшению интервала сцепления между последним циклом и первым триггерным импульсом. Значение имеют последний потенциал действия и увеличение частоты ППД. Триггерная активность индуцируется при выраженном уменьшении ДЦ либо спонтанно, как при синусовой тахикардии, либо при стимуляции.
Чем дольше мембрана находится в деполяризованном состоянии при стимуляции с малой ДЦ или после преждевременного импульса, тем выше уровень Са2+ в цитоплазме и саркоплазматическом ретикулуме (из-за повторной активации ICaL). Это приводит к усилению Iti, ответственного за увеличение амплитуды ППД, стимулирует ионный ток для более быстрого достижения максимальной амплитуды, а также сокращает интервал сцепления для триггерных импульсов.
Это свойство может помочь отличить триггерную активность от реентри. Интервалы между вызываемыми реентри импульсами, инициированными ускоренной стимуляцией, зачастую имеют противоположные значения.
Т.е. при снижении ДЦ стимуляции первый реентри импульс после прекращения стимуляции возникает позже, из-за частотно-зависимого замедления проведения импульса в петле реентри.
На триггерную активность заметно влияет overdrive-стимуляция. Эти влияния зависят как от частоты, так и от продолжительности overdrive-стимуляции. Когда overdrive-стимуляция продолжается в течение критического периода времени и с критической скоростью на фоне триггерного ритма, вызываемого эффектом катехоламинов, частота триггерной активности снижается до тех пор, пока триггерный ритм не прекратится. Это связано с повышенной активностью электрогенного K+/Na+-насоса, вызываемой увеличением внутриклеточного уровня Na+ из-за увеличения количества потенциалов действия.
Когда увеличения частоты ритма недостаточно для купирования триггерного ритма, оно может вызвать overdrive-ускорение (в отличие от подавления по механизму overdrive, наблюдаемого во время ритмической активности при нормальном автоматизме).
Триггерный ритм может быть прерван как overdrive-стимуляцией, так и одиночным преждевременным стимулом, хотя с меньшей вероятностью.
7. РПД и триггерная активность. РПД — это колебания мембранного потенциала, которые возникают во время потенциала действия и прерывают последовательность фазы реполяризации мембраны кардиомиоцита. РПД проявляется как резкое изменение в последовательности реполяризации мембраны, при котором трансмембранный заряд спонтанно смещается в деполяризующем направлении.
в) Ионные токи, лежащие в основе ранних постдеполяризаций. Нормальная реполяризация мембраны кардиомиоцита основана на критическом балансе между деполяризующими входящими токами и реполяризующими выходящими токами во время фазы плато потенциала действия. Мембрана во время реполяризации защищена (резерв реполяризации) от изменений мембранного потенциала при чрезмерном замедлении потенциала действия. Во время фазы плато мембрана обладает повышенным сопротивлением (т.е. проводимость мембраны для всех ионов снижается до минимума), ионный ток незначительный.
Следовательно, даже небольшие изменения в реполяризующих или деполяризующих токах могут иметь значительное влияние на продолжительность и развитие потенциала действия. Обычно во время фаз 2 и 3 суммарный трансмембранный ток направлен из клетки.
Любой фактор, который вызывает временное изменение направления суммарного тока в клетку может потенциально нарушить процесс реполяризации и лаже обратить его вспять (состояние, называемое сниженным резервом реполяризации). Это может привести к РПД и связанным с РПД нарушениям ритма. Такой сдвиг может возникать из-за уменьшения выходящих токов (реполяризующих, в основном токов К+), увеличения входящих токов (деполяризующих, токов Na+ или Са2+) или и тех и других. Сниженный резерв реполяризации является достаточным условием для увеличения продолжительности потенциала действия, однако недостаточным для возникновения РПД. Для инициации колебаний напряжения, патогномоничных РПД, необходимы другие различные условия.
Наиболее значимыми для инициации колебаний РПД являются «оконные» ICaL, поздние INa и IK. Кроме того, РПД могут также возникать на фоне колебаний внутриклеточного уровня Са2+ или продолжительных Са2+ токов через Na+/Са2+-обменник (INa-Ca).
РПД классифицируют по времени их возникновения на РПД фазы 2 (возникает во время фазы плато) и РПД фазы 3 (возникает во время реполяризации) (см. рис. 1). Ионные механизмы РПД фазы 2 и фазы 3 и амплитуды вызываемых ими потенциалов действия могут различаться. Когда мембрана деполяризована, в фазу 2 Na+-каналы инактивированы. Следовательно, основными, потенциально ответственными за РПД токами являются ICaL и INa-Ca. Активация установившейся разницы потенциалов и инактивация Са2+-каналов L-типа отражаются в виде кривой сигмовидной формы на графике изменения мембранного потенциала.
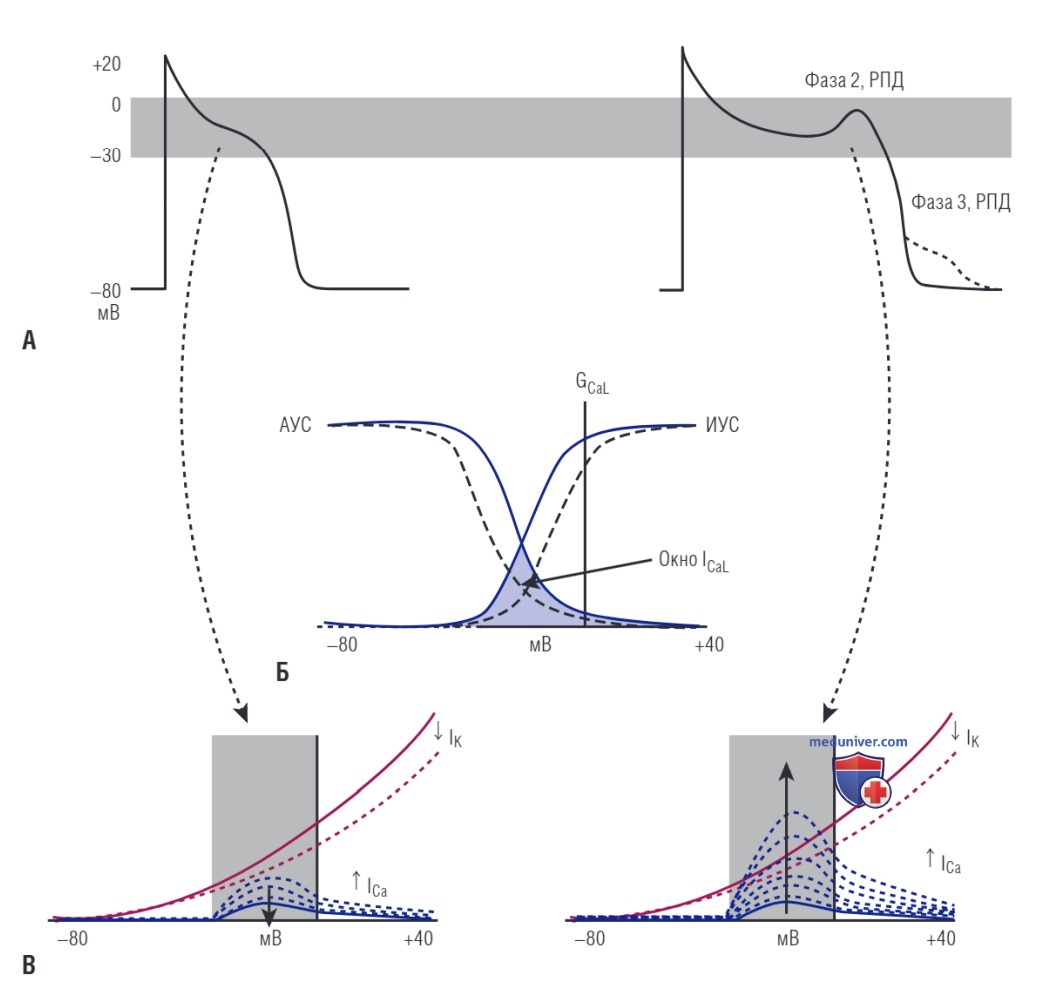
При этом диапазон активации составляет от -40 до +10 мВ (с потенциалом полуактивации около -15 мВ и потенциалом полуинактивации около -35 мВ). Однако снижение инактивации до 0 мВ отражается на графике изменения мембранного потенциала кривой U-образ-ной формы до устойчивой инактивации. Совпадение устойчивых потенциал-зависимых инактиваций и активаций называется «оконным» током, возникающим в момент времени, близкий к наступлению фазы плато, в пределах которого могут происходить переходы из закрытого в открытое состояние ворот каналов. По мере того как происходит реполяризация мембраны в «окне», повышается ICaL. Этот ток может стать достаточным, чтобы прекратить реполяризацию и тем самым вызвать РПД (рис. 4).
Рисунок 4. Механизмы, лежащие в основе ранней постдеполяризации (РПД). (А) Слева, нормальный потенциал действия и, справа, потенциал действия с фазой 2 РПД (сплошная линия) или фазой 3 РПД (пунктирная линия). (Б) Схематический график зависимости проводимости Са2+-канала L-типа (GCaL) от напряжения на мембране (мВ), показывающий область окна L-типа входящего тока Са2+ (lCaL) (фиолетовая область), где происходит перекрытие кривых активации устойчивого состояния (АУС) и инактивации устойчивого состояния (ИУС). Часть Са2+-каналов остается постоянно открытыми. Пунктирными линиями показан сдвиг кривых АУС и ИУС при возможном терапевтическом вмешательстве, в результате чего происходит и уменьшается перекрытие «окна» данной области. (В) Схематическая диаграмма, иллюстрирующая взаимодействие между зависящей от времени реактивацией lCaL (пунктирные синие линии) и зависящей от времени дезактивацией реполяризующих токов (IK) (пунктирные красные линии) в «окне» диапазона напряжений во время реполяризации мембраны. Для нормального потенциала действия (слева) скорость реполяризации слишком высока, чтобы lCaL превышал IK. Однако, если скорость реполяризации слишком мала, ICaL может превысить IK, тем самым обращая реполяризацию вспять и вызывая РПД (справа)
В кардиомиоцитах Na+/Са2+-обменник переносит три Na+ на один Са2+. Направление переноса зависит от концентраций Na+ и Са2+ по обе стороны мембраны и трансмембранной разности потенциалов. При работе в прямом режиме этот обменник создает вход Na+, что препятствует реполяризации. Увеличение ICaL в «окне» инициирует вход Са2+ в клетку, что дополнительно увеличивает INa-Ca в прямом режиме. Таким образом, повышается вероятность возникновения РПД и потенциала действия, запускаемого РПД.
Большинство Na+-каналов быстро инактивируются после открытия, предотвращая вход Na+, и остаются инактивированными на протяжении фазы плато потенциала действия. Однако при патологических состояниях (например, при синдроме удлиненного интервала QT [LQTS] 3-го типа, сердечной недостаточности, кардиомиопатии, ишемии, нежелательных реакциях на введение лекарственных препаратов) инактивация Na+-каналов может быть отложена или прекращена. В результате каналы могут повторно открываться до наступления реполяризации мембраны. Вследствие этого будет продолжаться незначительный остаточный входящий ток (поздний INa, INaL), сохраняясь на протяжении всей фазы плато.
Входящий поздний INa замедляет реполяризацию и увеличивает продолжительность потенциала действия и, следовательно, способствует РПД. Помимо позднего INa увеличенное «окно INa» (из-за отложенной инактивации или смещений потенциал-зависимой актива-ции/инактивации) также может способствовать возникновению РПД. Роль позднего INa и «окна INa» в генерации РПД аналогична роли «окна ICaL».
Традиционно считалось, что, в отличие от ППД, РПД не зависят от повышения внутриклеточного уровня Са2+. Напротив, пролонгация потенциала действия и реактивация деполяризующих токов являются их основными причинами. Более поздние экспериментальные данные указывают на ранее недооцененную взаимосвязь между внутриклеточной нагрузкой Са2+ и РПД. Цитозольные уровни Са2+ могут увеличиваться при пролонгации потенциала действия. Это, по-видимому, усиливает ICaL (вероятно, вследствие активации Са2+-кальмодулинкиназы), что дополнительно увеличивает продолжительность потенциала действия, а также обеспечивает входящий ток, инициирующий РПД.
Вероятность возникновения ППД также может быть повышена за счет пролонгации потенциала действия при внутриклеточной нагрузке Са2+. Взаимосвязь между внутриклеточным уровнем Са2+, ППД и РПД может служить одним из объяснений предрасположенности кардиомиоцита с нагрузкой Са2+ (например, при ишемии или застойной сердечной недостаточности) к развитию аритмий, особенно при введении препаратов, эффекты которых вызывают пролонгацию потенциала действия.
РПД, возникающие на поздней стадии реполяризации, развиваются при мембранных потенциалах более отрицательных, чем -60 мВ, в предсердных, желудочковых кардиомиоцитах или кардиомиоцитах волокон Пуркинье, которые имеют нормальные значения потенциала покоя. Обычно суммарный выходящий трансмембранный ионный ток постепенно смещает мембранный потенциал в сторону отрицательных значений во время фазы 3 реполяризации мембраны. Несмотря на немногочисленные данные, было высказано предположение, что ток через Na+/Са2+-обменник и, возможно, INa может способствовать активации РПД в фазу 3. Однако эта концепция была поставлена под сомнение.
В ходе исследования было высказано предположение, что РПД фазы 2 ответственны за индукцию РПД фазы 3 за счет электротонических взаимодействий и что для РПД фазы 3 необходима значительная разница потенциалов, связанная с гетерогенной реполяризацией.
Подъемы потенциалов действия, вызываемые РПД в фазы 2 и 3, также различаются. Подъем потенциала действия, вызванный РПД в фазу 2, опосредуется исключительно Са2+ токами. Даже когда эти триггерные потенциалы действия не распространяются по мембране, они могут существенно увеличивать неоднородность временного хода реполяризации мембраны (ключевой стимул для возникновения реентри). Это обусловлено тем, что РПД чаще возникают в определенных областях (например, в волокнах Пуркинье, в миокарде средней части левого желудочка [ЛЖ], эпикардиальном слое выходного тракта правого желудочка [ВТПЖ]), чем в других (например, эпикардиальный слой ЛЖ, эндокардиальный слой).
Потенциалы действия, запускаемые РПД фазы 3, возникают на фоне более отрицательного значения трансмембранной разницы потенциалов. Следовательно, подъемы могут инициироваться Na+ и Са2+ токами и будут распространяться с большей вероятностью.
При определенных условиях, когда значение РПД достаточно велико, уменьшение мембранного потенциала приводит к увеличению общего входящего (деполяризующего) тока, и второй подъем, или потенциал действия, запускается до наступления полной реполяризации мембраны при первом потенциале действия. За триггерным потенциалом действия также могут последовать другие потенциалы действия. Все они будут генерироваться на фоне низкого значения мембранного потенциала, характерного для плато, или при более высоком значении мембранного потенциала более поздней фазы 3. Устойчивая ритмическая активность может продолжаться в течение периода времени с различным количеством импульсов.
Активность прекращается, когда реполяризация инициирующего потенциала действия возвращает мембранный потенциал на высокий уровень. По мере того, как происходит реполяризация, частота триггерного ритма снижается, т.к. она зависит от значения мембранного потенциала. Иногда реполяризация может не возвращать мембранный потенциал до высокого уровня. Тогда мембранный потенциал может оставаться на уровне плато или на уровне, промежуточном между уровнями плато и потенциала покоя. После этого устойчивая ритмическая активность может продолжаться при сниженном значении мембранного потенциала, приобретая характеристики аномального автоматизма. Однако, в отличие от автоматических ритмов, триггерные потенциалы действия не могут возникать без инициирующего потенциала действия.
Распространение триггерных потенциалов действия по мембране связано со значением мембранных потенциалов, при которых они возникают. Чем отрицательнее значение мембранного потенциала, тем больше Na+-каналов доступны для активации, тем больше входящий Na+ ток во время фазы 0 и тем выше скорость проведения возбуждения. При более положительных значениях мембранных потенциалов в фазу плато (фаза 2) и в начале фазы 3 большинство Na+-каналов все еще инактивировано, и подъем триггерных потенциалов действия, скорее всего, инициируется входящим ICaL. Следовательно, эти триггерные потенциалы действия имеют медленный подъем и их распространение вдоль мембраны менее очевидно. Повышенная дисперсия реполяризации может инициировать распространение импульсов в желудочках при РПД в фазу 2.
г) Роль ранних постдеполяризаций в аритмогенезе. Как надпороговые, так и подпороговые РПД могут создавать условия для дисперсии рефрактерности и способствовать формированию условий для реентри. Когда РПД достигают порогового для распространения импульса значения, они генерируют триггеры, которые потенцируют возникновение реентри в незащищенной зоне. Таким образом, в зависимости от свойств клеток и ткани, РПД могут приводить к нарушениям ритма сердца, связанным исключительно с реентри, множеству смещающихся фокусов и сочетанию смещающихся фокусов и реентри.
Основным условием, лежащим в основе развития РПД, является пролонгация потенциала действия. Это проявляется на поверхностной ЭКГ как удлинение интервала QT. РПД возникает, когда фаза реполяризации пролонгируется либо в условиях приобретенных патологических состояний (например, при сердечной недостаточности), либо в случае наследственных заболеваний (например, LQTS). Другие условия, которые могут способствовать пролонгации потенциала действия и приводить к РПД, включают нарушения электролитного баланса (например, гипокалиемия, гипомагниемия, ацидоз), брадикардию, эффекты катехоламинов и препаратов, блокирующих К+-каналы.
1. Лекарственные препараты. Эффекты введения лекарственных препаратов наиболее часто являются причиной нарушений ритма, связанных с РПД. Эффекты антиаритмических препаратов классов IA и III увеличивают продолжительность потенциала действия и интервал QT. Благодаря этому реализуется как терапевтическое антиаритмическое действие, так и побочный проаритмогенный эффект. Применение некоторых препаратов, не оказывающих прямого влияния на сердце (например, некоторые фенотиазины), не вызывающих седативного эффекта антигистаминных препаратов, а также некоторых антибиотиков может вызывать пролонгацию потенциала действия и способствовать развитию нарушений ритма, опосредованных РПД, особенно в случае имеющейся гипокалиемии или брадикардии.
Обнаружено, что снижение концентрации внеклеточного К+ приводит к снижению трансмембранных токов IK (особенно IKr) в кардиомиоцитах желудочков. Этот факт объясняет, почему при гипокалиемии наблюдается пролонгация потенциала действия и РПД. Следует отметить, что развитию РПД препятствует введение препаратов, действие которых направлено на открытие АТФ-зависимых K+-каналов (IKATP) (пинацидил, кромакалим, римакалим и никорандил), магния, блокаторов α-адренорецепторов, тетродотоксина, нитрендипина и антиаритмических препаратов, которые сокращают длительность потенциала действия (например, лидокаин и мексилетин). Стимуляция α-адренорецепторов может спровоцировать РПД.
2. Синдром удлиненного интервала QT. Предполагают, что обусловленная РПД триггерная активность лежит в основе возникновения характерной полиморфной ЖТ, torsades de pointes, наблюдаемых у пациентов с врожденными и приобретенными формами LQTS. Патогенез желудочковых нарушений ритма у таких пациентов все еще не ясен, однако выраженная трансмуральная дисперсия реполяризации может провоцировать возникновение реентри в незащищенном «окне». Возникающие при этом РПД могут лежать в основе развития преждевременных комплексов, которые будут инициировать или поддерживать тахикардию.
3. Органическое поражение сердца. При органическом поражении сердца, например при гипертрофии или сердечной недостаточности, реполяризация мембраны кардиомиоцитов желудочков также может замедляться (так называемое электрическое ремоделирование) и способствовать развитию нарушений ритма, возникающих на фоне аномалий реполяризации. Аномалии реполяризации при гипертрофии и сердечной недостаточности часто усугубляются на фоне сопутствующей лекарственной терапии или электролитного дисбаланса.
д) Характерные признаки ранних постдеполяризаций. Появление нарушений ритма сердца, причиной которых являются РПД, связано с частотой базового ритма. Чем меньше частота и больше продолжительность потенциалов действия, тем более плавно увеличивается амплитуда РПД. Частая стимуляция приводит к сокращению продолжительности потенциала действия и уменьшению амплитуды РПД. Вероятно, это происходит вследствие увеличения тока задержанного выпрямления IK и ускорения индуцированного Са2+ тока инактивации ICaL. При стабилизации амплитуды РПД на фоне стимуляции с постоянной ДЦ, любое событие, укорачивающее ДЦ, будет приводить к снижению амплитуды РПД.
Следовательно, возникновение единичной преждевременной деполяризации, связанной с ускорением реполяризации, приведет к снижению амплитуды РПД, сопровождающей преждевременный потенциал действия. В результате преждевременная стимуляция будет препятствовать развитию триггерной активности. Исключением являются случаи, когда преждевременный желудочковый комплекс сопровождается длительной компенсаторной паузой. Такое явление может провоцировать развитие РПД, а также лежать в основе torsades de pointes у некоторых пациентов с LQTS. Таким образом, РПД с большей вероятностью будут инициировать развитие ритмической активности, если спонтанная частота сердечных сокращений медленная.
Это обусловлено тем, что брадикардия связана с удлинением интервала QT и продолжительностью потенциала действия (например, torsades de pointes, провоцируемая брадикардией или паузами).
Точно так же эффекты введения катехоламинов связаны с повышением частоты сердечных сокращений, уменьшением продолжительности потенциала действия и амплитуды РПД, несмотря на то что стимуляция β-адренорецепторов приводит к увеличению ICaL.