а) Строение и физиология. Кардиомиоциты контактируют друг с другом посредством множества вставочных дисков, которые обеспечивают передачу импульса, электрическую непрерывность и химическую связь между соседними клетками. Во вставочном диске существуют три типа специализорованных межклеточных соединений: (1) зоны десмосом и полосок слипания ("fascia adherens"); (2) десмосомы; (3) щелевые контакты (нексусы). Зона десмосом и полосок слипания ("fascia adherens") является местом прикрепления миофибрилл, что облегчает передачу механической энергии между соседними клетками.
Десмосомы соединяются с цитоскелетом соседних клеток, обеспечивая прочные локализованные участки адгезии, которые сопротивляются сдвигающим силам, возникающим во время сокращения. Щелевые соединения представляют собой совокупность межклеточных каналов, которые обеспечивают электрическую непрерывность и химическую связь между соседними клетками.
В дополнение к сквозным щелевым соединениям и боковым щелевым соединениям, локализованным на вставочных дисках, латеральные (боковые) щелевые соединения могут существовать в недисковых боковых мембранах кардиомиоцитов, но они встречаются гораздо реже, больше в миокарде предсердий, чем в миокарде желудочков.
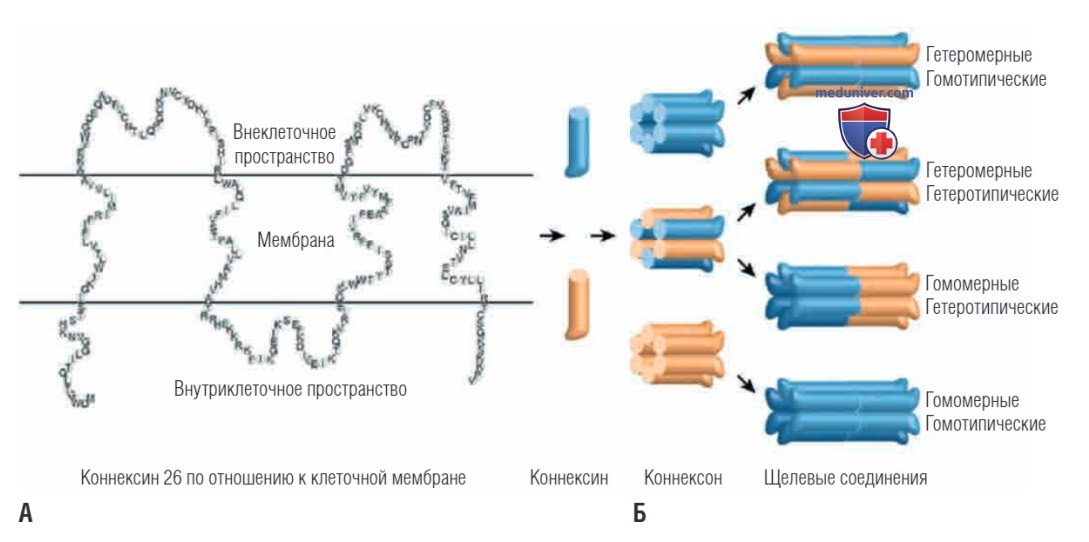
Каждый канал щелевого соединения состоит из двух полуканалов (коннексонов), выровненных голова к голове в зеркальной симметрии через узкий внеклеточный зазор, по одному от каждой из соседних клеток. Каждый коннексон состоит из шести интегральных мембранных белков, называемых коннексинами (Сх), расположенных шестиугольно вокруг поры.
Каждый коннексон состоит из четырех охватывающих мембраны доменов (от M1 до М4), двух внеклеточных петель (E1, Е2), одной внутриклеточной петли и цитоплазматических N- и С-концов. Внеклеточные петли опосредуют стыковку двух полуканалов.
Было идентифицировано до 24 различных типов коннексинов. Они названы в честь их теоретического молекулярного веса в дальтонах. Три различных коннексина заметно экспрессируются в миокарде предсердий и желудочков: Сх40, Сх43 и Сх45. Четвертый коннексин был описан в атриовентрикулярном узле (Сх31.9). Каналы щелевого соединения Сх40 обладают наибольшей проводимостью, а Сх45 — наименьшей. Хотя каждый коннексин имеет различное распределение в тканях, большинство кардиомиоцитов экспрессируют более одной изоформы коннексина.
Сх43 на сегодняшний день является наиболее распространенным и экспрессируется в миоцитах предсердий и желудочков и дистальных отделах системы Пуркинье. Сх40 в основном экспрессируется в миоцитах предсердий, атриовентрикулярном узле и системе Гиса-Пуркинье. Сх45, по-ви-димому, экспрессируется в основном в ткани узлов (синусовом и атриовентрикулярном узлах) и более слабо в предсердии, пучке Гиса, ветвях пучка и волокнах Пуркинье [60-62].
Соединения могут быть образованы путем олигомеризации одного типа коннексина (гомомерного) или разных типов (гетеромерных). Кроме того, канал щелевого соединения в целом может состоять из двух совпадающих полуканалов (гомотипические) или несовпадающих полуканалов (гетеротипические; рис. ниже).
Схематическое изображение коннексинов и каналов щелевых соединений, (А) Коннексины имеют четыре трансмембранных домена, две внеклеточные петли, цитоплазматическую петлю и цитоплазматические N- и С-концы. (Б) Шесть коннексинов олигомеризуются с образованием полуканалов, называемых «коннексонами», которые затем выравниваются во внеклеточном пространстве, чтобы завершить формирование каналов щелевых соединений. Различные коннексины могут избирательно взаимодействовать друг с другом с образованием гомомерных, гетеромерных и гетеротипических каналов, которые различаются по своему содержанию и пространственному расположению субъединиц коннексина
Различные сердечные коннексины проявляют отличительные биофизические свойства; следовательно, состав коннексина канала щелевого соединения определяет его единую проводимость, чувствительность к напряжению и ионную селективность. Щелевые соединения Сх40 выражают наибольшую проводимость, а Сх45 — наименьшую. Как Сх40, так и Сх45 обладают высокой селективностью к катионам, и их проводимость зависит от напряжения. Сх43 имеет промежуточную проводимость и является неселективным.
Отдельные каналы щелевых соединений позволяют обмениваться питательными веществами, метаболитами, ионами (например, Na+, Cl-, К+, Са2+) и небольшими молекулами (например, цАМФ, цГМФ, инозитолтрифосфат [IP3]) с молекулярной массой примерно до 1000 Да.
б) Функция. Щелевые соединения поддерживают прямую межклеточную коммуникацию в сердце, обеспечивая биохимическую электрическую связь с низким сопротивлением между соседними кардиомиоцитами. Таким образом, щелевые соединения отвечают за распространение электрического тока от одной сердечной клетки к другой и имеют решающее значение для синхронизации миокарда и функции сердца.
Щелевые соединения также обеспечивают биохимическую связь, которая обусловливает межклеточное перемещение веществ-посредников (например, АТФ, циклических нуклеотидов и IP3) и, следовательно, опосредует скоординированные реакции синцития миокарда на физиологические стимулы.
Роль каналов щелевого соединения в распространении потенциала действия и формировании скорости проводимости в сердечной ткани зависит в первую очередь от статических факторов каналов (например, количества каналов, проводимости канала и чувствительности к напряжению) и динамических факторов (например, кинетики стробирования канала), а также от свойств распространяемого потенциала действия, структурных аспектов геометрии клетки и архитектуры ткани.
Тканеспецифичная экспрессия коннексина и пространственное распределение щелевых соединений, а также изменение структурного состава каналов щелевых соединений обеспечивают большую универсальность физиологических особенностей щелевых соединений и различные проводящие свойства сердечной ткани. Миоциты синусового и атриовентрикулярного узлов снабжены небольшими, редкими, рассеянными по клетке щелевыми соединениями, содержащими Сх45, коннексин, который формирует каналы с низкой проводимостью; эта особенность лежит в основе относительно слабого межклеточного взаимодействия в узловых тканях, свойства, которое связано с замедлением проводимости.
Напротив, мышца желудочка преимущественно экспрессирует Сх43 и Сх45, которые обладают большей проводимостью. Мышцы предсердий и волокна Пуркинье экспрессируют все три сердечных коннексина.
В физиологических условиях данный кардиомиоцит в работающем миокарде взрослого человека электрически связан в среднем примерно с 11 соседними клетками, причем щелевые соединения преимущественно локализованы на интеркалированных дисках на концах клеток. Боковые (поперечные) щелевые соединения в недисковых боковых мембранах кардиомиоцитов гораздо менее многочисленны и чаще встречаются в тканях предсердий, чем желудочков. Таким образом, межклеточный ток протекает в основном на концах клетки, хотя распространение может происходить как в продольном, так и в поперечном направлении.
Это конкретное субклеточное распределение щелевых контактов лежит в основе равномерного анизотропного распространения импульса по миокарду, в результате чего проводимость в направлении, параллельном длинной оси пучков миокардиальных волокон, примерно в три-пять раз быстрее, чем в поперечном направлении. Это свойство объясняется главным образом более низким сопротивлением миокарда, обеспечиваемым щелевыми соединениями в продольном, а не в поперечном направлении.
Полуканалы Сх43 могут быть свободными, не функциональными каналами в плазматической мембране. Эти полуканалы обычно закрыты, но могут открываться в ответ на различные патологические (не физиологические) триггеры.
в) Регуляция. Каналы щелевых соединений имеют зависящий от напряжения механизм стробирования, который зависит в первую очередь от трансфункционального напряжения (т.е. разности потенциалов между цитоплазмой двух соседних клеток). В состоянии покоя, когда переходное напряжение равно нулю, каналы обычно открыты. Во время распространения потенциала действия каналы имеют тенденцию закрываться в зависимости от напряжения и времени. Стробирование канала щелевого соединения также может быть изменено специфическими изменениями внутриклеточных ионов и посттрансляционными модификациями («петлевое» стробирование).
Цитозольная перегрузка Na+ и Са2+, ацидоз и снижение уровня АТФ снижают функцию канала щелевого соединения. В отличие от затвора напряжения, который закрывается быстро и не полностью, химический затвор закрывается медленно и полностью.
Белки щелевых контактов Сх43 имеют короткую продолжительность жизни (период полураспада составляет несколько часов). Жизненный цикл Сх43 включает доставку коннексона к плазматической мембране клетки (прямой/антеградный транспорт), перемещение коннексона внутри плазматической мембраны (латеральная диффузия) и интернализацию коннексона из плазматической мембраны (ретроградный транспорт). Учитывая короткую продолжительность жизни, регулирование движения, сборки и разборки и деградации щелевых соединений, вероятно, будут иметь решающее значение для контроля межклеточной коммуникации.
Фосфорилирование также, по-видимому, играет ключевую роль в стробировании каналов, которое определяет проводимость каналов и участвует в регуляции «жизненного цикла» коннексина на нескольких этапах. Соединение щелевых соединений также регулируется некоторыми эндогенными медиаторами (например, ацетилхолином, норэпинефрином и ангиотензином), вероятно, через механизмы, опосредованные фосфорилированием. Важно отметить, что каналы, состоящие из разных коннексинов, обладают разными свойствами и подвержены различной регуляции.
г) Фармакология. Было обнаружено, что несколько агентов уменьшают сцепление каналов щелевых соединений, включая длинноцепочечные спирты (например, гептанол, октанол), жирные кислоты (миристолеиновая кислота, декановая кислота, пальмитолеиновая кислота), общие анестетики (например, галотан, изофлуран), карбахол (аналог ацетилхолина), α-адренергические агонисты (фенилэфрин), ангиотензин, инсулин, инсулиноподобный фактор роста и нестероидные агенты фенаматы (например, флуфенамовая кислота, меклофенамовая кислота). Механизмы действия этих агентов остаются в значительной степени неизвестными.
Противомалярийные препараты, особенно хинин и производные хинина, такие как мефлохин, могут снижать проводимость канала щелевого соединения, и их эффекты, по-видимому, специфичны для подтипа коннексина. Кроме того, было высказано предположение, что сердечные гликозиды строфантидин, уабаин и дигитоксин уменьшают межклеточное взаимодействие.
Экспериментальные данные свидетельствуют о том, что оптимизация проводимости щелевого соединения может потенциально оказывать антиаритмический эффект, обеспечивая более однородное распространение волновых фронтов активации и минимизируя возможности для развития возвратных аритмий [63].
Некоторые соединения, включая антиаритмические пептиды и их производные (например, ААР10, ZP123, ротигаптид), могут активировать Сх43 посредством модуляции синтеза или деградации и усиления связи через щелевые соединения. Было обнаружено, что они снижают замедление проводимости и предотвращают ФП и ишемическую возвратную ЖТ в различных клетках человека и животных. Эти пептиды предположительно действуют путем модуляции фосфорилирования Сх43.
д) Наследственные каналопатии. Исследования продемонстрировали связь между изменениями в первичной последовательности Сх43 или Сх40 и аритмиями. Было обнаружено, что редкий однонуклеотидный полиморфизм в предсердно-специфическом гене Сх40 (GJA5) увеличивает риск идиопатической ФП. Мутации GJA5 также связаны с прогрессирующим заболеванием сердечной проводимости.
Аминокислотные замены в гене Сх43 (GJAT) были описаны при СВДС и наследственной ФП. Мутации GJA1 также вызывают развитие плейотропного фенотипа окуло-денто-дигитальной дисплазии, аутосомно-доминантный синдром, характеризующийся черепно-лицевым дисморфизмом и дисморфизмом конечностей, а также неврологическими проявлениями. Удивительно, но этот фенотип не включает сердечные аритмии.
Мутации в десмосомных белках, лежащие в основе аритмогенной кардиомиопатии правого желудочка, также могут ухудшать экспрессию взаимодействующих белков на интеркалированном диске (например, щелевые соединения или белки Na+-каналов), приводя к нарушению межклеточной проводимости и способствуя аритмогенезу желудочков, даже в отсутствие замены на фиброзную ткань. В частности, ремоделирование Сх43 в щелевых соединениях, которое способствует задержке проводимости и желудочковому аритмогенезу, часто наблюдается у пациентов с аритмогенной кардиомиопатией правого желудочка.
Аномальная электрическая связь и дисфункция ионных каналов, приводящие к электрической нестабильности, могут способствовать возникновению аритмий и предрасполагать пациентов к высокому риску развития ВСС даже на ранних стадиях заболевания, до развития значительной дисплазии желудочков и рубцевания.
е) Приобретенные заболевания. Учитывая очень динамичную и активную смену коннексонов, ремоделирование сцепления щелевого соединения может происходить быстро после повреждения. Модификация межклеточного взаимодействия происходит в многочисленных патофизиологических условиях (например, при острой ишемии миокарда, гипертрофических кардиомиопатиях, дилатационных кардиомиопатиях, ишемических кардиомиопатиях и клинической хронической сердечной недостаточности) в результате острых изменений средней проводимости щелевых соединений, вторичных по отношению к ишемии, гипоксии, закислению или увеличению внутриклеточного Са2+.
Также это может быть вызвано изменениями в экспрессии или клеточном характере распределения щелевых контактов.
Ремоделирование включает уменьшение количества каналов щелевых соединений в результате прерывания связи между клетками из-за фиброза и подавления образования Сх43 или его доставки к интеркалированному диску. Кроме того, щелевые соединения могут становиться более заметными вдоль боковых мембран миоцитов (так называемое структурное ремоделирование).
Неправильная локализация Сх43 во время болезни отражает нарушение прямого движения к интеркалированным дискам. Латерализованный Сх43, вероятно, представляет собой белок, который не является функциональным соединением. Влияние латерализации Сх43 на распространение импульса еще не изучено.
Изменения функции или ремоделирование коннексинов происходят почти при всех основных аритмогенных сердечных нарушениях. Инактивация щелевых соединений снижает скорость поперечной проводимости в большей степени, чем продольной проводимости, что приводит к усилению анизотропии и обеспечивает основу для реентерабельной активности и повышенной восприимчивости к аритмиям. Важно отметить, что существует высокая избыточность экспрессии коннексина в сердце в отношении проведения электрического импульса.
Было показано, что снижение Сх43 на 50% не изменяет проводимость желудочковых импульсов. Экспрессия Сх43 должна уменьшиться на 90%, чтобы повлиять на проводимость, но даже в этом случае скорость проводимости снижается только на 20%.
ФП связана с аномальной экспрессией и распределением предсердного Сх40. Это потенциально может привести к неоднородной электрической связи и аномальному формированию и проводимости импульсов, что может обеспечить основу для предсердных аритмий.