Иммунная система формировалась в течение миллионов лет в ответ на проникновение в организм патогенов. Основная функция врожденного иммунитета — распознавание и устранении патогенов. Для выполнения функции защиты от патогенов необходимым условием является способность клеток врожденного иммунитета отличать чужеродные и опасные для организма патогены от собственных структур. Помимо участия в иммунной защите от патогенов, иммунная система помогает предотвращать процессы малигнизации с помощью распознавания собственных перерожденных клеток, экспрессирующих неоантигены, а также выполняет важные задачи, связанные с восстановлением поврежденных тканей.
Существует два основных типа иммунитета: врожденный и адаптивный. Врожденный иммунитет представляет собой первую и быструю линию защиты от чужеродных агентов. Адаптивный иммунитет, активирующийся с помощью врожденного, обеспечивает более специфический ответ, направленный на конкретный АГн или его эпитоп, и обладает важнейшим свойством — запоминать АГн. Иммунологическая память позволяет более быстро элиминировать патогены при их повторном попадании в организм.
Клетки иммунной системы образуются из клеток-предшественников в костном мозге и заселяют различные лимфоидные органы, включая ЛУ, селезенку, кожу, кишечник, а также другие органы и ткани. Клетки врожденного иммунитета постоянно присутствуют в компартментах, в которые, вероятнее всего, попадают патогены, и после активации они обычно мигрируют в ближайшие лимфоидные органы. Запуск адаптивного иммунного ответа происходит в местах скопления клеток врожденного и адаптивного иммунитета в периферических лимфоидных органах.
После активации, клональной экспансии и дифференцировки клетки-эффекторы мигрируют в места инфекции или повреждения тканей. Там они осуществляют эффекторные функции: синтезируют цитокины, вводят клетки-мишени в апоптоз, участвуют в процессах иммунорегуляции и т.д. Цитокины — растворимые белки, участвующие в процессах межклеточных взаимодействий в организме. Иммунная система функционирует как четко регулируемая интегральная система. Эффективность работы иммунной системы зависит во многом от генетических особенностей регуляции иммунных ответов, направленных на защиту от патогенов.
Генетическая предрасположенность к развитию неполноценных иммунных ответов на инфекционные стимулы либо к развитию аутоиммунных реакций может манифестировать при различных заболеваниях.
Ранее механизмы врожденного иммунитета традиционно рассматривались как «неспецифическая» защита организма от патогенов. Однако важные достижения в изучении процессов распознавания чужеродных объектов во врожденном иммунитете — открытие как поверхностных, так и внутриклеточных патоген-распознающих рецепторов и, в частности, семейства toll-подобных рецепторов (TLRs), и их сигнальных путей — в настоящее время привели к пересмотру концепции о «неспецифичности» врожденного иммунитета.
С помощью таких рецепторов клетки врожденного иммунитета распознают патоген-ассоциированные молекулярные паттерны, характерные для микроорганизмов. Врожденный иммунитет является высокоэффективным при удалении или ограничении инфекции, в процессах репарации тканей. Однако при развитии хронического воспаления может происходить нарушение процессов иммунорегуляции, и механизмы врожденного иммунитета могут опосредовать процессы повреждения тканей, например при аутоиммунных и воспалительных заболеваниях.
а) Клетки врожденного иммунитета:
1. Моноциты и макрофаги. Моноциты циркулируют в периферической крови в течение 3 сут, после чего мигрируют в ткани, где превращаются в макрофаги. Макрофаги тканей включают альвеолярные макрофаги в легких, клетках Купфера в печени, остеокласты в костях, микроглия в ЦНС, синовиоциты типа А в синовиальной оболочке. Макрофаги секретируют огромное количество биологически активных веществ, включая гидролитические ферменты, активные формы кислорода, цитокины и хемокины. Макрофаги непосредственно захватывают микроорганизмы и инородные частицы или активируются белковыми комплексами, содержащими АТл, которые связываются с рецепторами клеточной поверхности для Fc-фрагмента молекулы Ig (Fc-рецепторы или FcRs).
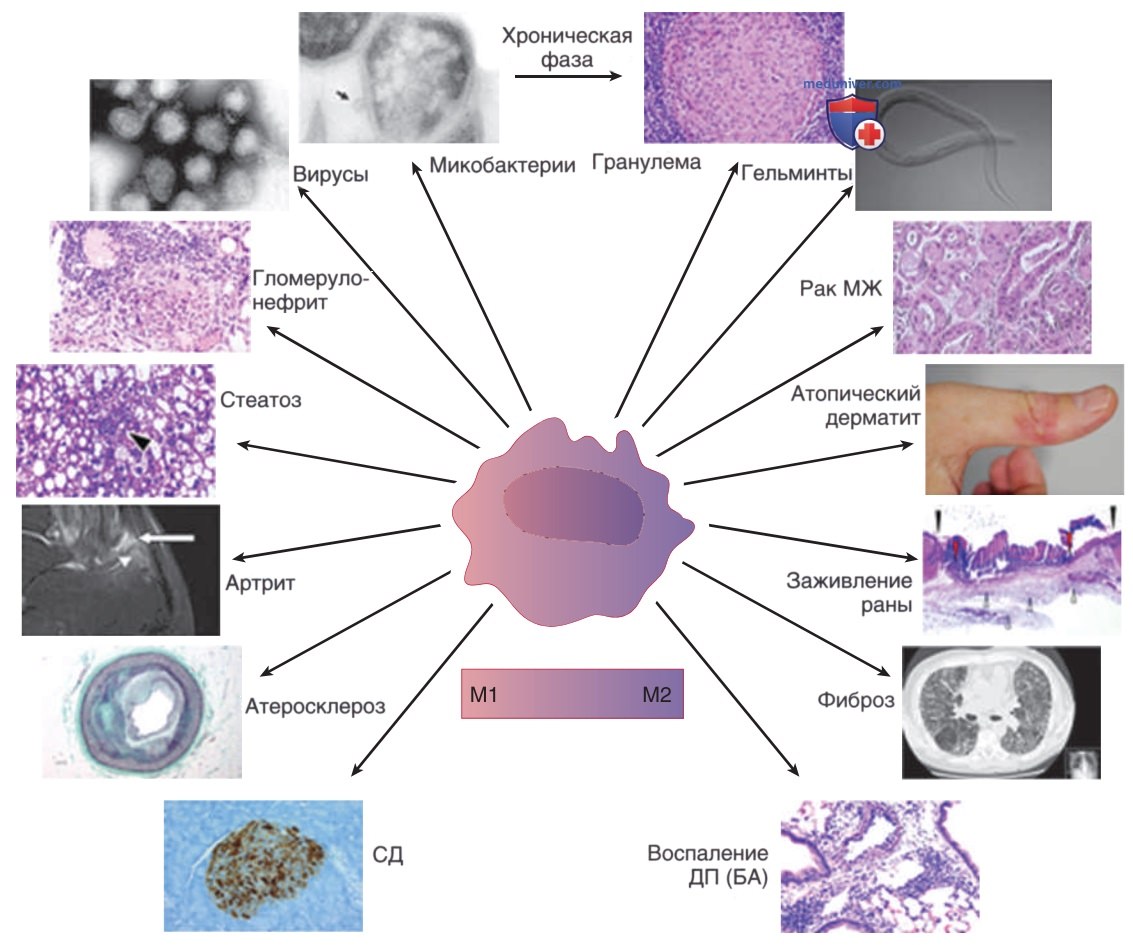
Передача сигналов после активации рецепторов в ядро осуществляется с помощью внутриклеточных сигнальных путей, индуцирующих транскрипцию генов, кодирующих медиаторы, способствующие развитию воспаления и фермент-опосредованной гибели микроорганизмов. Различные цитокины, синтезируемые клетками иммунной системы, в том числе IFN-γ или IL-4, могут способствовать дифференцировке макрофагов в провоспалительный (M1) или в противовоспалительный (М2) фенотипы.
Помимо ответа на чужеродные микроорганизмы, макрофаги принимают участие в устранении стареющих или апоптозных клеток, при этом воспаление не развивается. Макрофаги также взаимодействуют с другими типами клеток через механизм экспрессии ко-стимулирующих молекул. После захвата АГн они могут выполнять роль АГн-представляющих клеток для Т-лимфоцитов, а также взаимодействовать с рядом других типов клеток, например с эндотелиоцитами или фибробластами.
2. Дендритные клетки. Дендритные клетки являются АГн-представляющими клетками. Миелоидные дендритные клетки способны нейтрализировать АГн проникших в организм микроорганизмов, мигрировать в ближайшие ЛУ и представлять АГн-пептиды Т-лимфоцитам в форме комплексов с молекулами главного комплекса гистосовместимости (МНС). Дендритные клетки являются наиболее эффективными АГн-представляющими клетками, экспрессирующими ко-стимулирующие молекулы на клеточной поверхности, и после взаимодействия с патоген-ассоциированными молекулярными паттернами способны синтезировать различные цитокины, включая IL-12 и IL-23.
Тем самым дендритные клетки обеспечивают дифференцировку Т-лимфоцитов для запуска адекватного типа иммунного ответа. Плазмоцитоидные дендритные клетки способны к синтезу IFN I типа — ключевых медиаторов противовирусной защиты.
3. Естественные клетки-киллеры. Естественные Т-клетки-киллеры обеспечивают раннюю защиту от вирусных инфекций и других внутриклеточных патогенов. Естественные киллеры активируются цитокинами, включая IFN I типа, синтезированными плазмоцитоидными дендритными клетками и макрофагами, и секретируют большое количество IFN-γ, активирующего макрофаги и другие клетки. Естественные киллеры и Т-клетки естественных киллеров осуществляют уничтожение вирус-инфицированных клеток с помощью перфоринов и гранзимов. Активация естественных киллеров ингибируется взаимодействием с собственными молекулами МНС I класса, экспрессированными на клетках-мишенях.
Если на клетках отсутствуют АГн гистосовместимости I класса, то такие клетки уничтожаются натуральными киллерами. Благодаря такому распознаванию клеток с измененным фенотипом естественные киллеры выполняют важную роль в элиминации малигнизированных и вирус-трансформированных клеток. Наряду с естественными киллерами на ранних этапах развития ответов врожденного иммунитета принимают участие врожденные лимфоидные клетки — особый тип лимфоцитов, не экспрессирующих АГн-специфичные рецепторы, в частности, играющих важную роль в иммунных ответах в ЖКТ.
4. Нейтрофилы. Нейтрофилы — наиболее распространенные циркулирующие лейкоциты. Они быстро мигрируют в очаги воспаления, фагоцитируют микроорганизмы. Процесс активации фагоцитарной активности нейтрофилов опосредуется активацией Fc-рецепторов или рецепторов к компонентам системы комплемента. Фагосомы, содержащие микроорганизмы, сливаются с лизосомами, содержащими ферменты, после этого в фаголизосомах происходит разрушение микроорганизмов. Помимо фагоцитарных свойств нейтрофилы способны к синтезу различных биологически активных веществ, оксидантов. Так называемый окислительный взрыв сопровождается повышенным потребления кислорода.
Во время окислительного взрыва с помощью никотинамидадениндинуклеотидфосфат оксидазы образуются радикалы О2. Нейтрофилы также принимают участие в иммунной защите с помощью механизма выброса ДНК и ассоциированных белков, ферментов в форме нейтрофильных внеклеточных ловушек или нейтрофильных внеклеточных ловушек, к которым могут прилипать бактерии, что облегчает их клиренс. Несмотря на свое активное участие во врожденном иммунном ответе и противомикробной защите, активация нейтрофилов может приводить к нежелательным последствиям.
Например, нейтрофильная внеклеточная ловушка может индуцировать выработку цитокинов плазмоцитоидных дендритных клеток и приводить к деструкции эндотелиоцитов.
Секреция содержимого гранул нейтрофилов, в частности ферментов (миелопероксидазы, эластазы, коллагеназы и лизоцима), может приводить к повреждению клеток тканей организма в очагах воспаления.
4. Эозинофилы. В отличие от макрофагов и нейтрофилов эозинофилы характеризуются низкой способностью к фагоцитозу. Их основным эффекторным механизмом является секреция катионных белков (основной катионный белок, эозинофильный катионный белок и нейротоксин эозинофилов). Такие белки освобождаются эозинофилами во внеклеточное пространство, и с их помощью уничтожаются патогенные микроорганизмы, однако при этом могут повреждаться и собственные ткани.
5. Базофилы и тучные клетки. Базофилы и тучные клетки секретируют воспалительные медиаторы: гистамин, простагландины, лейкотриены и ряд цитокинов. Эти клетки участвуют в аллергических реакциях, при которых аллергены перекрестно связываются с IgE, связанными с высокоаффинными рецепторами к IgE (FceRs I). Тучные клетки синовиальных тканей у больных РА принимают участие в местных воспалительных ответах. Как плазмоцитоидные дендритные клетки и макрофаги, тучные клетки экспрессируют TLRs и Fc-рецепторы и способны к синтезу цитокинов после распознавания образов патогенов, то есть после формирования иммунных комплексов, состоящих из TLRs и их лигандов.
б) Рецепторы распознавания и триггеры врожденного иммунитета:
1. Толл-подобные рецепторы. Клетки врожденного иммунитета используют поверхностные и внутриклеточные патоген-распознающие рецепторы для распознавания консервативных структур микроорганизмов (патоген-ассоциированных молекулярных паттернов). Примерами патоген-ассоциированных молекулярных паттернов являются бактериальные липополисахариды, пептидогликаны, маннаны, бактериальные ДНК, двухцепочечная РНК и глюканы. TLRs распознают соответствующие лиганды микроорганизмов, это позволяет врожденному иммунитету быстро запускать ответные реакции — воспаление или репарацию, а также передавать информацию о патогенах Т-лимфоцитам. TLRs имеют общие домены, обогащенные лейцином, связывающие патоген-ассоциированные молекулярные паттерны микроорганизмов разных классов.
Например, TLR-4, экспрессирующийся на клеточной поверхности, связывает липополиахариды грамотрицательных бактерий, a TLR-2 распознает бактериальные пептидогликаны и липопротеины, часто с помощью димеризации с другими членами семейства TLR. Важные достижения в понимании патогенеза системных аутоиммунных заболеваний были достигнуты при изучении функционирования эндосомальных TLRs, распознающих одноцепочечную РНК (TLR-7 и TLR-8), диметилированную 5'-цитозин-фосфат-гуанин-3' (CpG)-обогащенную ДНК (TLR-9), и двухцепочечную РНК (поверхностные и эндосомальные формы TLR-3).
Экспрессия различных TLRs клеток врожденного иммунитета варьирует, открывают все новые члены TLR. TLRs играют центральную роль в информировании системы о том, что микроорганизмы — бактерии в случае TLR-2 и TLR-4 или вирусы в случае TLR-3, TLR-7, TLR-8 и TLR-9 — проникли в макроорганизм.
Однако в некоторых случаях иммунные комплексы с собственными нуклеиновыми кислотами также могут распознаваться эндосомальными формами TLR, что может приводить к запуску реакций врожденного иммунитета.
2. Цитоплазменные нуклеинокислотные рецепторы. Помимо членов семейства TLR и эндосомальных TLRs, способных распознавать микробные и собственные нуклеиновые кислоты, была открыта еще одна категория внутриклеточных рецепторов врожденного иммунитета, распознающих РНК или ДНК микроорганизмов — в основном вирусов, проникших в клетки организма-хозяина.
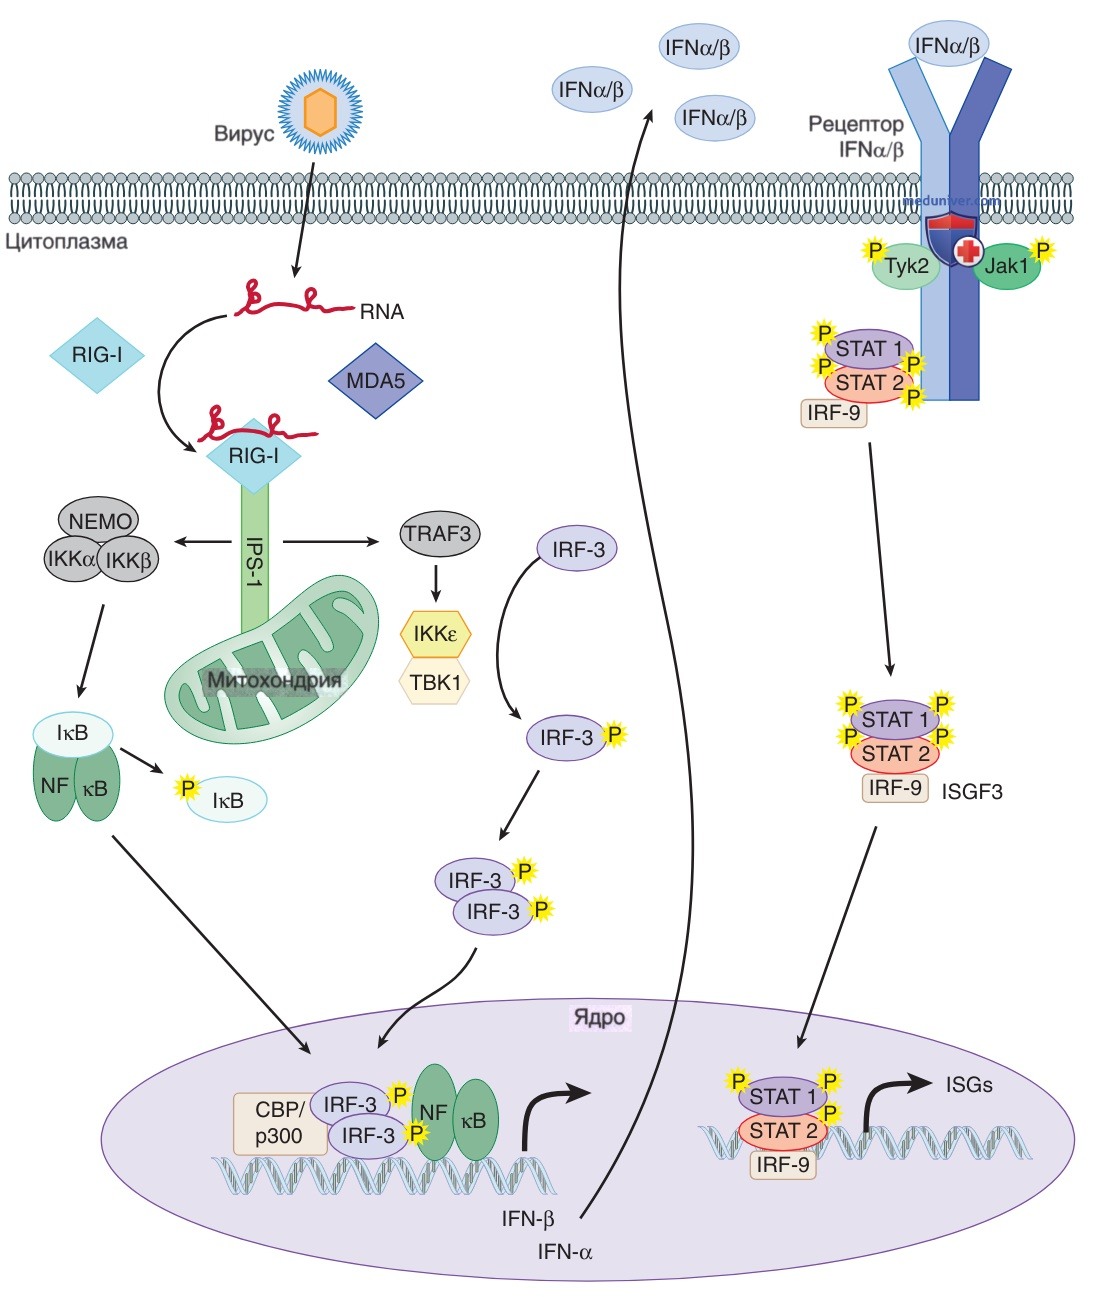
DExD/H-семейство включает ген 1, индуцируемый ретиноевой кислотой (RIG-I), и белок 5, ассоциированный с дифференциацией меланомы, — члены семейства RIG-I-подобных рецепторов, распознающих вирусные РНК с определенными структурными характеристиками, отличающими вирусную РНК от большинства собственных РНК (рис. 1). Цитоплазменные рецепторы ДНК взаимодействуют с циклической гуанозин-монофосфатсинтазой и активирующей реакции врожденного иммунитета, опосредованные взаимодействием со стимулятором генов IFN (STING). В результате активации цитоплазматических рецепторов РНК или ДНК происходит транскрипция генов и синтез IFN-β и других провоспалительных цитокинов, регулирующих раннюю фазу иммунного ответа.
Рисунок 1. Запуск противовирусного ответа интерферона (IFN) типа I. Цитоплазменные рецепторы к РНК, включая ген 1, индуцируемый ретиноевой кислотой (RIG-I), и белок 5, ассоциированный с дифференциацией меланомы (MDA5), запускают сигнальный каскад, приводящий к транслокации интерферон-регуляторного фактора 3 (IRF-3) в ядра и транскрипции IRF. Эти цитокины активируют противовирусный иммунный ответ после связывания со своими рецепторами и активации пути янус-киназы — передатчика сигнала и активатора транскрипции (STAT). СВР/р300 — CREB связывающий белок; NEMO — незаменимый модулятор ядерного фактора кВ; IкВ — ингибитор кВ; IKK — подъединица киназы ингибитора ядерного фактора кВ; IPS-1 — стимулятор провоцирующего фактора IRF-β1; ISG — ген, стимулируемый IRF; ISGF3 — фактор гена 3, стимулированного IRF; NF-kB — ядерный фактор кВ; Р — фосфат; ТВК1 —TANK-связывающая киназа 1; TRAF3 —TNF (фактор некроза опухоли) рецептор-ассоциированный фактор; Tyk — тирозинкиназа.
Арилгидрокарбоновые цитозольные рецепторы также способны к активации при взаимодействии с различными лигандами и участвуют в активации клеток наряду с рядом других внутриклеточных механизмов активации.
3. NOD-рецепторы. К числу внутриклеточных рецепторов, принимающих участие в запуске реакций противомикробной защиты и воспаления, относится семейство нуклеотидсвязывающих олигомеризационных доменов (NOD)-подобных рецепторов внутриклеточных структур, называющихся инфламмасомами. Инфламмасома — сигнальная платформа, обеспечивающая активацию механизмов врожденного иммунитета в ответ на целый ряд стимулов. Инфламмасома может активировать каспазу 1, фермент, важный для активации провоспалительных цитокинов IL-1β и IL-18. Описана инфламмасома, содержащая NLRP3, участвующая в воспалительном ответе на кристаллы мононатрия урата — триггеры приступов подагры. Мутации в гене NLRP3 приводят к развитию хронических аутовоспалительных синдромов, связанных с чрезмерной выработкой IL-1.
4. Рецепторы лектина типа С. Члены семейства рецепторов лектина типа С имеют углеводородный домен распознавания и кальций-связывающий домен, обеспечивающий проведение сигнала после взаимодействия с углерод-экспрессирующими микроорганизмами, а также собственными молекулами. Дендритные клетки SIGN — внутриклеточная молекула, член семейства молекул, распознающих структуры с высоким содержанием маннозы в чужеродных АГн, способна к активации дендритных клеток. Рецепторы маннозы на макрофагах, дендритных клетках и других типах клеток, например на мезангиальных клетках почки, принимают участие в клиренсе микроорганизмов, а также в захвате АГн для презентации клеток адаптивной иммунной системы.
Селектиновое семейство белков имеет лектиновый домен, позволяющий им связываться с лигандами углеводорода и участвующий в запуске начальных этапов миграции лейкоцитов. L-селектин экспрессируется практически всеми типами лейкоцитов; Р- и Е-селектины экспрессируются на активированных эндотелиоцитах, а Р-селектин также экспрессируется тромбоцитами. Селектины участвуют в процессе адгезии лейкоцитов к эндотелиоцитам.
5. Рецепторы, опосредующие фагоцитоз. Рецепторы, опосредующие фагоцитоз, представлены рецепторами различных семейств с общей способностью связывания лигандов и транспортировки или удаления чужеродных объектов или поврежденных тканей организма. Такие рецепторы могут принимать участие в клиренсе микроорганизмов и транспортировке холестерина, их активация может приводить к развитию патологических ответов. Например, активация рецепторов, распознающих окисленные ЛПНП, приводит к гиперактивированному состоянию нагруженных липидами макрофагов и способствует развитию атеросклероза при избыточном уровне окисленных ЛПНП в крови.
Рецепторы фагоцитоза могут участвовать в активации инфламмасом, например, после распознавания сывороточного амилоида А.
6. Иммуноглобулин-подобные домен-содержащие рецепторы. Рецепторы семейства иммуноглобулин-подобных рецепторов подавления цитотоксичности принимают участие в распознавании различий между собственными и чужеродными клетками. Естественные киллеры готовы к киллингу с помощью дегрануляции и освобождения перфоринов и гранзимов, при этом цитотоксическая активность естественных киллеров зависит от ингибиторных рецепторов, распознающих молекулы МНС I класса или МНС I-подобных молекул. Распознавание молекул МНС I приводит к формированию отрицательного сигнала, подавляющего клеточную цитотоксичность.
Естественные киллеры убивают клетки-мишени с низкой экспрессией молекул МНС I, то есть распознавание чужого в данном случае происходит по отсутствию своего. С помощью скрининга клеточных поверхностей на экспрессию молекул МНС I врожденный иммунитет получает информацию о целостности тканей, критичной в этом случае является интенсивность экспрессии на поверхности клеток МНС I как маркеров целостности тканей. Семейство триггерных рецепторов, экспрессирующихся на поверхности миелоидных клеток, участвует в регуляции интенсивности воспаления. Триггерные рецепторы, экспрессирующиеся на поверхности миелоидных клеток-1, активируются и наряду с другими патоген-распознающими рецепторами участвуют в индукции противовирусных ответов, а триггерные рецепторы, экспрессирующиеся на поверхности миелоидных клеток-2, принимают участие в активации реакций врожденного иммунитета при болезни Альцгеймера.
7. Fc-рецепторы и рецепторы к компонентам системы комплемента. Большинство клеток врожденного иммунитета взаимодействуют с константной (Fc) частью молекул Ig и могут связываться с АТл, прикрепленными к АГн. Изотип АТл определяет, какой тип клеток активируется в данном конкретном ответе. Взаимодействие большинства Fc-рецепторов с лигандами приводит к активации; однако ингибирующие Fc-рецепторы на В-лимфоцитах и макрофагах могут ограничивать запуск ответных реакций. Связывание Fc-y-рецепторов на макрофагах или нейтрофилах активирует процесс фагоцитоза, окислительного взрыва и индуцирует цитотоксичность. Связывание Fc-γ-рецепторов на поверхности естественных киллеров инициирует АТл-зависимую цитотоксичность. Fc-рецепторы на плазмоцитоидные дендритные клетки участвуют в связывании иммунных комплексов во внутриклеточных компартментах, содержащих эндосомальные TLRs.
Fc-рецепторы на тучных клетках, базофилах и активированных эозинофилах связываются с мономерными IgE с высокой аффинностью. Перекрестное взаимодействие связанных с клеточной поверхностью IgE приводит к активации клеток и их дегрануляции. Некоторые изотипы Ig фиксируют комплемент, а рецепторы к компонентам системы комплемента на моноцитах усиливают клеточную активацию, вызванную иммунными комплексами, состоящими из АГн, АТл и компонентов системы комплемента. Рецепторы к компоненту комплемента 1 связывают С3b и С4b — продукты начальных этапов активации системы комплемента и опосредуют фагоцитоз иммунных комплексов, содержащих комплементы. Рецепторы к компоненту комплемента 3 и 4 являются β2-интегринами и распознают продукт разложения iC3b.
8. Рецепторы цитокинов и хемокинов. Клетки врожденного иммунитета экспрессируют рецепторы ко многим цитокинам — растворимым гликопротеинам с низкой молекулярной массой, синтезируемым многими типами клеток. Связывание IFN-γ, синтезированного естественными киллерами или Т-хелперами 1-го типа, моноцитарными рецепторами активирует процессы дифференцировки клеток и развитие воспаления. Рецепторы к IL-4, экспрессированные на моноцитах, индуцируют транскрипцию генов цитокинов, участвующих в процессах репарации тканей. ФНО-α — продукт активированных макрофагов, способен аутокринно поддерживать интенсивность воспаления. Клетки врожденного иммунитета также экспрессируют рецепторы для IL-6, индуцирующего запуск острофазовых ответов, и IFN I типа. Эти медиаторы запускают противовирусные ответы (рис. 2).
Рисунок 2. Схематическое представление пластичности и поляризации макрофагов в патологии. В процессе нарастания интенсивности воспаления и разрушения тканей происходят динамические изменения, например переключение М1 фенотипа (провоспалительный/активированный) на М2 (противовоспалительный или альтернативно активированный) фенотип макрофагов, что характеризует переход с ранней фазы инфекции на хроническую. Более того, могут сосуществовать смешанные фенотипы или популяции с разными фенотипами.
Рецепторы к хемокинам, экспрессирующиеся на различных типах клеток, принимают участие в градиент-зависимом хемотаксисе как в норме, так и при патологии.
в) Сигнальные пути и эффекторные медиаторы врожденного иммунитета. Каждое семейство рецепторов врожденного иммунитета использует комплексную сеть молекул для передачи информации от клеточной поверхности или цитоплазмы к ядрам, что приводит к запуску программы транскрипции генов и синтеза белков. Участие каждого из путей передачи сигнала в ответе врожденного иммунитета определяет последующие события — устранение последствий разрушительных действий вирусной инфекции на ткани организма-хозяина, ограничение процесса повреждения тканей в результате воспаления, развивающегося в ответ на бактериальные или грибковые инфекции, или запуск процесса заживления поврежденных тканей — фиброгенеза.
1. Рецептор-опосредованные сигнальные пути. Многими клетками и системами рецепторов используются общие сигнальные системы. Наиболее важным является путь активации ядерного фактора «каппа-би» (NF-kB) — быстродействующего фактора транскрипции, предварительно присутствующего в клетках врожденного иммунитета, в этой связи для реализации его активности не требуется синтез нового белка. Активация NF-кВ происходит в результате активации TLRs и многих рецепторов цитокинов. Факторы транскрипции, являющиеся его компонентами, транслоцируются в ядра клеток после распада ингибитора «каппа-би» и связываются с промоторными областями генов, кодирующих медиаторы воспаления и запускающих процесс пролиферации клеток.
Другой важный путь внутриклеточного сигналинга опосредован семейством регуляторного фактора IRF, включая факторы транскрипции, активирующиеся эндосомальными TLRs в ответ на связывание ДНК или РНК, или цитоплазменными распознающими рецепторами естественных киллеров, особенно вирусного происхождения. IRF-3, в частности, является важным для активации транскрипции IFN-β на ранних этапах противовирусного ответа врожденного иммунитета. IRF-7 поддерживает выработку IFN-a, индуцируемую активацией эндосомальных TLRs в плазмоцитоидные дендритные клетки — наиболее активные производители IFN-α.
Сигнальные пути янус-киназ и активаторов транскрипции используются многими рецепторами цитокинов и включают последовательные ферментативные реакции, обусловленные киназами, приводящими к транслокации белков — активаторов транскрипции в ядра, где они связываются с промоторами генов-мишеней и индуцируют транскрипцию и синтез белков, выполняющих важные провоспалительные и иммунорегуляторные функции.
Члены семейства ФНО-рецептора активируют сложный сигнальный путь, включающий ФНО рецептор-ассоциированных белков домена смерти и ФНО-рецептор-ассоциированные факторы, что в конечном итоге приводит к активации путей NF-кВ и митоген-активированной протеинкиназы.
Рецептор трансформирующего фактора роста-β представляет собой серин/треонин-рецепторную киназу, фосфорилирующую белки цитоплазмы семейства белка SMAD — факторы транскрипции после взаимодействия рецепторов с трансформирующим фактором роста-β. Передача сигналов трансформирующего фактора роста-β может играть важную роль в завершении реакций врожденного иммунитета и запуске программы заживления ран или восстановления тканей.
Очевидно, что общие внутриклеточные сигнальные пути используются многими рецепторами, активирующими и регулирующими реакции врожденного иммунитета. После связывания таких рецепторов лигандами происходит активация киназ, фосфорилирующих белки нисходящего сигнального пути, транслокация факторов транскрипции в ядра с последующей транскрипцией генов-мишеней.
2. Растворимые продукты врожденного иммунного ответа. Клетки врожденного иммунитета синтезируют многие провоспалительные и регуляторные цитокины. Помимо цитокинов клетки врожденного иммунитета синтезируют особый класс цитокинов — хемокины, привлекающие клетки иммунной системы к местам повреждения тканей или в очаги инфекции, а также цитокины, способствующие развитию реакций адаптивного иммунного ответа. Макрофаги и дендритные клетки вырабатывают IL-12 и IL-23, опосредующие дифференцировку Т-клеток, и факторы активации В-клеток — растворимый медиатор семейства ФНО. Фактор активации В-клеток поддерживает выживание В-клеток за счет костимулирующих сигналов В-клеткам, получившим АГн-специфические сигналы активации через поверхностные В-клеточные рецепторы. Такие сигналы способствуют дальнейшей дифференцировке В-лимфоцитов в плазмоциты и В-клетки памяти.
Клетки врожденного иммунитета способны к синтезу ряда компонентов системы комплемента — ферментов плазмы и регуляторных белков, превращающихся из неактивных форм (проферментов) в активные формы в контролируемых системных каскадных реакциях. Как известно, система комплемента является важным гуморальным фактором врожденного иммунитета, ее активация приводит к образованию мембранно-атакующего комплекса и перфорации поверхностных мембран бактерий. Компоненты системы комплемента также участвуют в опсонизации вирусов и в других защитных реакциях. Маннозосвязывающие лектины, циркулирующие в плазме, функционируют как опсонины и принимают участие в активации системы комплемента. СРБ (белок острой фазы) обеспечивает опсонизацию патогенов в результате его связывания с поверхностными бактериальными фосфолипидами.
На начальных этапах реакций врожденного иммунного ответа макрофаги и нейтрофилы освобождают дефензины — обогащенные цистеинами катионные белки, а также и кателицидиновые пептиды, например LL37. Эти медиаторы способствуют уничтожению микроорганизмов. Нейтрофилы также способны выбрасывать свои ДНК в форме нейтрофильных внеклеточных ловушек или митохондриальную ДНК вместе с ДНК-ассоциированными белками, такими как белки с высокой подвижностью 1, что приводит к повышению интенсивности ответов плазмоцитоидных дендритных клеток и макрофагов при активации их TLRs.
г) Роль врожденного иммунитета в локализации, распространении и разрешении реакций иммунной защиты:
1. Локализация клеток иммунной системы. Клетки врожденного иммунитета способны к миграции через кровь или лимфу в различные компартменты организма. Для эффективной активации ответа на микроорганизмы требуется способность к быстрому передвижению таких клеток. Клетки используют многоступенчатый процесс адгезии и активации. Вначале лейкоциты мигрируют к активированным эндотелиоцитам, у них активируются рецепторы к хемокинам, повышается интенсивность адгезии, и далее происходит процесс трансмиграции через слой эндотелия по градиенту хемокинов.
Селектиновое семейство белков опосредует первые шаги миграции лейкоцитов. Р-селектин и Е-селектин экспрессируются на активированных эндотелиоцитах, Р-селектин также хранится в тромбоцитах. Селектины взаимодействуют со свободными лейкоцитами и запускают процесс адгезии и ролинга лейкоцитов на эндотелиоцитах.
Для перехода к прочной адгезии требуется взаимодействие хемокинов, рецепторов хемокинов и интегринов. Интегрины — гетеродимеры, состоящие из различных α- и β-цепей; разные α/β комбинации экспрессируются на разных типах клеток. После активации интегрины взаимодействуют с их лигандами, экспрессирующимися на эндотелиоцитах. Процесс активации опосредуется модификацией цитоплазменного домена β-цепи, это приводит к структурному изменению внеклеточных доменов. Иногда такой процесс называется «сигнализирование изнутри наружу».
Последним шагом хоминга является трансэндотелиальная миграция, при которой плотно адгезированные на эндотелии лейкоциты мигрируют через монослой эндотелиоцитов и через базальную мембрану стенки сосуда в ткани.
2. Переход к адаптивному иммунному ответу. Активация клеток врожденного иммунитета необходима для запуска реакций адаптивного иммунного ответа с вовлечением Т- и В-лимфоцитов. Дендритные клетки, находящиеся в коже и в ЖКТ, первыми встречаются с АГн. После распознавания патоген-ассоциированных молекулярных паттернов с помощью патоген-распознающих рецепторов и последующего захвата АГн дендритные клетки перемещаются в близлежащие лимфатические узлы, где представляют эпитопы АГн в ассоциации с молекулами главного комплекса гистосовместимости I или II классов, и, таким образом, производят «отбор» Т-лимфоцитов, экспрессирующих рецепторы к этим АГн.
Активированные макрофаги, дендритные клетки и плазмоцитоидные дендритные клетки синтезируют цитокины, запускающие программу дифференцировки Т-клеток. Помимо этого, ко-стимулирующие молекулы клеточной поверхности, экспрессируемые после TLR-опосредованной активации, например CD80 и CD86, служат важнейшими вспомогательными сигналами для активации Т-лимфоцитов. Макрофаги и дендритные клетки также поддерживают развитие адаптивного иммунного ответа с помощью синтеза факторов выживания и дифференцировки лимфоцитов. В отдельной статье на сайте представлено полное описание этапов развития реакций адаптивного иммунитета - просим Вас пользоваться формой поиска по сайту выше.
3. Роль клеток врожденного иммунитета в разрешении воспаления и процессах репарации. Макрофаги играют важную роль в исходе иммунного ответа и в процессах восстановления поврежденных тканей. Классическая парадигма, описывающая М1/ классически активированные и М2/альтернативно активированные макрофаги, является упрощенной. До сих пор неясно, каким образом при хронических инфекционных процессах макрофаги могут изменять функциональный профиль с M1 на М2 после активизации Т-клеточными цитокинами IL-4 и IL-13 и запускать программу экспрессии генов цитокинов, например трансформирующего фактора роста β, опосредующих фиброгенез, и IL-10 — ингибирующего функции АГн-презентирующие клетки.
Хотя M1-профиль, обусловленный активацией макрофагов IFN-γ, является высоко продуктивным в достижении начальных этапов контроля над проникающими в организм патогенами, а М2-медиаторы способствуют заживлению ран, необходимо помнить о том, что фенотип макрофага или комплексные промежуточные факторы могут быть связаны с патологическими состояниями (см. рис. 2). В ряде исследований изучены механизмы врожденного иммунитета, ответственные за развитие таких заболеваний, как атеросклероз, связанный с активацией M1-макрофагов, идиопатический фиброз легких, опосредованный активацией М2-макрофагов.
д) Участие врожденного иммунитета в патогенезе аутоиммунных заболеваний. Среди наиболее существенных открытий за последнее десятилетие можно назвать участие врожденного иммунитета в патогенезе аутоиммунных и воспалительных заболеваний. Например, считается, что амиши с традиционной фермерской деятельностью защищены от БА благодаря регулярному воздействию микроорганизмов на клетки врожденного иммунитета. Клетки врожденного иммунитета играют наиболее важную роль на ранних этапах распознания патогенных микроорганизмов.
При эффективных механизмах контроля функционирования врожденного иммунитета происходит эффективное удаление или как минимум изоляция микроорганизмов. В условиях несвоевременной элиминации микроорганизмов длительное присутствие патогенов в тканях может приводить к гипериммунному ответу, опосредующему дальнейшее повреждение тканей организма. Можно провести много параллелей между иммунными нарушениями, наблюдаемыми при хронических вирусных инфекциях, и нарушенными процессами иммунорегуляции, например при СКВ. Чрезмерная выработка IFN-α является характерной для большинства пациентов с СКВ.
Активация эндосомальных TLRs и/или цитозольных рецепторов иммунными комплексами, содержащими нуклеиновую кислоту, многократно усиливает активность ответов врожденного иммунитета и приводит к выработке IFN типа I и других провоспалительных цитокинов.
Показано, что нейтрофилы принимают участие в запуске такого ответа через свою выработку белков с высокой подвижностью 1, кателицидинов и экструзии стимулирующих ДНК-скоплений. Полагают, что чрезмерная активация TLRs может способствовать развитию ряда аутоиммунных и воспалительных заболеваний, поскольку эндогенные TLR-лиганды могут выступать как эффективные стимуляторы TLRs в создании провоспалительного микроокружения, приводящего к окислительным или апоптотическим повреждениям и гибели клеток. Нарушения структуры эндогенных РНК или ДНК могут привести к активации цитозольных рецепторов естественных киллеров, гиперпродукции IFN I типа, поражениям кожи и ЦНС при интерферонопатиях I типа.
Инфламмасома и ее белки, включая NOD-подобные рецепторы, воспринимаются как медиаторы воспалительного ответа, индуцированного кристаллами урата, что приводит к приступам подагры, в результате мутаций также возможно развитие аутовоспалительных заболеваний.
е) Заключение. Реакции клеток врожденного иммунитета в течение многих лет рассматривались как менее сложные и важные по сравнению с высоко специфичными ответами Т-и В-лимфоцитов, и лишь в настоящее время механизмы врожденного иммунитета рассматриваются в качестве незаменимых защитников организма от патогенов. С помощью механизмов образного распознавания общих паттернов, характерных для микроорганизмов, членами семейства паттерн-распознающих рецепторов, некоторые из которых все еще остаются не открытыми клетки врожденного иммунного ответа управляют эффекторными программами, нацеленными на уязвимые структуры любого проникшего в организм патогена, осуществляя киллинг или как минимум ограничение распространения патогенов в макроорганизме.
Изучение клеток врожденного иммунитета и клинических синдромов, развивающихся в результате генетически обусловленных нарушений их функционирования, позволило выявить центральную роль рецепторов и продуктов активации клеток врожденного иммунитета в патогенезе аутоиммунных и воспалительных заболеваний. Полученные знания способствуют развитию таргетной терапии для контроля или предотвращения развития заболеваний человека, в патогенезе которых врожденный иммунитет играет важную роль.
ж) Контрольные вопросы:
1. Какой из следующих типов клеток не считается компонентом врожденного иммунитета?
A. Макрофаги.
B. Нейтрофилы.
C. Т-лимфоциты.
D. Плазмоцитоидные дендритные клетки.
E. Эозинофилы.
Ответ С. Т-лимфоциты являются важными компонентами адаптивного иммунитета. Т- и В-лимфоциты используют механизмы реаранжировки ДНК для образования новых специфичных АГн-связывающих рецепторов. Клетки врожденного иммунитета экспрессируют образ-распознающие рецепторы, но не экспрессируют специфические АГн-связывающие рецепторы.
2. Какой из следующих патоген-ассоциированных молекулярных паттернов определяют эндосомальные TLRs?
A. Флагеллин.
B. Липополисахарид.
C. Антигенные пептиды.
D. Нуклеиновые кислоты.
Ответ D. TLRs являются важными рецепторами врожденного иммунитета, которые распознают паттерны, экспрессированные патогенными микробами и некоторыми эндогенными молекулами. Экспрессируемые на клеточной поверхности TLRs распознают молекулы, обычно экспрессирующиеся на поверхности микробов. Внутриклеточные эндосомальные TLRs, как, например, TLR-3, -7, -8 и -9, распознают РНК или ДНК. Секвестрирование таких чувствительных к нуклеиновой кислоте TLRs защищает иммунную систему от самопроизвольной активации собственными нуклеиновыми кислотами. Однако при таких заболеваниях, как СКВ, иммунные комплексы, содержащие нуклеиновую кислоту, могут получать доступ к эндосомальным TLRs и индуцировать врожденный иммунный ответ.
3. Какой из следующих стимулов врожденного иммунитета использует инфламмасому для активации воспалительного заболевания?
A. Комплекс пептида и главного класса гистосовместимости класса II.
B. Кристаллы мононатрия урата.
C. IL-6.
D. IgE.
E. Комплемент.
Ответ В. Кристаллы урата достигают компонентов NOD-подобных рецепторов инфламмасомы, активируют каспазу I и индуцируют формирование IL-1, провоспалительного медиатора, который может усиливать врожденный иммунный ответ. У некоторых пациентов этот ответ приводит к острому воспалительному артриту, известному как подагра. Комплексы пептида и главного комплекса гистосовместимости класса II являются стимулами для активации адаптивного иммунного ответа. IL-6 является цитокином с широким спектром активности, IgE участвует в развитии аллергических реакций.
4. В каких из перечисленных процессов противовоспалительные макрофаги М2 принимают участие?
A. Ответы заживления ран.
B. Представление антигена.
C. Выработка IL-12.
D. Распознание окисленного ЛПНП.
E. Активация комплемента.
Ответ А. Хотя определение противовоспалительных макрофагов M1- и М2-макрофагов упрощено, макрофаги меняют функциональную программу в ходе иммунного ответа в сторону хронического состояния, при этом М2-макрофаги вырабатывают медиаторы, как, например, трансформирующий фактор роста β и IL-10, которые принимают участие в разрешении ответов и восстановлении поврежденных тканей. Представление АГн, выработка IL-12 и распознавание окисленного ЛПНП в большей степени являются свойствами M1-макрофагов.
5. Клетки врожденного иммунитета производят растворимые медиаторы, которые принимают участие в активации механизмов адаптивного иммунного ответа. Что из перечисленного является такими медиаторами?
A. Фактор активации В-клеток.
B. IL-23.
C. LL37.
D. Все вышеперечисленное.
E. А и В.
Ответ Е. Макрофаги и дендритные клетки производят медиаторы, которые оказывают влияние на Т-и В-лимфоциты адаптивного иммунного ответа. IL-23 может способствовать запуску Т-клеточных эффекторных программ. Фактор активации В-клеток — фактор выживания и дифференцировки В-клеток. LL37 — кателицидин, вырабатывается нейтрофилами и принимает участие в уничтожении фагоцитированных микроорганизмов.