а) Определение. Нормальная частота стула колеблется от 3 р/нед до 3 р/сут. Как симптом диарея может быть описана как отсутствие твердой консистенции стула (отсутствие оформленности); срочные позывы к дефекации, ощущение дискомфорта в животе, увеличение частоты стула. Консистенция стула определяется процентным содержанием воды в твердом кале, который состоит из бактериальной массы и пищевых волокон.
Поскольку трудно измерить консистенцию стула и он преимущественно (60-85%) состоит из воды, ее необходимо определять, опираясь на его массу.
При диагностике диареи необходимо оценить массу/объем стула за 24-72 ч. Суточная масса стула у детей и взрослых составляет <200 г, большая масса стула является объективным свидетельством в пользу диареи; однако это определение не включает 20% пациентов с жидким стулом, у которых его масса значительно меньше указанного количества.
Острая диарея определяется как диарея, сохраняющаяся 2-3 нед, реже 6-8 нед. Наиболее распространенной причиной острой диареи является инфекция. Хроническая диарея сохраняется по крайней мере 4 нед и, как правило, длится >6-8 нед. Основными четырьмя механизмами диареи являются осмотический, секреторный, экссудативный и дискинетический. Поскольку многие диарейные заболевания обусловлены более чем одним из этих механизмов, клинически полезно выделять диарею мальабсорбционную (жировую), водянистую и воспалительную.
б) Эпидемиология. Диарея является второй ведущей причиной смертности во всем мире, и в особенности среди пожилых людей и детей <5 лет в развивающихся странах. Инфекционные заболевания, сопровождающиеся диарейным синдромом, ежегодно вызывают 525 000 случаев смерти детей во всем мире, несмотря на увеличение применения пероральных регидратационных растворов, цинка и витамина А.
Ротавирусная инфекция является наиболее частой причиной детской диареи с фатальным исходом, но введение пероральной одновалентной ротавирусной вакцины значительно снизило смертность от нее как в развивающихся, так и в развитых странах.
В США норовирус превзошел ротавирус в качестве ведущей причины гастроэнтерита, требующей МП. Приблизительно 48 млн американцев страдают от болезней пищевого происхождения каждый год, отмечается 130 000 ежегодных госпитализаций и 3000 смертей, большинство из которых приходится на долю пожилых людей. Основные патогены, вызывающие диарею, приводят к ежегодным расходам в здравоохранении (ЗО) в размере $14-16 млрд и ведут к потере рабочих дней.
в) Патофизиология. Водно-элеткролитный транспорт. Будь то гипотоническая еда, например бифштекс с во-дой/гипертоническая еда, например молоко и пончик, потребляемый объем пищи увеличивается за счет желудочного, панкреатического, желчного секрета и секрета ДПК. В ДПК пища становится изотонической по мере продвижения к проксимальному отделу тощей кишки, достигая осмолярности плазмы.
По ходу продвижения химуса к толстой кишке концентрация Na+ остается постоянной, Cl- — снижается до 60-70 ммоль/л, а бикарбоната (НСО3-) — повышается до аналогичной концентрации в результате действия Cl- и НСО3--транспортных механизмов в энтероцитах и секреции НСО, в подвздошной кишке (рис. ниже).
Механизмы транспорта воды и электролитов в кишечнике. А. Транспорт натрия в тонком кишечнике осуществляется как через эпителиоциты, так и по межклеточным каналам; в толстой кишке — по натриевым каналам (ENaC). Каналы Na+/H+/ (NHE) и СГ/НСО3- (DRA) ингибируются агентами, повышающими уровни внутриклеточного циклического аденозинмонофосфата, циклического гуанозинмонофосфата и кальция. B. Транспорт натрия. Натрий активно всасывается в ворсинчатых клетках тонкой кишки и поверхностных клетках толстой кишки. Натрий-калиевая АТФаза (Na+/К+-АТФаза), локализованная на базолатеральной мембране клетки, поддерживает низкую внутриклеточную концентрацию Na+, таким образом сохраняя отрицательный электрический заряд, способствуя перемещению Na+ через апикальную мембрану из просвета кишечника в клетку. В тонком кишечнике располагается котранспортер глюкозы, галактозы и натрия — SGLT1. Несколько различных натрийзависимых аминокислотных транспортеров, часть из которых имеют перекрестные субстратные особенности, способствуют транспорту катионных, анионных и нейтральных аминокислот в клетки кишечника. Дипептиды и трипептиды транспортируются связанным с водородом олигопептидным носителем PepT1, который активируется люминальными ионами водорода, генерируемыми эпителиальным Na+/H+-транспортером. Фруктоза поглощается транспортером глюкозы (GLUT5). C. Транспорт хлора в кишечнике. Транспорт ионов хлора осуществляется по всему кишечнику. Внутриклеточные медиаторы (циклический аденозинмонофосфат, циклический гуанозинмонофосфат, Са2+) открывают апикальные СГ-каналы [регулятор трансмембранной проводимости при муковисцидозе (CFTR), кальций-активированный хлоридный канал (tMeM16)] и базолатеральные К+-каналы. Активное перемещение хлора осуществляется с помощью Na+/К+/2Cl--котранспортера (NKCC1). Бикарбонат (НСО3-) также может транспортироваться через канал CFTR. D. Регуляция кишечного транспорта воды и электролитов. В норме кишечник находится в чистом абсорбтивном состоянии под контролем внешних адренергических нервов симпатической нервной системы. Гуанилин, природный лиганд рецептора стабильного токсина Escherichia coli [мембраносвязанная гуанилилциклаза (GC-C)], может играть важную роль в регуляции местной секреции хлора. Нормальный тонус кишечника изменяется под действием энтеральной нервной системы, а также циркулирующих гормонов. Энтеральная нервная система выделяет различные нейромедиаторы, некоторые из которых стимулируют секрецию хлора [например, вазоактивный кишечный пептид (VIP), ацетилхолин], а другие способствуют всасыванию натрия (например, энкефалины, нейропептид Y). Гормоны, вырабатываемые локально в энтерохромаффинных клетках (ЕСС) в эпителии кишечника, и медиаторы воспаления, высвобождаемые из иммунных клеток, непосредственно воздействуют на энтероциты и близлежащие нервы. Циркулирующие гормоны (например, альдостерон, глюкокортикостероид) усиливают всасывание натрия в кишечнике. Глюкокортикостероиды также ингибируют высвобождение арахидоновой кислоты и выработку Pg воспалительными клетками. DRA (SLC26) — ген, кодирующий белок, отвечающий за обмен хлоридов и бикарбонатов; NHE (SLC9) — натрий-водородный транспортер
В толстой кишке выделяется К+, а при помощи транспортных систем и низкой эпителиальной проницаемости Na+ всасывается обратно из просвета кишечника в кровь, в результате содержание Na+ в стуле снижается до 30-40 ммоль/л; К+ — увеличивается с тонкокишечных 5-10 ммоль/л до 75-90 ммоль/л; а концентрация в стуле плохо всасываемых двухвалентных катионов, таких как Mg2+ и Са2+, достигает значений 5-100 ммоль/л.
Концентрация анионов в толстой кишке резко меняется из-за расщепления бактериями углеводов (то есть неабсорбированных крахмалов, сахаров и клетчатки) до короткоцепочечных жирных кислот, достигающих концентрации 80-180 ммоль/л; в условиях pH толстой кишки присутствуют органические анионы, такие как ацетат, пропионат и бутират. В условиях мальабсорбции углеводов образование высоких концентраций этих короткоцепочечных жирных кислот может привести к снижению pH стула <4. Осмоляльность сформированных каловых масс примерно равна осмоляльности плазмы (280-300 мОсм/кг вод ст.).
На клеточном уровне транспорт Na+ через эпителий из просвета кишечника в кровеносное русло (транспорт Na+-связанных сахаров и аминокислот в тонком кишечнике, обменные белки Na+/H+ в тонком кишечнике и проксимальном отделе толстой кишки, а также регулируемые альдостероном Na+-каналы в дистальном отделе толстой кишки) создает благоприятный осмотический градиент для абсорбции (см. рис. выше).
Транспорт хлора из кровеносного русла в кишечник (с помощью регулятора трансмембранной проводимости при муковисцидозе и активированного кальцием хлоридного канала в тонком кишечнике и толстой кишке) создает осмотический градиент для секреции (см. рис. выше). В норме кишечник находится в чистом абсорбтивном состоянии, регулируемом внешними адренергическими нервами и проабсорбтивными нейропептидами и гормонами (см. рис. выше).
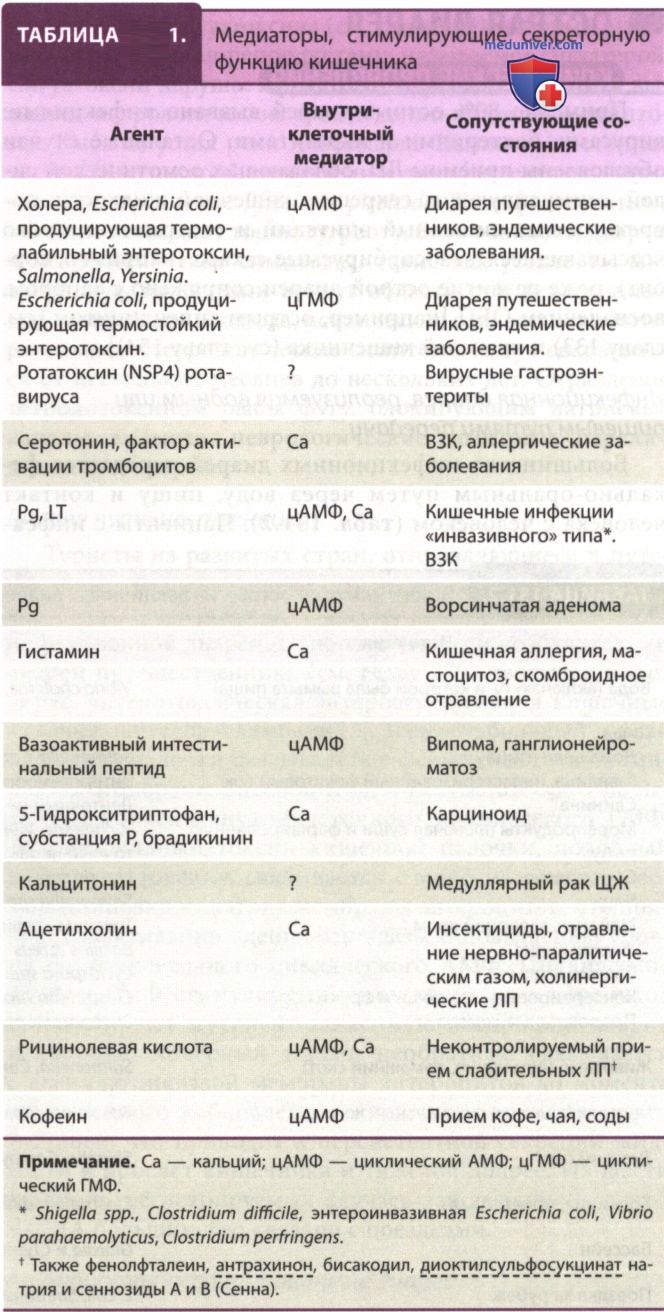
Стимуляция секреции нейротрансмиттерами, гормонами и медиаторами воспаления (табл. 1) может компенсировать этот баланс. Гетерозиготная миссенс-мутация (c.2519G—>Т) в GUCY2C на хромосоме 12 вызывает семейную диарею, увеличивая сигнализацию GC-C.
Диарея обусловлена в первую очередь нарушением абсорбции и секреции жидкости и электролитов, а также, в меньшей степени, дисфункцией гладкой мускулатуры. Q24H в ДПК поступает 8-10 л жидкости. С пищей поступает 2 л жидкости; остальное — продукты деятельности слюнных желез, желудка, печени, ПЖЖ и кишечника. Тонкая кишка обычно поглощает 8-9 л (80%) этой жидкости, в толстую кишку эвакуируется ~1,5 л содержимого. Из оставшейся жидкости толстая кишка абсорбирует все, оставляя в просвете кишечника 100 мл.
Диарея может возникнуть в результате повышенной секреции в тонком кишечнике или при превышении максимальной суточной абсорбционной способности толстой кишки (4 л). Также диарея может возникнуть в случае патологии толстого кишечника, из-за чего нарушается всасывании тех 1,5 л, которые, как правило, эвакуируются из тонкого кишечника.
Водянистая диарея может быть вызвана осмотическими, секреторными и воспалительными механизмами. При приеме внутрь плохо всасывающегося раствора (например, Mg2+)/неабсорбируемого раствора (полиэтиленгликоля, лактулозы, лактозы при лактазной недостаточности) осмотическая сила этого раствора «притягивает» воду и вторично — ионы натрия и хлора в просвет кишечника. Значительная доля осмоляльности стула обусловлена неабсорбированными растворенными веществами. Значительный разрыв между осмоляльностью стула и суммарным зарядом электролитов в каловых массах вызывает осмотическую диарею.
Активная секреция хлора/ингибированная абсорбция натрия также создают осмотический градиент, благоприятный для выделения жидкости из крови в просвет кишечника, что объясняет патофизиологию секреторных диарей. Агенты, повышающие активность циклического АМФ в энтероцитах (например, холерный токсин, Pg), циклического ГМФ (например, стабильный токсин кишечной палочки) и внутриклеточный ионизированный кальций (например, ацетилхолин) (см. табл. 1), ингибируют абсорбцию Na+ и стимулируют секрецию Cl- (см. табл. 1 и рис. выше).
Воспалительные диареи, которые могут быть водяни-стыми/кровянистыми, характеризуются повреждением энтероцитов, атрофией ворсинок и гиперплазией крипт. Поврежденная мембрана энтероцитов тонкой кишки имеет пониженную дисахаридазную и пептид-гидролазную активность, редуцированные Na+-связанные механизмы транспорта углеводов/аминокислот, а также редуцированные абсорбционные транспортеры хлорида натрия. И наоборот, гиперпластические клетки крипты сохраняют свою способность секретировать Cl- (и, возможно, НСО3-).
При тяжелом воспалении иммуноопосредованное поврежде-ние/изъязвление сосудов позволяет крови, гною и белку просачиваться из капилляров и ЛУ (экссудат) и способствовать диарее. Активация лимфоцитов, фагоцитов и фибробластов высвобождает различные воспалительные медиаторы, которые индуцируют секрецию кишечного хлорида (см. рис. выше). IL-1 и ФНО- α, также выделяющиеся в кровь, вызывают лихорадку, анорексию и недомогание.
Видео физиология пищеварения - профессор, д.м.н. П.Е. Умрюхин