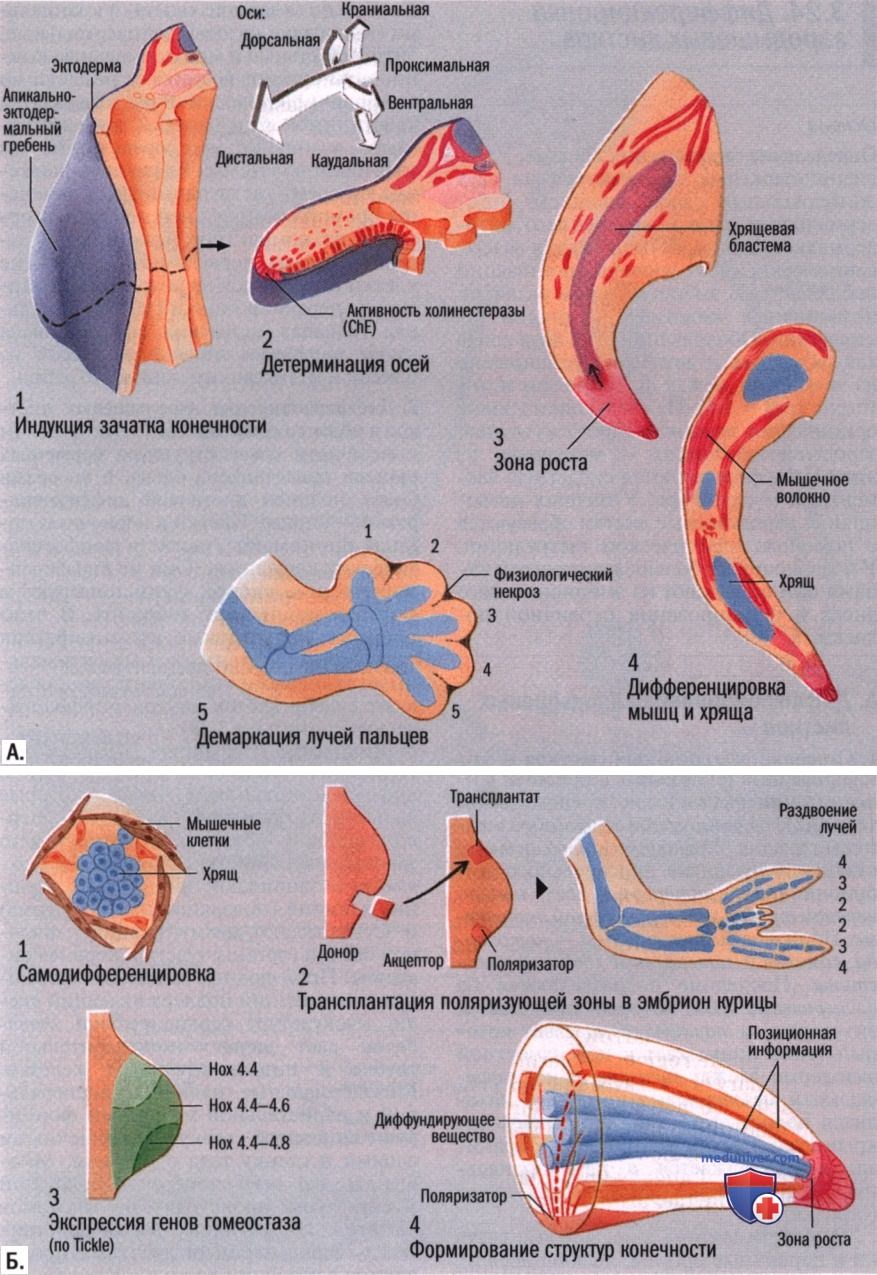
Формирование структур в зачатках конечностей - кратко с точки зрения эмбриологии
Основа. Эмбриональная холинестераза. Эмбриональные клетки в процессе морфогенеза общаются посредством нейромедиатора ацетилхолина. В определенный момент фазы они демонстрируют мускарин-ацетилхолиновые рецепторы на клеточной поверхности (Oettling и др. 1985) и синтезируют фермент холинестеразу для инактивации трансмиттера.
Таким образом, морфогенетически активные участки клеток в зачатке конечности могут демонстрироваться гистохимически путем окрашивания на холинестеразу (Drews, 1975). В этом случае на гистологическом срезе формируется коричневый преципитат в месте ее ферментативной активности.
А. Эмбриональная холинестераза (ChE) в зачатке конечности. Б. Эксперименты с зачатком конечности
А. Эмбриональная холинестераза (ChE) в зачатке конечности:
1. Индукция зачатка конечности. Мезодерма боковой стенки тела индуцирует имеющее форму гребня уплотнение, известное как апикально-эктодермальный гребень, в эктодерме. Этот гребень, в свою очередь, индуцирует рост зачатка конечности в париетальной мезодерме.
2. Детерминация осей. Краниокаудальная, дорсовентральная и проксимодистальная оси устанавливаются рано в развивающемся зачатке конечности. Проксимодистальная ось детерминируется апикально-эктодермальным гребнем и краниокаудальной полярностью «задней поляризующей зоны» (Б2).
3. Зона роста. Апикально-эктодермальный гребень индуцирует недифференцированную мезодерму, расположенную под эктодермой, к дальнейшему аппозициональному росту. Таким образом, возникает дистально продолжающаяся зона роста в верхушке зачатка. Проксимально от зоны роста появляются центральные скелетные элементы и окружающая соединительная ткань. Миобласты и волокна спинномозговых нервов происходят из соответствующих семитических сегментов и вторгаются в зачаток по центру.
4. Дифференцировка. Покидая зону роста, хондробласты соединяются в центральное хрящевое ядро. Их холинестеразная активность продолжается еще в течение некоторого времени, но прекращается с началом дифференцировки в гиалиновый хрящ. Активная холинестераза в мышечных волокнах представляет собой дефинитивный фермент, который позже концентрируется в концевых пластинках вместе с никотиновыми рецепторами.
5. Развитие лучей пальцев. Во время развития пластинок рук и ног в базовую пятилучевую структуру конечностей всех позвоночных зоны физиологического некроза возникают в апикально-эктодермальном гребне, продолжающиеся затем в мезодерму межпальцевых промежутков. Во время формирования крыла первый и пятый лучи ретернируют.
Б. Эксперименты:
1. Самодифференцировка. В клеточных суспензиях ранних зачатков конечностей формируются скопления клеток, которые затем дифференцируются в гиалиновый хрящ. На периферии этих скоплений миобласты сливаются, давая начало многоядерным мышечным волокнам, которые окружают центральное хрящевое скопление. «Сортировка» хрящевых и мышечных клеток сопровождается активностью холинестеразы.
2. Задняя зона поляризации. Способное к диффузии вещество, сформированное в основе зачатка конечности, отвечает за краниокаудальную полярность. Трансплантация этой зоны в переднюю область зачатка конечности эмбриона-акцептора приводит к удвоению локтевых лучей конечности. Производная витамина А (ретиноидная кислота) предположительно является поляризующим диффундирующим веществом.
3. Экспрессия Нох-генов. Регуляторные гены Нох 4.4—4.8 выражены в типичной форме в зачатках конечностей мыши и курицы. Трансфекция мутировавшего гена Нох 4.4 приводит к пороку развития, соответствующему трансплантации задней зоны поляризации.
4. Гипотеза формирования структур конечности. Апикальный эктодермальный гребень определяет, сформирует ли мезенхима в зоне роста хрящ или соединительную ткань. Воздействие сохраняется как позиционная информация в течение всего периода роста. Поляризатор производит диффундирующий фактор (возможно, ретиноидную кислоту), активизируя каскад Нох 4-генов, которые определяют развитие локтевой и лучевой костей и лучей пальцев.