Цепи трансдукции для роста и дифференцировки клеток эмбриона - кратко с точки зрения эмбриологии
Основа. Эмбриональные клетки сообщаются путем прямого клеточного контакта с помощью секреции аутокринных или паракринных факторов роста и локальных трансмиттеров. В дифференцированных клетках эта система в значительной степени заменена эндокринной и нервной регуляцией функции.
В. Цепи трансдукции для роста и дифференцировки
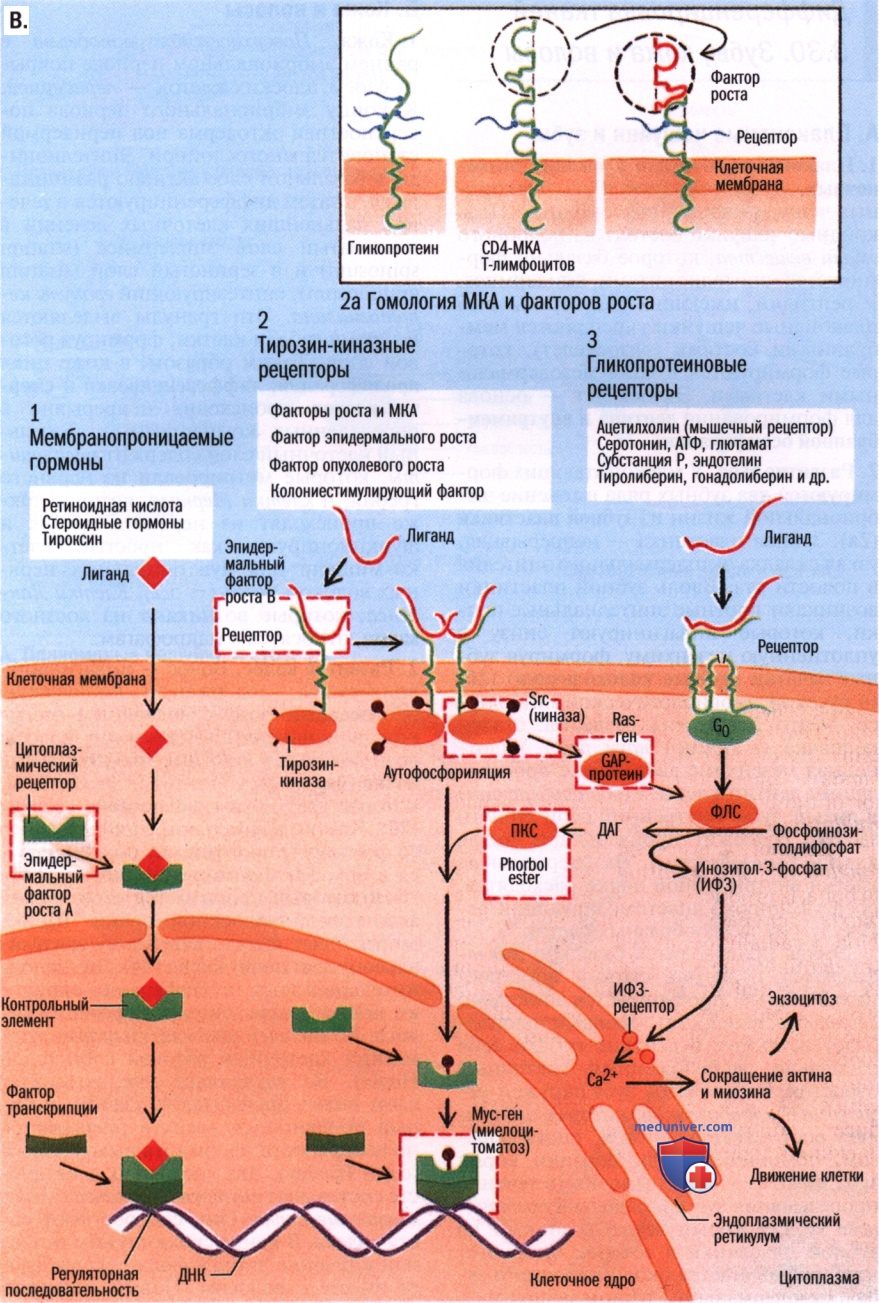
В. Каскады трансдукции для роста и дифференцировки:
1. Мембранопроницаемые гормоны. Гормоны, которые способны проникнуть через клеточную мембрану, связаны с цитоплазматическими рецепторами и транспортируются в ядро, где комплекс «рецептор—гормон» связан с факторами транскрипции в ДНК. Таким образом, гормоны могут активировать определенные гены.
В течение эмбрионального развития гормоны могут индуцировать морфогенез и дифференцировку всех систем тела. Стероидный гормон экдизон индуцирует метаморфоз у насекомых. Гормон метаморфоза амфибий — тироксин. У высших позвоночных тироксин необходим для развития мозга. Тестостерон индуцирует мужские половые органы. Кортизон — дополнительный фактор для дифференцировки почти всех органов.
Ретиноидная кислота, недавно обнаруженный гормон, связанный с витамином А, действует вместе с Нох-генами в детерминации сегментации оси тела и формировании структур конечностей.
2. Тирозин-киназо-связанные рецепторы. Факторы роста могут быть разделены на различные семьи супергенов, например TGF-βs. Структура факторов роста связана со структурой МКА. Гипотетически фактор роста и его рецептор могут происходить от отделившегося от МКА с гемофилической связью (2а) дистального внеклеточного домена.
Возбуждение тирозин-киназо-связанных рецепторов приводит к аутофосфориляции остатков тирозина и димеризации рецепторов. Альтерация третичной структуры рецептора приводит к изменению его агрегирующих свойств. После ряда еще неизвестных промежуточных шагов индуцируются факторы транскрипции и активизируется клеточный цикл. Фосфорилирование элементов контроля киназами имеет такой же эффект, как и при закреплении лиганда.
Рецепторы, которые соединяют с GTPase активирующим протеином (GAP) и с фосфолипазой С (ФЛС), вызывают высвобождение ИФЗ и Са2+. Стимуляция фактором роста может таким образом связана с изменениями в цитоскелете и с движениями клеток.
3. G-протеино-связанные рецепторы. Объединение гормональных рецепторов с G0-протеином ведет к продукции ДАГ (диацилглицерол) и ИФЗ (инозитол-3-фосфат) путем активации ФЛС в мембране клетки. ИФЗ вызывает высвобождение кальция из эндоплазмического ретикулума, который, в свою очередь, может вызвать сокращение актина и миозина и, таким образом, движение клетки или экзоцитоз.
ДАГ активизирует протеин-киназу С (ПКС), вызывающую серию сложных реакций фосфорилирования, подобных начатым тирозин-киназами. В дифференцированных клетках гормональные рецепторы могут быть соединены с G-протеинами, которые стимулируют (Gs) или ингибируют (Gi) энзим аденозинмонофосфата циклического и, таким образом, детерминируют функциональное состояние клетки.
- Онкогенез. Онкогены — видоизмененные варианты определенных членов цепей трансдукции эмбрионального сигнала. Соответствующие клеточные гены (с-онкогены) могут быть включены вирусами в вирусный геном (v-онкогены). Эти вирусы, таким образом, в состоянии имитировать каскады эмбриональной сигнальной трансдукции и реинициировать клеточную пролиферацию. Мутации в с-онкогенах, вызванные канцерогенными веществами, дают тот же самый результат.
erbA: Рецептор для тироксина (Avian erythroblastosis virus).